
香豆素母核与简单香豆素:取代特征、电子效应与理化行为
香豆素母核与简单香豆素:取代特征、电子效应与理化行为
1 香豆素母核与简单香豆素
1.1 苯并-α-吡喃酮母核与原子编号
香豆素母体的分子式为C₉H₆O₂,相对分子质量为146.14。按照2H-色烯-2-酮编号体系,环内氧原子为1位,内酯羰基碳为2位,C3和C4构成双键;苯环上可取代的含氢碳依次为C5~C8,两个稠合碳分别为C4a和C8a。香豆素母核由苯环与α-吡喃酮环稠合而成。在α-吡喃酮环中,C2=O与C3=C4构成α,β-不饱和羰基片段,环内氧原子参与形成内酯结构。
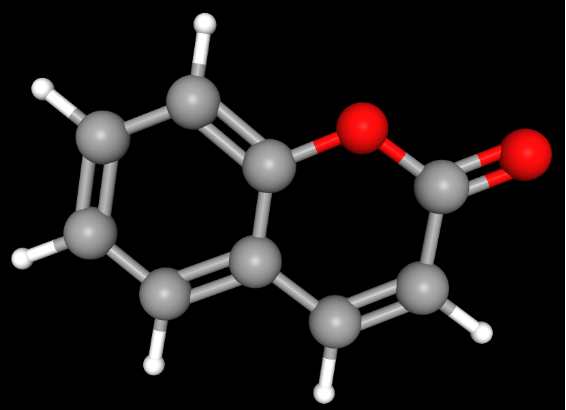
其中,C2=O与C3=C4构成α,β-不饱和羰基片段,并与稠合苯环形成扩展π体系。羰基具有明显的吸电子作用,苯环上的供电子或吸电子取代基则可通过共轭体系重新分配电子密度。香豆素的光谱性质和反应性由整个苯并吡喃酮体系共同决定。[2]
1.2 简单香豆素的结构范围
天然产物文献对“简单香豆素”的范围并非完全一致。较常见的处理方式是将未发生额外环稠合的羟基、甲氧基及其糖苷衍生物归入简单香豆素;部分体系还将未环化的烷基或异戊烯基衍生物包括在内。[1] 因此,判断结构是否仍属于简单香豆素,可以依据香豆素母核是否保持完整、是否形成新的稠合杂环为判定方向。
代表结构 | 典型化合物 | 主要结构变量 | 主要理化影响 |
未取代母核 | 香豆素 | 基准结构 | 提供苯并-α-吡喃酮共轭体系 |
单羟基 | 伞形花内酯(7-羟基香豆素) | 酚羟基位置 | 电离、氢键及激发态电子分布改变 |
邻二羟基 | 七叶亭(6,7-二羟基香豆素)、瑞香素(7,8-二羟基香豆素) | 相邻酚羟基 | 极性、氧化还原性质及金属配位能力改变 |
羟基-甲氧基 | 东莨菪素(6-甲氧基-7-羟基香豆素)、异东莨菪素(7-甲氧基-6-羟基香豆素) | OH/OCH₃位置互换 | 共振供电子能力与酸碱响应改变 |
甲氧基 | 7-甲氧基香豆素、6,7-二甲氧基香豆素 | 酚羟基O-甲基化 | 消除该位点的酚羟基电离和氢键供体能力 |
C-异戊烯基 | Osthenol、蛇床子素等 | 疏水碳链直接连接母核 | 疏水表面积和构象自由度增加 |
O-长链烯基 | Auraptene | 酚氧形成醚并连接香叶基 | 同时封闭酚羟基并显著增加疏水表面积 |
O-糖苷 | Skimmin、Scopolin、Esculin | 酚羟基糖基化 | 极性和氢键容量增加,同时封闭原酚羟基 |
4-羟基香豆素在部分分类体系中也属于简单香豆素,但其羟基位于α-吡喃酮环C4位,能够直接参与C2羰基—C3—C4含氧体系的互变异构和特殊反应性,不能用普通苯环酚羟基取代规律概括。因此,4-羟基香豆素的酸碱平衡、互变异构和反应性需要与C5~C8位苯环酚羟基取代的简单香豆素分开讨论。[1]
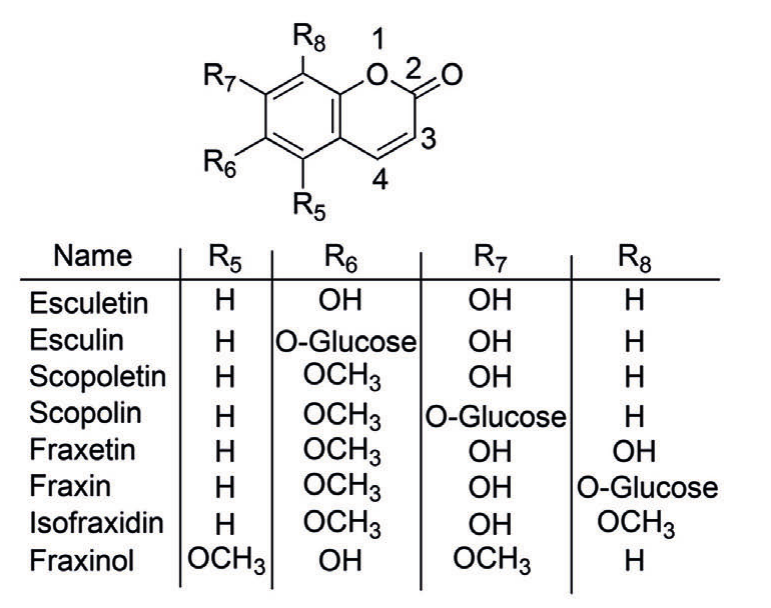
简单香豆素母核的取代位置及代表性羟基、甲氧基和糖苷衍生物
图中以R₅~R₈表示香豆素母核C5~C8位的取代基,并列出七叶亭(秦皮乙素,esculetin)、七叶苷(秦皮甲素,esculin)、东莨菪内酯(scopoletin,亦称莨菪亭)、东莨菪苷(scopolin)、秦皮素(fraxetin)、秦皮苷(fraxin)、异秦皮啶(isofraxidin)和白蜡树精(fraxinol)的取代模式。[8] 这些化合物均保留苯并-α-吡喃酮母核,结构差异主要来自C5~C8位羟基、甲氧基和O-糖基的数量及连接位置。
七叶苷、东莨菪苷和秦皮苷分别为七叶亭的6-O-葡萄糖苷、东莨菪内酯的7-O-葡萄糖苷和秦皮素的8-O-葡萄糖苷。异秦皮啶与白蜡树精均含一个羟基和两个甲氧基,但取代位置不同,可用于比较含氧取代基位置变化对香豆素电子环境和分子间作用的影响。
O-糖苷化使成苷位置不再保留游离酚羟基的质子解离行为,同时通过葡萄糖残基引入多个羟基并增加亲水表面积。糖苷的整体理化性质还取决于未参与成苷的游离酚羟基以及苷元原有的取代模式。
图源: 裁取自Sisó-Terraza P, Luis-Villarroya A, Fourcroy P, et al. Frontiers in Plant Science, 2016, 7:1711, Figure 1A。[8] 依据(Creative Commons Attribution,CC BY)使用。
2 取代位置与香豆素π电子结构
2.1 共振效应与诱导效应
羟基和甲氧基中的氧具有两种方向不同的电子效应。一方面,氧的电负性产生吸电子诱导效应;另一方面,氧的孤对电子可与芳香π体系发生共轭,产生共振供电子作用。对于能够与苯并吡喃酮共轭体系有效耦合的位置,共振作用可明显改变母核的电子密度。
烷基不具有氧取代基那样的孤对电子共轭,但可通过诱导效应和超共轭对邻近π体系产生较弱的供电子影响。异戊烯基、香叶基等较长烃链更显著的作用通常不是强烈改变母核电子结构,而是增加非极性表面积和构象自由度。
简单香豆素中至少存在两类需要区分的结构效应:
电子效应主要决定共轭体系的能级、吸收和发射性质;分子间作用效应主要决定氢键、溶剂化、分配和色谱保留。两种作用常同时发生,贡献大小因取代基而异。
2.2 位置效应与电子耦合
相同取代基位于C5、C6、C7或C8时,其与C2羰基和C3=C4双键之间的共振传递路径并不等价。这也是位置异构体即使具有相同分子式、相同羟基和甲氧基数量,光谱和酸碱性质仍可能不同的原因。
取代基效应在荧光性质中尤其明显。未取代香豆素本身的荧光较弱,而在适当位置引入供电子基或建立更明显的供体—受体电子结构后,吸收和荧光可以明显增强或发生位移。[2] 对供体—受体差异较大的香豆素衍生物,这种变化可涉及分子内电荷转移(intramolecular charge transfer,ICT)。不过,天然简单香豆素的光物理过程还同时受质子化状态、溶剂氢键和局部取代模式影响。[2]
3 羟基取代与电离、氢键和激发态性质
3.1 单羟基取代与酚盐形成
羟基是简单香豆素中影响电子结构较明显的取代基之一。中性酚羟基可以形成分子间氢键;当溶液pH升高并达到相应酸碱平衡范围后,酚羟基失去质子形成酚盐阴离子:
香豆素–OH ⇌ 香豆素–O⁻ + H⁺
由中性酚转变为酚盐后,氧原子的共振供电子能力明显增强,同时分子带负电荷,水合作用增强。因而,同一种羟基香豆素在不同pH下可能表现出不同的紫外吸收、荧光和表观溶解行为。
伞形花内酯(umbelliferone,7-羟基香豆素)是这一效应的典型实例。7-OH与苯并吡喃酮共轭体系相连,其激发态酸性明显高于基态。时间分辨光谱研究显示,伞形花内酯在水中能够发生快速的激发态质子转移(excited-state proton transfer,ESPT),报道的激发态pK_a*约为0.4,质子转移速率达到约2 × 10¹⁰ s⁻¹。[3] 这说明7-羟基不仅增加分子极性,还直接参与光激发后的电荷重新分布和质子转移过程。
3.2 相邻二羟基与邻苯二酚型结构
七叶亭(esculetin,6,7-二羟基香豆素)和瑞香素(daphnetin,7,8-二羟基香豆素)均含两个相邻酚羟基。与单羟基香豆素相比,这类结构增加了氢键供体、受体和可电离位点,并形成邻苯二酚型局部结构。
相邻酚羟基在适宜pH和金属离子条件下可形成O,O-双齿配位位点。金属配位可与酚羟基去质子化及氧化还原过程相互耦合。金属离子存在时,配位、氧化还原和质子化状态可能相互耦合;碱性条件下,邻苯二酚型香豆素的氧化稳定性也可能下降。七叶亭、东莨菪内酯和秦皮素的降解速率随pH升高而增加;在有氧条件下,其氧化过程具有不可逆性。pH变化既可引起酸碱形态转换,也可改变化学稳定性,因此解释吸收或荧光信号变化时需要区分两类过程。[5]
七叶亭还表现出明显的荧光光酸性质。研究测得其第一步基态pK_a约为7.3,而相应激发态酸性显著增强;中性态和阴离子态的荧光寿命也处于不同时间尺度。[4] 这说明在香豆素母核上增加第二个羟基后,性质变化并不局限于“极性升高”,而会进一步改变质子转移、激发态动力学及与金属或溶剂的相互作用。
3.3 羟基数量与水溶性的非线性关系
增加羟基一般会提高氢键形成能力和亲水表面积,但实际水溶性仍由电离状态、晶格能、分子堆积和温度共同决定。
一项直接比较伞形花内酯及其衍生物的实验中,在相同测定条件下,6,7-二羟基化产物七叶亭的水溶性约为伞形花内酯的1.28倍。[6] 这一结果与羟基增加提高水合能力的方向一致,但增幅明显小于同一研究中糖基化造成的变化,也说明固态结构和溶剂化之间存在竞争。
4 甲氧基化与酚羟基封闭
4.1 O-甲基化同时改变电子效应和分子间作用
酚羟基发生O-甲基化后形成芳香甲醚。甲氧基的氧仍能通过孤对电子向芳香共轭体系提供电子,因此O-甲基化并不等同于“去除供电子作用”。真正明显变化的是:
羟基中的酸性质子被甲基取代,该位点不再形成酚盐酸碱平衡,也失去氢键供体能力,同时引入一个非极性甲基。
伞形花内酯的7-OH甲基化形成Herniarin(7-甲氧基香豆素),是可以比较的结构对。实验研究显示,在相同水溶性测定条件下,Herniarin的水溶性约降低至伞形花内酯的1/1.89。[6] 这种差异不能仅归因于分子量增加,而主要与7-OH被封闭、氢键和电离能力下降以及甲基带来的疏水贡献有关。
4.2 羟基与甲氧基的位置互换
东莨菪素(scopoletin)为6-甲氧基-7-羟基香豆素,异东莨菪素(isoscopoletin)则为7-甲氧基-6-羟基香豆素。二者分子式和官能团数量相同,但羟基和甲氧基的位置互换。
这种位置变化同时改变了两个因素:游离酚羟基与香豆素共轭体系的耦合路径发生改变,甲氧基的共振供电子位置也随之改变。
6,7-二甲氧基香豆素(scoparone)进一步将两个酚羟基型位点转化为甲醚。与七叶亭的6,7-二羟基模式相比,其6、7位在通常酸碱条件下不再发生酚羟基解离,氢键供体数量减少。相应的光谱pH响应、亲水性和分子间作用也随之改变。
5 烷基与异戊烯基取代对疏水性和构象的影响
5.1 小烷基的超共轭与疏水贡献
甲基等小烷基可通过诱导作用和超共轭向共轭体系提供一定电子密度,但相对于酚盐、羟基和甲氧基,其直接共振调节能力较弱。小烷基取代的另一项影响是增加非极性表面积并改变局部空间结构。
当甲基直接位于C3或C4等α-吡喃酮共轭区时,对局部电子结构和激发态的扰动可能大于远离该区域的普通芳环烷基取代;位于苯环不同位置时,电子传递路径和空间取向也不相同。
5.2 碳连接异戊烯基与疏水表面积
王草酚(Osthenol)为7-羟基-8-异戊烯基香豆素,蛇床子素(Osthole)为7-甲氧基-8-异戊烯基香豆素,软木花椒素(Suberosin)为7-甲氧基-6-异戊烯基香豆素。蛇床子素与软木花椒素具有相同的C7甲氧基,异戊烯基分别位于C8和C6,可反映侧链位置变化对分子空间形状和分子间作用的影响。
-异戊烯基化本身不封闭酚羟基;若分子中另有游离酚羟基,例如王草酚中的C7-OH,该位点仍可参与氢键和相应的酸碱平衡。异戊烯基本身增加非极性碳氢表面,并引入可旋转单键,使分子的疏水相互作用和侧链构象自由度增加。C6与C8连接位置的变化还会改变侧链的连接位置、局部空间环境和分子整体形状,由此可能影响分子堆积、溶剂化及与疏水环境的相互作用。
5.3 O-烷基化与C-烷基化的差异
O-异戊烯基或O-香叶基化与C-异戊烯基化并非同一类结构效应。前者由酚氧形成醚键,同时完成两项改变:酚羟基被封闭 + 非极性烃链增加。
Auraptene为7-香叶氧基香豆素,其较长的香叶基显著增加非极性表面积,而7位已不存在可解离的游离酚羟基。因此,这类O-烷基醚相对于相应羟基香豆素通常具有更明显的疏水特征。
C-异戊烯基香豆素如果仍保留7-OH,则可能继续发生酚羟基电离;O-异戊烯基或O-香叶基化后,该位点的酸碱响应则被封闭。两类结构即使拥有相似长度的烃链,其pH依赖性质也并不相同。
6 糖基化对水合、电离与光谱响应的影响
6.1 O-糖苷形成改变局部酸碱位点与整体水合
简单香豆素的酚羟基形成O-糖苷键后,原酚羟基的O-H键消失,该位置不再保留相应的酚羟基质子解离行为。糖残基同时引入多个脂肪醇羟基,增加氢键作用位点、亲水表面积和分子量。
糖基化由此产生两类同时存在的结构效应:
成苷位置的游离酚羟基消失 → 该位点的酚羟基电离和氢键供体性质消失;
糖残基引入多个羟基 → 水合作用和氢键作用位点增加。
多羟基香豆素仅有部分酚羟基发生糖基化时,未参与成苷的游离酚羟基仍可发生相应的酸碱平衡。糖苷的整体溶剂化性质由糖残基、剩余游离羟基、苷元取代结构及溶剂条件共同决定。
6.2 茵芋苷与伞形花内酯的溶解性差异
Chu等在pH 7.6的磷酸盐缓冲盐水中比较伞形花内酯及其衍生物的溶解性。在相同测定条件下,茵芋苷的测得溶解性约为伞形花内酯的3.98倍,七叶亭约为伞形花内酯的1.28倍。[6]
茵芋苷是在伞形花内酯C7酚羟基处形成葡萄糖苷的衍生物。葡萄糖残基引入多个羟基后,分子与水相形成氢键和水合相互作用的能力增加,与该实验体系中观察到的溶解性升高相对应。[6]
溶解度还受到晶型、温度、溶剂组成、pH和离子强度影响。3.98倍的差异对应Chu等所采用的具体缓冲体系和测定条件,不代表茵芋苷在所有水相条件下均保持相同比例的溶解度差异。
6.3 东莨菪亭与东莨菪苷的pH依赖光谱响应
东莨菪亭保留C7游离酚羟基,其质子化状态随pH改变。Agati等在磷酸盐缓冲液中测得,pH由5.4升高至8.5时,东莨菪亭约340 nm处的中性态激发带逐渐减弱,约385 nm处与阴离子相关的长波激发带增强;发射带主要位于约460 nm,在该pH范围内峰位变化较小。[7]
东莨菪苷的C7酚氧已形成O-葡萄糖苷键,不再具有东莨菪亭C7-OH相同的质子解离过程。其荧光激发光谱主峰位于约340 nm,另有约290 nm的吸收带;在pH 5.4~8.5范围内,激发光谱基本不受pH改变影响,发射带主要位于约420 nm。[7]
两种化合物的光谱差异对应C7含氧基团的不同化学状态:
东莨菪亭C7-OH保留可解离质子
→ pH升高时中性态与阴离子比例改变
→ 激发光谱出现明显的酸碱响应;
东莨菪苷C7-OH形成O-糖苷键
→ C7酚羟基的质子解离位点消失
→ 相同pH范围内相应的长波阴离子激发带变化不再出现。
7 取代模式与理化性质的对应关系
7.1 结构变量、电子效应与性质变化
结构变化 | 电子结构或分子间作用变化 | 主要理化结果 | 代表化合物 | 典型可观察响应 |
苯环引入单个OH | 共振供电子;增加氢键;可形成酚盐 | 极性和pH响应增强 | 伞形花内酯 | UV/荧光随质子化状态变化 |
引入相邻两个OH | 增加可电离位点;形成邻苯二酚型结构;可配位 | 亲水性提高,同时氧化和配位行为增强 | 七叶亭、瑞香素 | pH、金属离子可明显影响光谱和稳定性 |
OH → OCH₃ | 保留氧的共振供电子能力;失去酚羟基质子和氢键供体 | 酸碱响应降低,通常疏水性增加 | 伞形花内酯 → Herniarin | 水溶性下降;光谱pH响应改变 |
OH/OCH₃位置互换 | 改变取代基与母核的电子耦合路径 | 相同分子式仍可产生不同光谱和分配性质 | 东莨菪素、异东莨菪素 | 位置异构体具有不同电子响应 |
C-烷基/C-异戊烯基 | 增加非极性表面积和构象自由度 | 疏水相互作用增强 | Osthenol、蛇床子素、Suberosin | 水相亲和力降低;反相保留倾向增强 |
O-长链烷基化 | 封闭酚羟基并增加长烃链 | 酸碱响应下降,疏水性进一步增强 | Auraptene | 分配与色谱保留显著受疏水链影响 |
O-糖基化 | 封闭原酚羟基,同时增加多个脂肪醇羟基 | 亲水性和氢键容量增加;成苷位点不再发生酚羟基解离 | Skimmin、Scopolin、Esculin | 水溶性常提高;苷元特定pH光谱响应减弱 |
7.2 结构效应的适用条件
简单香豆素的结构—性质关系存在几个不能忽略的条件因素。
①游离酚羟基的离子化比例由溶液pH、相应pKₐ及介质条件共同决定。中性酚和酚盐阴离子在电荷、溶剂化及电子供给能力方面差异很大,同一化合物的溶解性和光谱性质因此可能随pH明显改变。[3–5,7]
②羟基或糖基数量不能单独决定水溶性。液相中的氢键和水合有利于溶解,而晶体中的分子间氢键、π堆积和晶格稳定性可能产生相反作用。实验溶解度仍需在明确温度、pH和介质条件下比较。[6]
③强碱条件下的光谱变化不一定只来自酚羟基电离。 香豆素母核属于内酯结构,强碱或较长时间的碱处理可能促进内酯环开环;含邻二羟基结构的香豆素还可能发生氧化。因此,在较高pH条件下观察到吸收或荧光变化时,需要结合处理时间、变化的可逆性及样品稳定性进行判断,不能将所有变化均归因于中性酚与酚盐阴离子之间的酸碱平衡。[4,5]
④取代位置与取代基种类同等重要。羟基和甲氧基位置互换、C-异戊烯基位置改变,均可能在分子式不变的情况下改变π电子分布、空间形状和分子间作用。因此,对简单香豆素进行结构比较时,“官能团种类—取代位置—质子化状态”需要同时确定。
8 香豆素母核与简单香豆素代表化学品分类及结构—性质研究应用
表1 母核、单羟基、单甲氧基及甲基取代简单香豆素
分类 | Cas编号 | 阿拉丁货号 | 名称 | 规格或纯度 | 产品特色与应用 |
香豆素母核 | 91-64-5 | 香豆素 | AR, ≥98% | 未取代香豆素母核,可作为羟基化、甲氧基化、甲基化及侧链取代研究的基础对照,用于比较取代前后的共轭电子结构、极性和分配性质。 | |
甲基取代香豆素 | 92-48-8 | 6-甲基香豆素 | ≥99% | C6位甲基取代结构,可与香豆素及4-甲基香豆素比较甲基位置对芳环电子环境、疏水表面积和分子堆积的影响。 | |
单羟基香豆素 | 93-35-6 | 7-羟基香豆素 | ≥99% | C7酚羟基代表物,适用于羟基电离、氢键、溶剂化及取代位置对香豆素电子性质影响的研究,也是糖基化和O-甲基化结构比较的苷元对照。 | |
单羟基香豆素 | 2442-31-1 | 8-Hydroxycoumarin | ≥99% | C8羟基位置异构体,可与6-羟基、7-羟基香豆素比较羟基位置对分子内作用、酸碱行为和共轭电子分布的影响。 | |
甲基-羟基香豆素 | 90-33-5 | 4-甲基伞形酮(4-MU) | ≥98% | 同时含C4甲基和C7羟基,可用于考察烷基取代与酚羟基共同作用下的电子结构、酸碱平衡和荧光响应。 | |
单羟基香豆素 | 6093-68-1 | 6-羟基香豆素 | ≥98% | C6羟基位置异构体,与7-羟基及8-羟基香豆素组成位置异构系列,用于研究羟基连接位置对电子效应、氢键和理化性质的影响。 | |
单甲氧基香豆素 | 531-59-9 | 7-甲氧基香豆素 | ≥98% | C7羟基O-甲基化后的代表结构,可与7-羟基香豆素比较酚羟基被甲基封闭后氢键供体、酸碱位点和疏水性的变化。 | |
甲基取代香豆素 | 607-71-6 | 4-甲基香豆素 | ≥97% | C4甲基直接邻近α-吡喃酮共轭片段,可与6-甲基香豆素比较甲基进入不同电子区域后对母核性质和分子间作用的影响。 |
表2 多羟基、甲氧基及羟基-甲氧基简单香豆素
分类 | Cas编号 | 阿拉丁货号 | 名称 | 规格或纯度 | 产品特色与应用 |
二甲氧基香豆素 | 120-08-1 | 滨蒿内酯 | 分析标准品, ≥98% | 6,7-二甲氧基取代结构,可与6,7-二羟基香豆素比较邻位羟基完全O-甲基化后氢键能力、酸碱性质和疏水性的变化。 | |
羟基-二甲氧基香豆素 | 486-21-5 | 异嗪皮啶 | 分析标准品 | C7保留游离羟基、C6和C8为甲氧基,可研究一个酚羟基被两侧甲氧基包围时的电子效应、氢键及取代组合影响。 | |
邻二羟基香豆素 | 305-01-1 | 6,7-二羟基香豆素 | Moligand™, ≥98% | 含6,7邻二羟基结构,可用于研究邻二酚型氢键、金属离子配位、氧化行为及双羟基对香豆素极性和电子结构的影响。 | |
二甲氧基香豆素 | 487-06-9 | 5,7-二甲氧基香豆素 | ≥98% | 5,7位间隔二甲氧基取代,可与6,7-二甲氧基香豆素进行位置异构比较,研究甲氧基位置对电子分布、疏水性和色谱行为的影响。 | |
羟基-甲氧基香豆素 | 776-86-3 | 异东莨菪碱 | ≥98% | 6-羟基、7-甲氧基组合,可与莨菪亭形成羟基/甲氧基位置互换对照,研究相邻含氧取代位置变化产生的电子和氢键差异。 | |
邻二羟基-甲氧基香豆素 | 574-84-5 | 秦皮素 | ≥98% | 7,8邻二羟基与C6甲氧基共存,可用于比较邻二羟基配位、氧化和氢键性质与甲氧基电子效应共同作用下的理化性质。 | |
羟基-甲氧基香豆素 | 92-61-5 | 莨菪亭 | ≥98% | 7-羟基、6-甲氧基结构,可与7-羟基香豆素、7-甲氧基香豆素及CAS 776-86-3产品组成取代位置和O-甲基化对照系列。 | |
邻二羟基香豆素 | 486-35-1 | 瑞香素 | ≥90%(HPLC) | 7,8邻二羟基位置异构结构,可与6,7-二羟基香豆素比较邻二羟基位置对分子内作用、金属配位、氧化倾向和极性的影响。 |
表3 异戊烯基及长链烯氧基取代简单香豆素
分类 | Cas编号 | 阿拉丁货号 | 名称 | 规格或纯度 | 产品特色与应用 |
甲氧基-异戊烯基香豆素 | 484-12-8 | 蛇床子素 | 分析标准品, Moligand™, ≥99.5% | C7甲氧基与C8异戊烯基共存,可研究疏水侧链引入及酚羟基O-甲基化对分配、膜相互作用和色谱保留的影响。 | |
甲氧基-异戊烯基香豆素 | 581-31-7 | 软木花椒素 | Moligand™, ≥99% | C7甲氧基与C6异戊烯基结构,可与蛇床子素构成异戊烯基位置异构对照,研究侧链位置对分子形状、疏水表面和保留行为的影响。 | |
香叶氧基香豆素 | 495-02-3 | 橙皮油素 | ≥98%(HPLC) | C7连接香叶氧基长链,可用于研究O-烷基化封闭酚羟基后,柔性长链对疏水性、构象自由度、溶剂分配和色谱保留的影响。 | |
羟基-异戊烯基香豆素 | 484-14-0 | 王草酚 | ≥98% | C7游离羟基与C8异戊烯基共存,可与蛇床子素比较C7羟基甲基化前后酸碱、氢键和疏水性质,同时保留相同C8异戊烯基结构。 |
表4 简单香豆素糖苷
分类 | Cas编号 | 阿拉丁货号 | 名称 | 规格或纯度 | 产品特色与应用 |
羟基-甲氧基香豆素糖苷 | 531-44-2 | 东莨菪苷 | Moligand™, ≥98% | 莨菪亭的葡萄糖苷,可与莨菪亭比较C7酚羟基糖基化后酸碱位点、水合能力、分配性质及荧光响应的变化。 | |
二羟基香豆素糖苷 | 486-55-5 | 祖师麻乙素 | Moligand™, ≥98% | 瑞香素的单葡萄糖苷,保留一个游离酚羟基并引入糖基,可与瑞香素比较选择性糖基化对氢键、亲水性和分配行为的影响。 | |
羟基-甲氧基香豆素糖苷 | 524-30-1 | 秦皮苷 | Moligand™, ≥98% | 秦皮素8-O-葡萄糖苷,保留C7游离羟基和C6甲氧基,可研究邻位含氧体系中单一羟基糖基化对水合、酸碱和分配性质的影响。 | |
单羟基香豆素糖苷 | 93-39-0 | 茵芋苷 | Moligand™, ≥98% | 7-羟基香豆素葡萄糖苷,可与7-羟基香豆素直接比较酚羟基成苷后氢键位点、电离行为、亲水性及色谱保留变化。 | |
二羟基香豆素糖苷 | 531-75-9 | 秦皮甲素水合物 | ≥98% | 七叶亭葡萄糖苷水合物,可与6,7-二羟基香豆素比较邻二羟基体系单糖基化后的水合、分子间氢键和分配性质,并用于苷元/糖苷对照实验。 |
注:以上为阿拉丁代表性科研相关产品,具体用途应结合产品规格、批次COA及目标反应或评价体系确定。更多产品规格、级别和COA信息可用“品名/CAS/货号”在阿拉丁官网检索。
参考文献
[1] Zhu Z, Chen R, Zhang L. Simple phenylpropanoids: recent advances in biological activities, biosynthetic pathways, and microbial production. Natural Product Reports, 2024, 41(1): 6–24. DOI: 10.1039/D3NP00012E.
[2] Donovalová J, Cigáň M, Stankovičová H, Gašpar J, Danko M, Gáplovský A, Hrdlovič P. Spectral Properties of Substituted Coumarins in Solution and Polymer Matrices. Molecules, 2012, 17(3): 3259–3276. DOI: 10.3390/molecules17033259.
[3] Simkovitch R, Huppert D. Photoprotolytic Processes of Umbelliferone and Proposed Function in Resistance to Fungal Infection. The Journal of Physical Chemistry B, 2015, 119(46): 14683–14696. DOI: 10.1021/acs.jpcb.5b08439.
[4] Knoor L H, Du Laney G R, Jonker I B, Hoogewerf L P, Tu Y, Pham H T, Yoo J, Muyskens M A. Aesculetin Exhibits Strong Fluorescent Photoacid Character. Journal of Fluorescence, 2022, 32(1): 307–318. DOI: 10.1007/s10895-021-02842-w.
[5] Kang K, Schenkeveld W D C, Weber G, Kraemer S M. Stability of Coumarins and Determination of the Net Iron Oxidation State of Iron–Coumarin Complexes: Implications for Examining Plant Iron Acquisition Mechanisms. ACS Earth and Space Chemistry, 2023, 7(12): 2339–2352. DOI: 10.1021/acsearthspacechem.3c00199.
[6] Chu L L, Pandey R P, Lim H N, Jung H J, Thuan N H, Kim T S, Sohng J K. Synthesis of umbelliferone derivatives in Escherichia coli and their biological activities. Journal of Biological Engineering, 2017, 11: 15. DOI: 10.1186/s13036-017-0056-5.
[7] Agati G, Brunetti C, Tuccio L, Degano I, Tegli S. Retrieving the in vivo Scopoletin Fluorescence Excitation Band Allows the Non-invasive Investigation of the Plant–Pathogen Early Events in Tobacco Leaves. Frontiers in Microbiology, 2022, 13: 889878. DOI: 10.3389/fmicb.2022.889878.
[8] Sisó-Terraza P, Luis-Villarroya A, Fourcroy P, Briat J-F, Abadía A, Gaymard F, Abadía J, Álvarez-Fernández A. Accumulation and Secretion of Coumarinolignans and other Coumarins in Arabidopsis thaliana Roots in Response to Iron Deficiency at High pH. Frontiers in Plant Science, 2016, 7: 1711. DOI: 10.3389/fpls.2016.01711.
更多相关文章,详见下方:
香豆素(Coumarin)全景导读:结构分类、关键性质与实验选型(含表1–表3)
吡喃与“吡喃家族”科研选型指南:结构要点、分类路线图与实验选型导航
苯并吡喃家族概览:从母骨架到三类高频应用(光致变色 / 药物骨架 / 荧光)附产品选型与产品表(表1–表3)
苯并呋喃(Benzofuran)杂环构件指南:从“引入氧原子”到性质更可控的骨架替换与选型导航(表A–C)


 危险品化学品经营许可证(带存储)