
Cytoskeleton(细胞骨架)在细胞结构维持、迁移与疾病机制中的研究
Cytoskeleton(细胞骨架)在细胞结构维持、迁移与疾病机制中的研究
细胞骨架(cytoskeleton)是由微丝、微管和中间丝共同构成的动态纤维网络,主要由肌动蛋白、微管蛋白和不同类型的中间丝蛋白组成。细胞骨架不仅维持细胞形态、细胞极性和细胞内空间组织,还参与细胞迁移、细胞分裂、胞内运输、机械力感知和信号转导,是连接细胞结构变化与功能反应的核心系统。
关键词:Cytoskeleton;细胞骨架;Actin;Microtubule;Intermediate filament;细胞迁移;FAK;Paxillin;Rho GTPase;机械转导
1 细胞骨架的基本组成
1.1 微丝
微丝(microfilament)主要由肌动蛋白(actin)聚合形成,常以F-actin形式参与细胞皮层结构、应力纤维、片状伪足、丝状伪足、收缩环和黏附结构形成。微丝具有高度动态性,可快速聚合和解聚,是细胞形态变化、迁移、胞质分裂和机械力传递的关键结构。
(1)结构特点
G-actin可聚合形成F-actin,F-actin具有方向性,其正端和负端聚合动力学不同。细胞通过Arp2/3复合物、formin、cofilin、profilin和myosin等分子调控F-actin网络形态和收缩力。
(2)功能定位
微丝主要参与细胞边缘延伸、黏附斑连接、细胞收缩、膜突起形成和胞质分裂。迁移细胞前缘的片状伪足和丝状伪足依赖F-actin重排,细胞尾部回缩则依赖肌球蛋白介导的肌动蛋白收缩。
1.2 微管
微管(microtubule)由α/β-tubulin异二聚体聚合形成,具有明显极性和动态不稳定性。微管从中心体或微管组织中心向细胞周边延伸,参与胞内运输、细胞极性建立、纺锤体形成、染色体分离和细胞器定位。
(1)结构特点
微管由α-tubulin和β-tubulin组成的原丝排列而成,其正端通常具有更高动态性,负端多锚定于微管组织中心。微管聚合、灾变和救援过程受GTP水解、微管相关蛋白和微管稳定性调控因子影响。
(2)功能定位
微管为胞内运输提供轨道,驱动蛋白(kinesin)和动力蛋白(dynein)沿微管运输囊泡、线粒体、蛋白复合物和RNA颗粒。细胞分裂过程中,微管形成有丝分裂纺锤体,保证染色体正确排列和分离。
1.3 中间丝
中间丝(intermediate filament,IF)是机械支撑性较强的细胞骨架组分,直径介于微丝和微管之间。不同细胞类型表达不同中间丝蛋白,因此中间丝常用于组织来源和细胞分化状态判断。
(1)结构特点
中间丝缺乏微丝和微管那样明显的极性,主要提供抗拉伸能力和结构稳定性。其装配状态受磷酸化、糖基化和蛋白水解等调控。
(2)代表蛋白
角蛋白(keratin)常见于上皮细胞,波形蛋白(vimentin)常见于间充质细胞,结蛋白(desmin)常见于肌细胞,GFAP常见于星形胶质细胞,神经丝蛋白(neurofilament)常见于神经元,核纤层蛋白(lamin)构成细胞核骨架。
表1 细胞骨架三大组分比较
组分 | 主要结构蛋白 | 典型结构 | 主要功能 | 常用研究指标 |
微丝 | Actin | F-actin、应力纤维、伪足、收缩环 | 细胞形态、迁移、收缩、胞质分裂 | F-actin、Phalloidin染色、Cofilin、Myosin II |
微管 | α/β-Tubulin | 微管网络、纺锤体、轴突微管 | 胞内运输、细胞极性、染色体分离 | α-tubulin、β-tubulin、Acetylated tubulin、EB1 |
中间丝 | Keratin、Vimentin、Desmin、GFAP、Neurofilament、Lamin | 细胞质中间丝网络、核纤层 | 机械支撑、组织特异性、细胞分化状态 | Vimentin、Keratin、Desmin、GFAP、Lamin |
2 细胞骨架的动态调控
2.1 聚合与解聚
细胞骨架不是固定支架,而是持续发生组装、解聚和重排的动态系统。细胞通过调节微丝聚合、微管动态不稳定性和中间丝重组,快速响应外界刺激和内部状态变化。
(1)微丝动态
Actin聚合推动细胞膜前缘延伸,cofilin介导的切割促进旧有F-actin更新,Arp2/3复合物促进分支状actin网络形成,formin促进线性actin束延伸。
(2)微管动态
微管正端不断经历生长、灾变和救援。EB1等微管正端结合蛋白可标记动态微管末端,acetylated tubulin常用于观察较稳定微管结构。
(3)中间丝重组
中间丝动态性相对较低,但在细胞迁移、分裂、应激和上皮-间质转化过程中仍可发生重排。Vimentin重组常与间质表型、迁移能力和细胞力学改变相关。
2.2 翻译后修饰
细胞骨架蛋白可发生磷酸化、乙酰化、去酪氨酸化、泛素化、SUMO化和O-GlcNAc修饰等变化,这些修饰影响骨架装配、稳定性、蛋白互作和细胞功能。
表2 细胞骨架常见调控方式
调控层级 | 代表分子或修饰 | 主要作用 | 研究意义 |
Actin聚合 | Arp2/3、formin、profilin | 促进F-actin网络生成 | 细胞迁移、膜突起、吞噬和胞质分裂 |
Actin解聚 | Cofilin、gelsolin | 切割或解聚F-actin | 骨架更新、迁移前缘动态 |
肌动蛋白收缩 | Myosin II、MLC、ROCK | 产生细胞收缩力 | 应力纤维、尾部回缩、细胞力学 |
微管稳定 | Acetylated tubulin、MAPs | 维持稳定微管结构 | 神经轴突、纤毛、胞内运输 |
微管去稳定 | Stathmin、kinesin-13 | 促进微管解聚 | 有丝分裂、细胞极性重塑 |
中间丝重组 | Vimentin磷酸化、lamin磷酸化 | 调节中间丝网络和核膜结构 | 迁移、分裂、机械应激 |
3 细胞骨架与信号转导
3.1 结构蛋白直接参与信号传递
细胞骨架可通过连接信号蛋白、膜受体和细胞器参与信号转导。例如actin网络可影响受体聚集和内吞,微管可调控信号复合物运输,中间丝可与激酶、磷酸酶和应激相关蛋白相互作用。
(1)受体空间组织
细胞膜受体和黏附分子常与actin皮层连接。骨架结构改变可影响受体聚集、内吞、回收和下游信号强度。
(2)信号复合物运输
微管系统可运输信号分子、囊泡和细胞器,使信号在细胞内形成空间分布。例如神经元轴突中,微管依赖运输对突触功能和神经退行性疾病具有重要意义。
3.2 细胞骨架作为信号支架
细胞骨架可作为大分子支架,将多个信号分子组织在特定位置,使信号转导具有空间方向性。黏附斑、细胞前缘、纺锤体和细胞连接区域均是细胞骨架介导信号整合的重要部位。
(1)黏附斑信号
Integrin与细胞外基质结合后,可募集FAK、Src、Paxillin、Talin、Vinculin等分子,连接actin骨架并激活迁移、存活和机械转导相关信号。
(2)细胞前缘信号
Rac1、Cdc42和PI3K在迁移前缘调控actin聚合和膜突起形成,使细胞产生方向性运动。
(3)机械转导信号
细胞通过actin应力纤维、黏附斑和核骨架感知基质硬度、牵张力和剪切力,并影响YAP/TAZ、RhoA/ROCK、FAK和MAPK等通路。
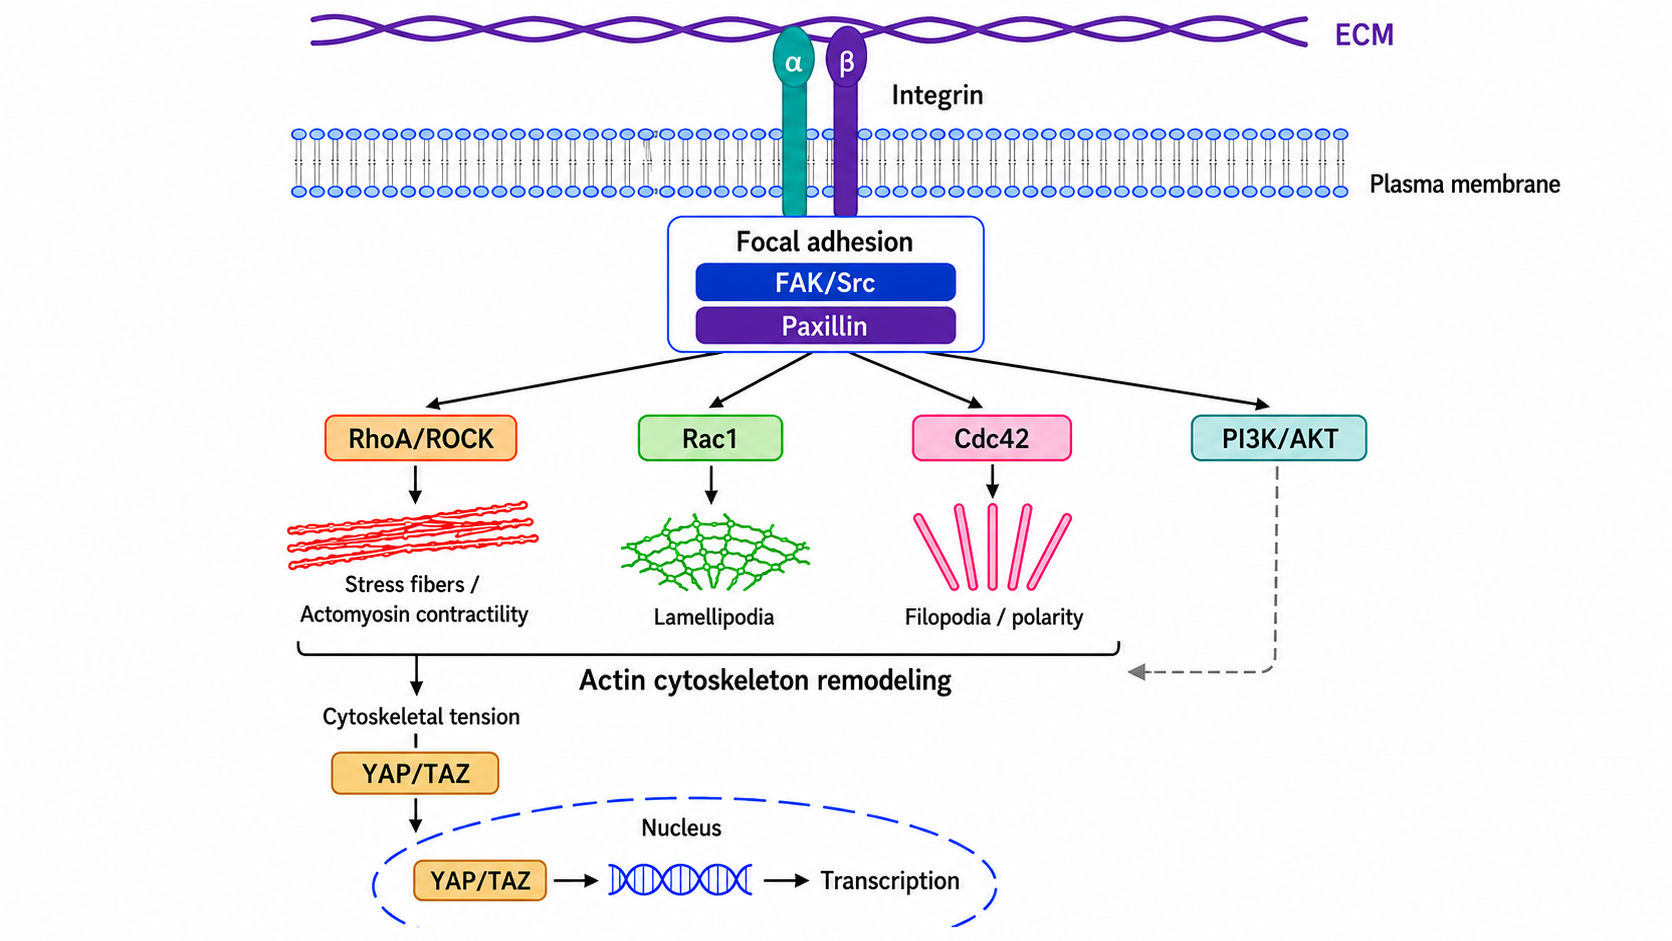
图1 整合素介导的细胞骨架信号示意图
表3 细胞骨架相关信号节点
信号节点 | 主要骨架关联 | 功能输出 | 常用检测 |
RhoA/ROCK | Actin应力纤维、肌球蛋白收缩 | 细胞收缩、黏附增强、力学响应 | RhoA活性、p-MLC、应力纤维 |
Rac1 | Actin分支网络、片状伪足 | 细胞前缘延伸、迁移 | Rac1活性、Lamellipodia、F-actin |
Cdc42 | 丝状伪足、细胞极性 | 方向性迁移、极性建立 | Cdc42活性、Filopodia、细胞极性标志物 |
FAK/Src | 黏附斑、actin连接 | 黏附、迁移、存活 | p-FAK、p-Src、Paxillin |
Paxillin | 黏附斑支架 | 黏附斑装配和更新 | Paxillin、p-Paxillin、黏附斑面积 |
PI3K/AKT | 迁移前缘、膜脂信号 | 细胞迁移、存活、极性 | p-AKT、PIP3定位、迁移实验 |
YAP/TAZ | Actin张力、核骨架 | 机械转导、增殖、分化 | YAP/TAZ核定位、CTGF、CYR61 |
4 细胞骨架与细胞迁移
4.1 细胞迁移的基本过程
细胞迁移是形态变化、细胞黏附、骨架重排和信号转导共同驱动的多步骤过程,参与胚胎发育、伤口修复、免疫细胞巡航、血管生成和肿瘤转移。
(1)极性建立
迁移细胞首先形成前后极性,前缘富集Rac1、Cdc42、PI3K和actin聚合信号,后缘则富集RhoA/ROCK和肌球蛋白收缩信号。
(2)前缘延伸
Actin在前缘聚合,形成片状伪足或丝状伪足,使细胞膜向迁移方向伸展。
(3)黏附形成
Integrin介导细胞与细胞外基质结合,并通过FAK、Paxillin、Talin和Vinculin形成黏附斑,将外界基质信号传递至细胞骨架。
(4)胞体前移和尾部回缩
Myosin II介导actin收缩,使细胞体向前移动,同时后缘黏附解除,完成一次迁移循环。
4.2 迁移形式
细胞迁移形式并不单一,可根据细胞类型、基质环境、黏附强度和骨架状态表现为间质型迁移、阿米巴样迁移、集体迁移或侵袭性迁移。
表4 细胞迁移形式与骨架特征
迁移形式 | 骨架特征 | 常见场景 | 关键检测 |
间质型迁移 | 明显actin应力纤维和黏附斑,依赖整合素 | 成纤维细胞、肿瘤细胞侵袭 | FAK/Paxillin、MMP、Transwell |
阿米巴样迁移 | 黏附较弱,依赖皮层actomyosin收缩 | 免疫细胞、部分肿瘤细胞 | p-MLC、RhoA/ROCK、细胞形态 |
集体迁移 | 细胞间连接保留,前导细胞牵引 | 上皮修复、癌细胞集体侵袭 | E-cadherin、F-actin、前导细胞标志 |
神经突起延伸 | 微管和actin协同调控生长锥 | 神经发育、轴突再生 | βIII-tubulin、GAP43、F-actin |
4.3 迁移实验判读
细胞迁移实验应避免把增殖、死亡或基质降解误判为迁移增强。划痕实验适合观察群体迁移趋势,但易受细胞增殖影响;Transwell实验更适合趋化分析;实时成像可反映迁移速度、方向性和形态动态。
表5 细胞骨架与迁移研究常用实验
实验类型 | 主要用途 | 推荐指标 | 判读重点 |
Phalloidin染色 | 观察F-actin结构 | 应力纤维、伪足、皮层actin | 需结合细胞形态和定位分析 |
α/β-Tubulin染色 | 观察微管网络 | 微管排列、纺锤体、轴突微管 | 注意固定方式对微管结构影响 |
Vimentin/Keratin染色 | 判断中间丝和细胞状态 | 中间丝分布、EMT状态 | 需结合细胞类型标志物 |
划痕实验 | 群体迁移 | 伤口闭合率 | 需控制细胞增殖 |
Transwell实验 | 趋化和侵袭 | 穿膜细胞数 | 侵袭实验需区分基质降解能力 |
黏附斑染色 | 黏附结构分析 | FAK、Paxillin、Vinculin | 关注黏附斑大小、数量和周转 |
活细胞成像 | 动态迁移分析 | 速度、方向性、轨迹 | 可区分随机迁移和定向迁移 |
5 细胞骨架与细胞分裂和胞内运输
5.1 有丝分裂
微管是有丝分裂纺锤体的核心结构,负责染色体排列、纺锤体检查点调控和姐妹染色单体分离。Actin和myosin参与胞质分裂收缩环形成,中间丝和核纤层蛋白在细胞分裂过程中发生重组。
(1)微管与纺锤体
微管动态稳定性直接影响纺锤体形成和染色体分离。微管稳定剂或去稳定剂均可阻断有丝分裂,诱导细胞周期停滞和细胞死亡。
(2)Actomyosin收缩环
胞质分裂时,actin和myosin II形成收缩环,使细胞膜内陷并完成两个子细胞分离。
5.2 胞内运输
微管和actin共同构成细胞内运输轨道。微管主要负责长距离运输,actin更多参与细胞皮层、膜附近和短距离运输。Kinesin、dynein和myosin等马达蛋白将细胞器、囊泡、蛋白复合物和RNA运输到特定区域。
表6 细胞骨架与细胞分裂、运输相关功能
过程 | 主要骨架组分 | 关键分子 | 功能意义 |
纺锤体形成 | 微管 | α/β-Tubulin、Aurora、Kinesin | 染色体排列和分离 |
胞质分裂 | Actin、Myosin II | F-actin、MLC、RhoA | 细胞收缩环形成 |
囊泡运输 | 微管、Actin | Kinesin、Dynein、Myosin | 分泌、内吞和膜运输 |
线粒体定位 | 微管、Actin | Miro、Milton、Dynein、Kinesin | 能量供应和细胞应激反应 |
轴突运输 | 微管 | Kinesin、Dynein、Tau | 神经元功能和神经退行性疾病 |
6 细胞骨架异常与疾病机制
6.1 肿瘤侵袭和转移
肿瘤细胞迁移、侵袭和转移依赖细胞骨架重排、黏附斑更新和细胞外基质降解。EMT过程中,E-cadherin下降、Vimentin升高、actin应力纤维增强和细胞黏附方式改变,均可提高迁移和侵袭能力。
(1)推荐检测
F-actin、Vimentin、E-cadherin、N-cadherin、p-FAK、Paxillin、RhoA/Rac1/Cdc42活性、MMP、Transwell侵袭实验。
(2)判读重点
迁移增强不等于转移增强。若要支持转移机制,应结合侵袭、基质降解、血管内外渗、体内转移模型或临床组织定位证据。
6.2 神经退行性疾病
神经元高度依赖微管稳定性和轴突运输。Tau异常、微管解聚、马达蛋白运输障碍和神经丝蛋白异常聚集,均可导致轴突运输受阻、突触功能下降和神经元退行性改变。
(1)推荐检测
Acetylated tubulin、βIII-tubulin、Tau、p-Tau、Neurofilament、Kinesin、Dynein、线粒体运输和轴突长度。
(2)判读重点
神经元中微管变化应结合轴突运输和突触功能分析,不能只凭tubulin表达量变化判断微管功能。
6.3 心肌病、肌病和皮肤疾病
中间丝和肌动蛋白相关蛋白突变可引起组织机械稳定性下降。Desmin异常与肌病和心肌病相关,keratin异常可导致上皮细胞机械脆弱和皮肤起疱性疾病,lamin异常则可影响核结构和组织力学。
6.4 炎症、纤维化和免疫细胞功能
免疫细胞迁移、吞噬、免疫突触形成和炎症因子释放均依赖细胞骨架重排。成纤维细胞活化和纤维化过程中,actin应力纤维、α-SMA、FAK和RhoA/ROCK信号常显著增强。
表7 细胞骨架异常相关疾病方向
疾病方向 | 关键骨架改变 | 主要机制 | 常用指标 |
肿瘤转移 | Actin重排、黏附斑更新、Vimentin升高 | 迁移、侵袭、EMT | F-actin、Vimentin、p-FAK、Transwell |
神经退行性疾病 | 微管不稳定、Tau异常、轴突运输障碍 | 突触损伤、轴突退化 | p-Tau、Acetylated tubulin、Neurofilament |
心肌病和肌病 | Desmin或actin相关结构异常 | 肌细胞机械支持下降 | Desmin、α-actinin、F-actin |
皮肤脆性疾病 | Keratin网络异常 | 上皮机械稳定性下降 | Keratin、细胞连接标志物 |
纤维化 | Actin应力纤维和α-SMA增强 | 肌成纤维细胞活化 | α-SMA、F-actin、p-FAK、Collagen |
肾脏和核膜病变 | Lamin或足细胞骨架异常 | 核力学和足细胞结构损伤 | Lamin、Synaptopodin、Actin |
7 细胞骨架靶向干预与药物研究
7.1 微管靶向药物
微管是抗肿瘤药物的重要靶点。微管稳定剂可抑制微管动态变化,微管去稳定剂可促进微管解聚,两类药物均可干扰纺锤体功能并导致有丝分裂停滞。
(1)微管稳定剂
紫杉醇类药物通过稳定微管结构抑制动态重排,常用于有丝分裂阻断和肿瘤细胞死亡研究。
(2)微管去稳定剂
秋水仙碱、长春碱、诺考达唑等可干扰微管聚合或促进微管解聚,常用于研究微管动态、细胞分裂和胞内运输。
7.2 Actin靶向干预
Actin聚合和解聚抑制剂可用于解析微丝在迁移、吞噬、胞质分裂和细胞形态维持中的作用。例如cytochalasin类、latrunculin类和jasplakinolide等可干预actin网络动态。
7.3 骨架调控信号靶向
RhoA/ROCK、FAK、Src、Paxillin、PI3K和YAP/TAZ等信号节点可调控骨架结构和细胞力学状态,是肿瘤侵袭、纤维化、炎症和血管重塑研究中的重要干预方向。
表8 细胞骨架靶向干预方向
干预方向 | 代表作用 | 研究用途 | 关键判读 |
微管稳定 | 增强微管稳定性,抑制动态变化 | 有丝分裂阻断、抗肿瘤机制 | 纺锤体异常、细胞周期停滞 |
微管去稳定 | 抑制微管聚合或促进解聚 | 微管动态、胞内运输、神经轴突研究 | 微管网络破坏、运输受阻 |
Actin聚合抑制 | 抑制F-actin形成或膜突起 | 迁移、吞噬、胞质分裂研究 | F-actin减少、迁移下降 |
Actin稳定 | 过度稳定F-actin | Actin动态依赖性验证 | 骨架僵化、迁移异常 |
ROCK抑制 | 降低actomyosin收缩 | 细胞力学、纤维化、干细胞培养 | p-MLC下降、应力纤维减少 |
FAK/Src抑制 | 阻断黏附斑信号 | 肿瘤迁移、侵袭和黏附研究 | p-FAK/p-Src下降、迁移受抑 |
Tubulin乙酰化调控 | 改变稳定微管比例 | 神经运输、纤毛和微管稳定性研究 | Acetylated tubulin变化 |
8 细胞骨架研究相关代表产品
研究模块 | 代表产品 | CAS号 | 机制或检测定位 | 适用研究 |
F-actin结构观察 | 鬼笔环肽(Phalloidin) | 与F-actin结合,用于肌动蛋白纤维标记 | F-actin染色、应力纤维、伪足和细胞形态观察 | |
Actin聚合抑制 | 细胞松弛素D | 抑制actin聚合并干扰F-actin动态 | 细胞迁移、胞质分裂、吞噬和微丝功能验证 | |
迁移/侵袭机制研究 | 细胞松弛素B | 干扰actin聚合和细胞骨架动态 | 细胞迁移、吞噬、膜突起和葡萄糖转运相关研究 | |
Actin聚合抑制 | Latrunculin A | 结合G-actin,阻断actin聚合 | 微丝解聚、细胞形态变化和迁移机制研究 | |
Actin聚合抑制 | Latrunculin B | 干扰G-actin聚合进入F-actin | Actin动态、细胞骨架重排和细胞迁移研究 | |
Actin稳定干预 | Jasplakinolide | 稳定F-actin并促进actin聚合 | 微丝稳定性、骨架僵硬化和迁移异常研究 | |
Myosin II收缩调控 | Blebbistatin | Myosin II ATPase抑制剂 | Actomyosin收缩、细胞力学、尾部回缩和胞质分裂研究 | |
微管稳定干预 | 紫杉醇 | 微管稳定剂,抑制微管动态变化 | 有丝分裂阻滞、纺锤体异常和抗肿瘤机制研究 | |
微管去稳定干预 | 诺考达唑 | 干扰微管聚合并促进微管网络破坏 | M期同步、微管动态、胞内运输和纺锤体研究 | |
微管去稳定干预 | 秋水仙碱 | 结合tubulin并抑制微管聚合 | 微管解聚、细胞分裂阻滞和炎症相关研究 | |
微管去稳定干预 | 硫酸长春花碱 | 抑制微管聚合 | 纺锤体破坏、有丝分裂停滞和抗有丝分裂药效研究 | |
微管去稳定干预 | 硫酸长春新碱 | 微管聚合抑制剂 | 微管动力学、肿瘤细胞分裂阻滞和神经毒性研究 | |
微管动态调控 | 秋水仙酰胺(Demecolcine) | 抑制微管形成 | 染色体分离、细胞周期阻滞和微管功能研究 | |
ROCK信号抑制 | Y-27632 | ROCK抑制剂,降低actomyosin收缩 | 细胞张力、应力纤维、干细胞培养和迁移研究 | |
ROCK信号抑制 | 盐酸法舒地尔 | ROCK相关通路抑制剂 | RhoA/ROCK信号、血管反应、纤维化和细胞收缩研究 | |
FAK黏附信号研究 | PF-573228 | FAK抑制剂 | 黏附斑信号、p-FAK、细胞迁移和侵袭研究 | |
FAK黏附信号研究 | PF-562271 | FAK/Pyk2抑制剂 | 整合素-FAK信号、肿瘤迁移、侵袭和黏附研究 | |
Src/FAK交叉信号研究 | PP2 | Src家族激酶抑制剂 | Src-FAK轴、黏附斑更新、迁移和侵袭机制研究 | |
PI3K迁移前缘信号研究 | LY294002 | PI3K抑制剂 | PI3K/AKT信号、细胞极性、迁移和存活研究 | |
微管乙酰化调控 | 曲古抑菌素A | HDAC抑制剂,可影响tubulin乙酰化相关状态 | Acetylated tubulin、微管稳定性、神经轴突和纤毛研究 |
9 细胞骨架相关产品线与应用方向
产品线方向 | 研究定位 | 主要应用 |
膜-骨架连接、膜修复和膜结构重塑相关蛋白 | 细胞膜动态、囊泡运输、炎症反应和膜损伤修复研究 | |
Actin分支成核复合物 | 片状伪足形成、细胞迁移、吞噬和膜突起研究 | |
Dynamin相关膜剪切和内吞调控蛋白 | 受体内吞、囊泡释放、膜运输和骨架-膜动态研究 | |
细胞间通讯和连接结构相关蛋白 | 细胞连接、组织同步化、迁移协调和炎症信号传播研究 | |
细胞-基质黏附受体 | 黏附斑形成、FAK/Src信号、迁移、侵袭和机械转导研究 | |
微管马达蛋白 | 囊泡运输、染色体移动、轴突运输和细胞器定位研究 | |
细胞外基质交联和组织力学调控酶 | ECM硬化、纤维化、肿瘤侵袭和机械微环境研究 | |
Actin结合和膜磷脂调控蛋白 | 细胞迁移、膜骨架调控、分泌和炎症相关研究 | |
有丝分裂调控激酶 | 细胞周期、纺锤体调控、有丝分裂进程和肿瘤增殖研究 | |
微管结构核心组分 | 微管网络、纺锤体、胞内运输、神经轴突和微管药物研究 | |
纺锤体组装检查点激酶 | 染色体排列、纺锤体检查点、有丝分裂错误和抗肿瘤机制研究 | |
Actin相关马达蛋白 | Actomyosin收缩、胞质分裂、细胞迁移和细胞力学研究 | |
Rho GTPase下游效应激酶 | Rac/Cdc42信号、骨架重排、细胞迁移和肿瘤侵袭研究 | |
RhoA下游收缩调控激酶 | 应力纤维、p-MLC、细胞收缩、纤维化和机械转导研究 |
10 细胞骨架研究常见问题
10.1 F-actin增多是否一定代表迁移增强
不一定。F-actin增多可能代表应力纤维增强、细胞收缩增强或骨架僵硬化,并不一定代表迁移能力增加。迁移增强应结合细胞前缘结构、黏附斑周转、迁移速度和Transwell结果判断。
10.2 Tubulin表达升高是否说明微管更稳定
不一定。Tubulin总量只能反映蛋白表达水平,微管稳定性更适合通过acetylated tubulin、detyrosinated tubulin、微管网络形态和动态成像判断。
10.3 Vimentin升高是否等同于EMT
不能直接等同。Vimentin是间质表型标志物之一,但EMT需要结合E-cadherin下降、N-cadherin上升、转录因子变化、细胞形态改变和迁移侵袭增强综合判断。
10.4 细胞迁移实验是否可以只做划痕实验
不建议。划痕实验容易受细胞增殖、细胞死亡和划痕宽度影响。若要证明趋化或侵袭能力变化,应增加Transwell、基质侵袭或实时成像实验。
10.5 微管药物导致细胞死亡是否只来自微管破坏
不一定。微管药物可诱导有丝分裂停滞、DNA损伤反应、线粒体应激和凋亡。解释时应结合细胞周期、纺锤体形态、caspase活化和细胞死亡指标。
细胞骨架研究应从结构组分、动态调控、力学环境和信号网络四个层面综合分析。微丝、微管和中间丝分别承担形态变化、胞内运输、细胞分裂和机械支撑等功能,并通过Rho GTPase、FAK/Paxillin、PI3K、ROCK和YAP/TAZ等节点连接细胞迁移、增殖、分化和疾病进展。
更多相关文章,详见下方:
[1] 细胞骨架染色


 危险品化学品经营许可证(带存储)