
五类典型人类病毒的复制机制、药物靶点与抗病毒干预
五类典型人类病毒的复制机制、药物靶点与抗病毒干预
SARS-CoV-2、人类免疫缺陷病毒、流感病毒、丙型肝炎病毒和乙型肝炎病毒具有不同的基因组组成、入侵途径及复制策略。围绕病毒受体结合、膜融合、核酸复制、蛋白加工、基因组整合、衣壳组装和病毒释放等关键步骤进行干预,是抗病毒药物研发与机制研究的主要方向。
关键词:SARS-CoV-2;HIV;流感病毒;HCV;HBV;病毒复制;病毒蛋白酶;RNA聚合酶;逆转录酶;抗病毒药物
1 病毒结构、复制方式与抗病毒靶点
1.1 病毒的基本结构
病毒颗粒通常由DNA或RNA基因组以及包裹基因组的蛋白质衣壳组成,部分病毒还具有来源于宿主细胞膜的脂质包膜。包膜表面的病毒糖蛋白可识别宿主受体并介导病毒进入,衣壳则负责保护病毒基因组,并参与脱壳、胞内运输、病毒组装和成熟。病毒缺少独立的能量代谢、蛋白质翻译和完整复制系统,必须进入宿主细胞并利用宿主核糖体、膜结构、核苷酸和能量物质完成增殖。
1.2 病毒基因组与复制方式
病毒基因组可分为DNA基因组和RNA基因组,并可进一步划分为单链、双链、正链、负链和分节段基因组。正链RNA可直接作为信使RNA参与蛋白质翻译,负链RNA必须先由病毒RNA依赖性RNA聚合酶合成互补正链RNA;逆转录病毒则先将RNA逆转录为DNA,再将病毒DNA整合至宿主染色体。HBV虽然属于DNA病毒,但其复制过程需要先转录形成前基因组RNA,再由病毒聚合酶逆转录生成新的病毒DNA。
1.3 抗病毒药物的主要干预环节
(1)病毒附着与进入
病毒首先通过包膜糖蛋白或衣壳蛋白识别宿主细胞受体和共受体。阻断病毒配体与宿主受体结合、抑制宿主蛋白酶对病毒糖蛋白的激活,或干扰病毒膜与细胞膜融合,可降低病毒进入效率。
(2)病毒核酸复制
RNA病毒通常依赖病毒RNA依赖性RNA聚合酶,逆转录病毒和HBV则依赖逆转录酶或具有逆转录活性的病毒聚合酶。核苷或核苷酸类似物可竞争性进入病毒核酸合成过程,造成链延伸受阻、延迟终止或错误突变积累。
(3)病毒蛋白加工
部分RNA病毒和逆转录病毒首先翻译形成大型多聚蛋白,再由病毒蛋白酶切割为成熟功能蛋白。抑制病毒蛋白酶可阻止复制酶、结构蛋白和辅助蛋白成熟,进而中断病毒复制。
(4)组装、成熟与释放
病毒核酸与结构蛋白需要按照特定顺序组装为核衣壳,并经过包膜获取、蛋白水解成熟或宿主膜出芽后形成感染性颗粒。衣壳调节剂、成熟抑制剂和病毒释放抑制剂均可作用于这一阶段。
2 新型冠状病毒SARS-CoV-2
2.1 病毒结构与基因组
SARS-CoV-2属于冠状病毒科β冠状病毒属,是具有包膜的正链单链RNA病毒。其结构蛋白主要包括刺突蛋白S、膜蛋白M、包膜蛋白E和核衣壳蛋白N;非结构蛋白包括3C样蛋白酶(3CLpro,又称主蛋白酶Mpro)、木瓜蛋白酶样蛋白酶(PLpro)、解旋酶和RNA依赖性RNA聚合酶(RdRp)等。S蛋白负责病毒受体识别和膜融合,N蛋白结合基因组RNA,M蛋白和E蛋白参与病毒颗粒组装及出芽。

图1 SARS-CoV-2病毒颗粒结构示意图
2.2 病毒入侵与复制
S蛋白受体结合结构域首先识别宿主细胞表面的血管紧张素转换酶2,随后经宿主蛋白酶切割并发生构象变化,促进病毒包膜与细胞膜或内体膜融合。病毒RNA释放至细胞质后直接参与翻译,生成复制酶多聚蛋白;3CLpro和PLpro将多聚蛋白切割为成熟非结构蛋白,进一步组装为复制转录复合物。RdRp负责合成新的基因组RNA和亚基因组RNA。S、M和E等膜结构蛋白在内质网相关核糖体上合成并进入内质网—高尔基体中间区,N蛋白则在胞质中合成并与基因组RNA形成核糖核蛋白复合物;新生病毒颗粒主要在内质网—高尔基体中间区组装,随后经胞内囊泡运输途径释放。
2.3 主要药物靶点
(1)S蛋白与病毒进入
针对S蛋白受体结合区域、宿主ACE2相互作用界面及膜融合构象变化进行干预,可减少病毒与宿主细胞结合。此类策略包括受体结合阻断分子、融合抑制肽以及针对S蛋白的抗体类分子。
(2)3CLpro与PLpro
3CLpro和PLpro负责切割病毒复制酶多聚蛋白,是冠状病毒复制必需的蛋白酶。3CLpro具有相对明确的底物识别位点,适合开展基于蛋白结构的抑制剂筛选;PLpro除参与多聚蛋白加工外,还可能影响宿主泛素化和干扰素相关信号。
(3)RNA依赖性RNA聚合酶
RdRp是病毒RNA复制的核心酶。核苷或核苷酸类似物进入细胞后转化为活性三磷酸形式,与天然核苷酸竞争,并在病毒RNA合成过程中造成延伸受阻或延迟终止。
(4)药物重定位与体外筛选
洛匹那韦、利托那韦、沙奎那韦、奈非那韦和卡非佐米等化合物曾被用于冠状病毒蛋白酶的虚拟筛选、分子对接或药物重定位研究。计算研究曾将奈非那韦列为SARS-CoV-2主蛋白酶的潜在候选抑制剂,但计算结合能力不能替代酶学、细胞感染和体内药效验证。瑞德西韦和磷酸氯喹曾在早期细胞感染体系中显示体外抑制作用,其中瑞德西韦主要作用于病毒RdRp,磷酸氯喹则可能影响内体、溶酶体环境及多种宿主细胞过程。
2.4 SARS-CoV-2相关产品
产品名称 | CAS号 | 主要靶点或作用机制 | 研究定位 |
Lopinavir | HIV蛋白酶抑制剂,曾用于冠状病毒蛋白酶药物重定位研究 | 早期虚拟筛选、体外研究及药物重定位研究 | |
Ritonavir | HIV蛋白酶抑制剂,并可抑制CYP3A介导的药物代谢 | 早期与Lopinavir联合开展冠状病毒研究 | |
Saquinavir | HIV蛋白酶抑制剂,曾用于3CLpro结构对接研究 | 冠状病毒蛋白酶虚拟筛选研究 | |
Carfilzomib | 不可逆蛋白酶体抑制剂 | 早期计算筛选和体外候选化合物研究 | |
Nelfinavir | HIV蛋白酶抑制剂,曾用于冠状病毒主蛋白酶计算筛选 | 药物重定位、分子对接及病毒复制抑制研究 | |
Remdesivir | 腺苷核苷酸类似物前药,干扰病毒RdRp介导的RNA合成 | 冠状病毒聚合酶、病毒复制及药效研究 | |
Chloroquine diphosphate | 影响内体、溶酶体环境及多种宿主细胞过程 | 早期SARS-CoV-2体外感染研究 |
3 人类免疫缺陷病毒
3.1 病毒结构与细胞进入
人类免疫缺陷病毒(human immunodeficiency virus,HIV)属于逆转录病毒,其病毒颗粒含有两份正链单链RNA基因组。病毒包膜糖蛋白由gp120和gp41组成,gp120首先与宿主细胞表面的CD4结合,再与CCR5或CXCR4共受体相互作用;受体结合引起包膜糖蛋白构象变化,使gp41融合肽插入宿主细胞膜。gp41随后折叠形成六螺旋束,拉近病毒包膜与细胞膜并完成融合。
3.2 逆转录与基因组整合
病毒核心进入细胞质后发生脱壳,逆转录酶以病毒RNA为模板合成互补DNA,再形成双链病毒DNA。病毒DNA与整合酶及其他病毒、宿主蛋白形成预整合复合物,并被运输至细胞核。整合酶催化病毒DNA末端加工和链转移反应,将病毒DNA插入宿主染色体,形成能够长期存在的前病毒。前病毒可利用宿主转录系统产生新的病毒RNA、结构蛋白和病毒酶。
3.3 病毒组装与成熟
HIV基因组RNA、Gag多聚蛋白、Gag-Pol多聚蛋白和包膜蛋白在细胞膜附近完成组装,未成熟病毒颗粒经出芽离开细胞。病毒蛋白酶随后切割Gag和Gag-Pol多聚蛋白,使基质蛋白、衣壳蛋白、核衣壳蛋白、逆转录酶、整合酶和蛋白酶重新排列,形成具有感染性的成熟颗粒。HIV可在病毒附着、共受体结合、膜融合、逆转录、整合、蛋白水解加工和成熟等多个阶段进行干预,因此相关药物通常按照不同靶点组合使用。
3.4 HIV相关产品
产品名称 | CAS号 | 主要靶点或作用机制 | 研究定位 |
Fostemsavir | Temsavir的前药,与HIV-1 gp120结合并抑制病毒附着 | HIV附着和gp120功能研究 | |
Peptide T | 来源于HIV gp120相关序列的合成八肽 | HIV受体结合及神经免疫研究 | |
Plerixafor | CXCR4拮抗剂 | CXCR4嗜性HIV进入及共受体机制研究 | |
Maraviroc | CCR5拮抗剂,阻断CCR5嗜性HIV进入细胞 | HIV进入抑制和CCR5功能研究 | |
Cenicriviroc | CCR2/CCR5双重拮抗剂 | HIV进入、炎症和趋化因子受体研究 | |
Enfuvirtide | 与gp41结合,阻断六螺旋束形成和膜融合 | HIV膜融合及gp41功能研究 | |
Zidovudine | 核苷类似物逆转录酶抑制剂,导致病毒DNA链终止 | HIV逆转录与核苷类似物研究 | |
Stavudine | 核苷类似物逆转录酶抑制剂 | HIV逆转录及耐药机制研究 | |
Lamivudine | 胞嘧啶核苷类似物,抑制病毒逆转录酶 | HIV和HBV聚合酶研究 | |
Zalcitabine | 双脱氧胞苷类逆转录酶抑制剂 | 历史性HIV逆转录酶抑制研究 | |
Nevirapine | 非核苷逆转录酶抑制剂,与HIV-1逆转录酶变构位点结合 | HIV逆转录酶及耐药研究 | |
Efavirenz | 非核苷逆转录酶抑制剂 | HIV-1逆转录及变构抑制研究 | |
Etravirine | 第二代非核苷逆转录酶抑制剂 | NNRTI耐药突变及病毒复制研究 | |
Raltegravir | 整合酶链转移抑制剂 | HIV整合反应及整合酶抑制研究 | |
Dolutegravir | 第二代整合酶链转移抑制剂 | HIV整合酶、耐药及药效研究 | |
Bictegravir | 第二代整合酶链转移抑制剂 | HIV-1整合及耐药机制研究 | |
Lopinavir | HIV蛋白酶抑制剂 | 病毒多聚蛋白加工及成熟研究 | |
Ritonavir | HIV蛋白酶抑制剂及药物代谢抑制剂 | HIV蛋白酶及药物联用研究 | |
Saquinavir | HIV蛋白酶抑制剂 | HIV蛋白酶结构与酶活研究 | |
Nelfinavir | HIV蛋白酶抑制剂 | HIV蛋白加工及药物重定位研究 | |
Indinavir | HIV蛋白酶抑制剂 | HIV蛋白酶和病毒成熟研究 | |
Amprenavir | HIV蛋白酶抑制剂 | 蛋白酶催化及耐药突变研究 | |
Bevirimat | 干扰Gag蛋白加工,抑制病毒颗粒成熟 | HIV成熟抑制剂研究 |
4 流感病毒
4.1 病毒结构与分型
流感病毒属于正黏病毒科,是具有包膜的分节段负链RNA病毒。病毒包膜表面主要含有血凝素(hemagglutinin,HA)和神经氨酸酶(neuraminidase,NA),甲型流感病毒还具有M2质子通道。病毒内部含有核蛋白NP、基质蛋白M1及由PB1、PB2和PA构成的RNA聚合酶复合物。流感病毒可根据核蛋白和基质蛋白的抗原性分为甲型、乙型、丙型和丁型,其中甲型流感病毒还可根据HA和NA的抗原类型进一步划分为不同亚型。
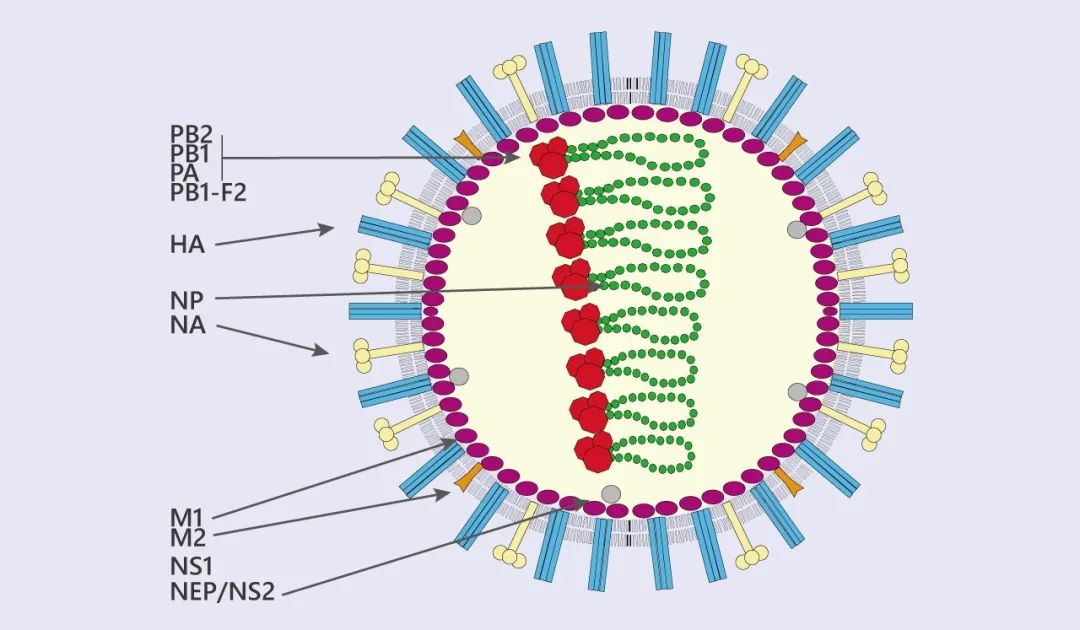
图2 流感病毒结构及基因组组成示意图
4.2 病毒入侵、复制与释放
HA识别宿主细胞表面的唾液酸受体并介导病毒内吞,内体酸化使HA发生构象变化,促进病毒包膜与内体膜融合。M2质子通道可促进病毒颗粒内部酸化,使病毒核糖核蛋白复合物与M1蛋白解离并释放至细胞质。病毒核糖核蛋白复合物随后进入细胞核,在病毒聚合酶作用下完成转录和基因组复制;新合成的病毒RNA、核蛋白、聚合酶和包膜蛋白在细胞膜附近组装,NA切割细胞表面的唾液酸残基,促进子代病毒从宿主细胞表面释放。
4.3 主要药物靶点
(1)M2质子通道
金刚烷胺和金刚乙胺可结合甲型流感病毒M2质子通道,抑制病毒颗粒内部酸化和脱壳。M2蛋白的氨基酸突变可显著降低该类药物的结合能力,形成耐药表型。
(2)神经氨酸酶
扎那米韦、奥司他韦及拉尼米韦可占据NA催化位点,抑制唾液酸残基切割,使新生病毒颗粒难以从细胞表面释放,并减少病毒在邻近细胞间传播。
(3)病毒RNA聚合酶
法匹拉韦进入细胞后转化为活性核苷三磷酸形式,被病毒RNA聚合酶识别并掺入新生RNA,可抑制RNA链延伸或增加病毒基因组突变负荷。
(4)膜融合与宿主信号
阿比多尔可影响病毒包膜蛋白构象及膜融合过程。流感病毒感染还会激活MAPK、NF-κB、PI3K/AKT和干扰素相关信号,这些宿主通路可调节病毒基因表达、炎症反应、细胞存活和病毒释放,因此也是宿主靶向抗病毒研究的重要方向。
4.4 流感病毒相关产品
产品名称 | CAS号 | 主要靶点或作用机制 | 研究定位 |
Amantadine hydrochloride | 阻断甲型流感病毒M2质子通道并抑制脱壳 | M2通道、病毒脱壳和耐药突变研究 | |
Rimantadine | M2质子通道抑制剂 | 甲型流感病毒M2功能及耐药研究 | |
Zanamivir | 神经氨酸酶抑制剂,阻止子代病毒释放 | 甲型和乙型流感病毒NA研究 | |
Oseltamivir phosphate | 口服前药,经代谢转化为活性羧酸形式 | 流感病毒NA抑制及药效研究 | |
Oseltamivir acid | Oseltamivir的活性代谢物,直接抑制NA | NA酶活、结合和耐药研究 | |
Laninamivir | 长效神经氨酸酶抑制剂 | 流感病毒释放和长效抑制研究 | |
Arbidol hydrochloride | 干扰病毒包膜蛋白构象及膜融合 | 包膜病毒进入和膜融合研究 | |
Favipiravir | 经代谢形成活性核苷三磷酸并抑制病毒RdRp | 流感病毒聚合酶和RNA复制研究 |
5 丙型肝炎病毒
5.1 病毒结构与细胞进入
丙型肝炎病毒(hepatitis C virus,HCV)属于黄病毒科,是具有包膜的正链单链RNA病毒,主要感染肝细胞。病毒颗粒可依次与清道夫受体BⅠ型、CD81、Claudin-1和Occludin等宿主因子相互作用,并通过网格蛋白介导的内吞进入细胞。内体酸化促进病毒包膜与内体膜融合,病毒脱壳后将基因组RNA释放至细胞质;由于HCV RNA本身具有信使RNA功能,因此可直接作为模板启动病毒蛋白翻译。
5.2 多聚蛋白加工与RNA复制
HCV基因组编码一个大型多聚蛋白,随后由宿主蛋白酶以及病毒NS2和NS3/4A蛋白酶切割,形成核心蛋白、E1、E2、p7、NS2、NS3、NS4A、NS4B、NS5A和NS5B等成熟蛋白。NS3/4A负责病毒多聚蛋白加工,并可影响宿主天然免疫信号;NS4B诱导形成膜性复制平台,NS5A参与复制复合物组织、RNA复制和病毒颗粒形成,NS5B则作为RNA依赖性RNA聚合酶催化病毒RNA合成。
5.3 病毒组装与直接作用靶点
新合成的HCV RNA与核心蛋白在脂滴附近完成初步装配,并与宿主极低密度脂蛋白合成和分泌过程相互协调,形成具有感染性的脂病毒颗粒。HCV直接作用抗病毒化合物主要分为NS3/4A蛋白酶抑制剂、NS5A抑制剂和NS5B聚合酶抑制剂;亲环蛋白A等宿主因子也可作为间接干预靶点。多类化合物联合使用,可同时抑制病毒蛋白加工、复制复合物形成和RNA链延伸,并降低单一耐药突变造成的影响。
5.4 HCV相关产品
产品名称 | CAS号 | 主要靶点或作用机制 | 研究定位 |
Boceprevir | 可逆结合HCV NS3蛋白酶并抑制多聚蛋白加工 | 第一代NS3蛋白酶抑制剂及耐药研究 | |
Telaprevir | 抑制NS3/4A蛋白酶 | HCV蛋白酶结构、催化及耐药研究 | |
Paritaprevir | NS3/4A蛋白酶抑制剂 | HCV多聚蛋白加工及联合用药研究 | |
Simeprevir | NS3/4A蛋白酶抑制剂 | HCV蛋白酶及病毒复制研究 | |
Grazoprevir | 第二代NS3/4A蛋白酶抑制剂 | HCV蛋白酶、基因型差异及耐药研究 | |
Asunaprevir | NS3蛋白酶抑制剂 | HCV NS3酶活及药物敏感性研究 | |
Elbasvir | NS5A抑制剂 | HCV复制复合物及联合抑制研究 | |
Ledipasvir | NS5A抑制剂 | HCV RNA复制和病毒颗粒形成研究 | |
Ombitasvir | NS5A抑制剂 | HCV不同基因型复制研究 | |
Daclatasvir | NS5A抑制剂 | NS5A功能、病毒复制和耐药研究 | |
Beclabuvir | NS5B非核苷变构抑制剂 | HCV聚合酶构象及复制研究 | |
Sofosbuvir | 核苷酸类似物前药,抑制NS5B并导致RNA链终止 | HCV RNA聚合酶及病毒复制研究 | |
Dasabuvir | NS5B非核苷变构抑制剂 | HCV聚合酶变构调控研究 | |
Alisporivir | 抑制宿主Cyclophilin A依赖的HCV复制过程 | 宿主靶向抗HCV机制研究 |
6 乙型肝炎病毒
6.1 病毒基因组与cccDNA
乙型肝炎病毒(hepatitis B virus,HBV)属于嗜肝DNA病毒科,是具有包膜的部分双链松弛环状DNA病毒。病毒进入肝细胞后,核衣壳将松弛环状DNA运输至细胞核,宿主修复酶去除病毒聚合酶和RNA引物,补齐缺口并形成共价闭合环状DNA。cccDNA以微型染色体形式存在,是病毒RNA持续转录的主要模板,其长期稳定存在是HBV持续感染和停药后病毒反弹的重要分子基础。
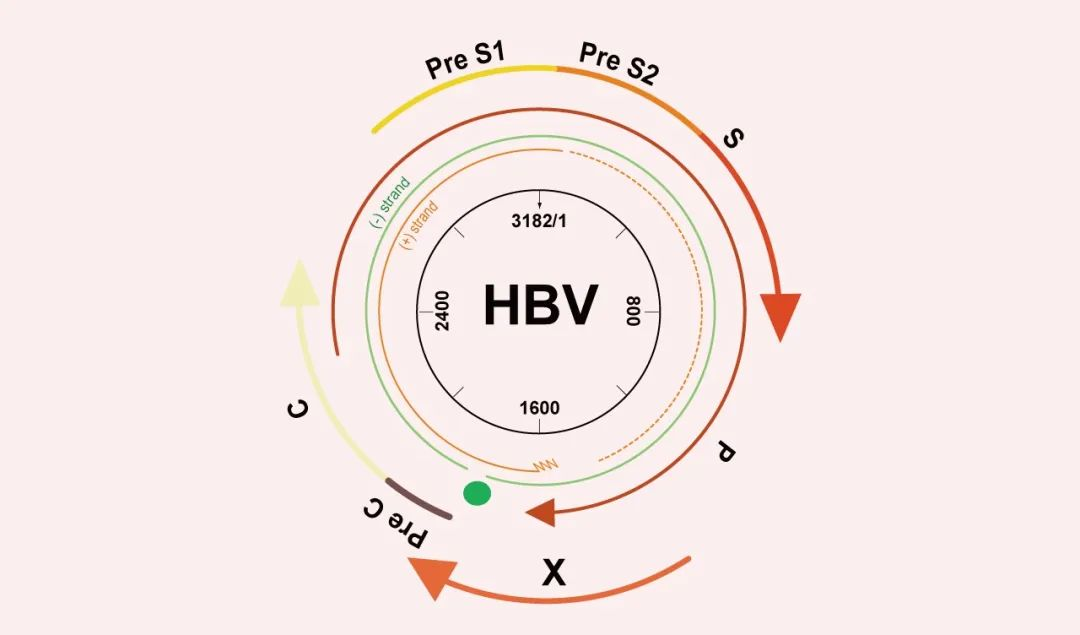
图3 HBV基因组结构与功能区域示意图
6.2 前基因组RNA与逆转录
cccDNA可转录生成前基因组RNA、表面抗原RNA和其他病毒转录本。前基因组RNA既可作为核心蛋白和聚合酶翻译模板,也可与病毒聚合酶共同被包装进入新形成的核衣壳。病毒聚合酶在核衣壳内部首先利用前基因组RNA合成负链DNA,同时降解RNA模板,随后合成不完全的正链DNA,最终形成新的松弛环状DNA基因组。
6.3 病毒颗粒与抗原释放
含有成熟病毒DNA的核衣壳可获得由大、中、小表面蛋白组成的包膜,并以感染性Dane颗粒形式释放;部分核衣壳也可重新进入细胞核,补充cccDNA库。感染细胞还会大量分泌不含完整核衣壳的球形或杆状亚病毒颗粒,这些颗粒主要由HBsAg组成,是感染者血液中大量表面抗原的重要来源。
6.4 主要药物靶点
(1)HBV聚合酶
Tenofovir和Adefovir等核苷酸类似物可在细胞内转化为活性形式,与天然底物竞争并被病毒聚合酶掺入新生DNA链,从而抑制逆转录和病毒DNA合成。
(2)核心蛋白与衣壳组装
核心蛋白变构调节剂可结合核心蛋白二聚体界面或衣壳变构口袋,改变衣壳装配动力学,使病毒形成异常衣壳,或阻止前基因组RNA与聚合酶的正常包装。
(3)病毒RNA与HBsAg表达
干扰HBV RNA的加尾、稳定和降解过程,可降低病毒转录本水平,进一步减少HBsAg及其他病毒蛋白表达。RG7834等研究化合物主要用于分析PAPD5/PAPD7相关RNA稳定机制。
(4)宿主免疫受体
TLR7和TLR8激动剂可促进树突状细胞、单核细胞和其他免疫细胞产生细胞因子,增强先天免疫及后续适应性免疫反应。其抗病毒效应需同时考虑免疫激活强度、肝脏炎症和安全性范围。
6.5 HBV相关产品
产品名称 | CAS号 | 主要靶点或作用机制 | 研究定位 |
RG7834 | 干扰PAPD5/PAPD7相关RNA加尾和稳定过程,降低HBV RNA及HBsAg表达 | HBV RNA稳定性和表面抗原抑制研究 | |
Tenofovir | 核苷酸类似物,抑制HBV聚合酶介导的逆转录 | HBV聚合酶、病毒DNA合成及耐药研究 | |
Adefovir | 腺嘌呤核苷酸类似物,抑制病毒逆转录 | HBV聚合酶及核苷酸类似物研究 | |
Vesatolimod | TLR7激动剂,增强宿主先天免疫应答 | HBV免疫调节和宿主靶向研究 | |
Selgantolimod | TLR8激动剂,促进先天及细胞免疫反应 | HBV和HIV相关免疫调节研究 |
7 五类病毒的靶向策略比较
病毒 | 基因组类型 | 主要药物靶点 | 主要干预特点 | 关键研究难点 |
SARS-CoV-2 | 包膜正链单链RNA | S蛋白、3CLpro、PLpro、RdRp | 阻断病毒进入、蛋白加工和RNA复制 | 病毒变异、靶点突变及治疗时间窗 |
HIV | 包膜逆转录RNA病毒 | gp120、CCR5、CXCR4、gp41、逆转录酶、整合酶、蛋白酶 | 覆盖进入、逆转录、整合和成熟的多靶点干预 | 前病毒整合、潜伏储存库和耐药 |
流感病毒 | 包膜分节段负链RNA | HA、M2、NA、病毒聚合酶 | 干预脱壳、RNA复制、膜融合和病毒释放 | 抗原漂移、基因重配和药物耐药 |
HCV | 包膜正链单链RNA | NS3/4A、NS5A、NS5B、Cyclophilin A | 多类直接作用或宿主靶向化合物联合阻断复制 | 基因型差异和耐药相关变异 |
HBV | 包膜部分双链DNA,经RNA中间体逆转录 | 聚合酶、核心蛋白、衣壳、病毒RNA及宿主免疫 | 抑制逆转录、衣壳组装和病毒抗原表达 | cccDNA持续存在及免疫耐受 |
五类病毒在受体识别、基因组复制和病毒颗粒成熟方面具有不同的分子机制。SARS-CoV-2的主要干预环节包括S蛋白介导的进入、病毒蛋白酶加工和RdRp介导的RNA复制;HIV可在附着、膜融合、逆转录、整合和成熟等多个阶段进行联合抑制;流感病毒药物主要围绕M2质子通道、神经氨酸酶、聚合酶和膜融合过程展开;HCV可通过NS3/4A、NS5A和NS5B等直接作用靶点实现多环节阻断;HBV治疗研究则需同时关注逆转录、衣壳组装、病毒RNA稳定性及cccDNA持续存在。
参考文献
[1] Xu Z, et al. Nelfinavir was predicted to be a potential inhibitor of 2019-nCov main protease by an integrative approach combining homology modelling, molecular docking and binding free energy calculation. bioRxiv.
[2] Wang M, et al. Remdesivir and chloroquine effectively inhibit the recently emerged novel coronavirus (2019-nCoV) in vitro. Cell Res. 2020;30:269–271.
[3] Wilen CB, Tilton JC, Doms RW. HIV: cell binding and entry. Cold Spring Harb Perspect Med. 2012;2(8):a006866.
[4] Hutchinson EC. Influenza Virus. Trends Microbiol. 2018;26(9):809–810.
[5] Ludwig S, et al. Influenza-virus-induced signaling cascades: targets for antiviral therapy? Trends Mol Med. 2003;9(2):46–52.
更多相关文章,详见下方:
[1] 甲型肝炎病毒 RNA 提取
[2] 乙型脑炎病毒 RNA 提取
[3] 流感病毒 RNA 提取


 危险品化学品经营许可证(带存储)