
细胞膜微区蛋白的结构组织、离子通道调控与 疾病研究应用
细胞膜微区蛋白的结构组织、离子通道调控与 疾病研究应用
细胞膜微区由特定脂质、支架蛋白和细胞骨架共同组织,可限制膜蛋白扩散并调节离子通道、转运蛋白、受体信号及囊泡运输。膜微区组成异常会改变膜力学、物质转运和细胞应答。
关键词:细胞膜微区;脂筏;Caveolin;Flotillin;Stomatin;STOML3;SPFH结构域;CD81;离子通道;膜转运;细胞骨架;囊泡运输
1 细胞膜微区的结构基础与功能特征
1.1 脂质组成与膜有序性
细胞膜并非均一的流动平面。胆固醇、鞘磷脂、糖鞘脂和饱和磷脂可形成相对有序的局部膜环境,并选择性富集特定膜蛋白。脂质组成会改变膜厚度、曲率、流动性和局部机械性质,从而影响离子通道开放、受体聚集及转运蛋白扩散。
1.2 膜微区的动态组织
多数膜微区属于尺度较小、持续时间有限的动态结构,其形成依赖脂质相互作用、支架蛋白寡聚化和细胞骨架限制。受体激活、机械刺激或膜张力变化可使多个小型膜域暂时聚集,形成较大的信号或转运平台。
1.3 Caveolae与非小窝型膜微区
Caveolae是由Caveolin和Cavin蛋白共同形成的瓶状膜内陷,常见于内皮细胞、脂肪细胞、平滑肌细胞和肌细胞,参与机械缓冲、脂质调控和膜蛋白运输。非小窝型膜微区可由Flotillin、Stomatin、四跨膜蛋白或受体自身聚集形成,不具有统一形态,但同样能够组织信号复合物。
1.4 膜微区的功能基础
膜微区通过提高相关蛋白的局部浓度、限制蛋白侧向扩散并改变局部脂质环境,调节离子通道门控、膜转运、受体磷酸化、内吞分选和细胞黏附。胆固醇富集或去垢剂不溶性只能提示膜环境特征,不能单独证明某一区域具有确定的生理功能。
2 膜微区支架蛋白的分类与分子组成
2.1 Caveolin与Cavin蛋白
Caveolin家族包括Caveolin-1、Caveolin-2和Caveolin-3。Caveolin-1主要表达于内皮细胞、脂肪细胞和成纤维细胞,Caveolin-3主要表达于骨骼肌和心肌。Cavin蛋白位于Caveolae胞质侧,与Caveolin共同稳定膜曲率和小窝结构。
2.2 SPFH结构域蛋白
SPFH超家族包括Stomatin、Flotillin、Prohibitin及其相关蛋白。其共同特征是含有保守的SPFH结构域,可参与膜脂结合、寡聚体形成和膜蛋白复合物组织。不同SPFH蛋白分别定位于质膜、内体、溶酶体或线粒体,具有不同的功能对象。
2.3 Flotillin蛋白
Flotillin-1和Flotillin-2可形成同源或异源寡聚体,并在质膜和内体系统中构建膜相关平台。Flotillin参与受体聚集、非网格蛋白依赖性内吞、细胞黏附和信号转导,其膜定位受脂质修饰和寡聚化共同调控。
2.4 四跨膜蛋白微区
CD9、CD63、CD81和CD151等四跨膜蛋白通过侧向结合整合素、受体和其他四跨膜蛋白,形成四跨膜蛋白富集微区。该类膜域参与免疫突触、细胞黏附、膜融合、外泌体形成和病原体进入。
2.5 膜骨架连接蛋白
Annexin蛋白可在Ca²⁺依赖条件下结合带负电荷磷脂,参与膜修复、膜曲率调节和囊泡融合。ERM蛋白、Spectrin和Actin等可将膜微区连接至细胞骨架,限制膜蛋白扩散并稳定受体、离子通道及黏附复合物。
表1 主要膜微区支架蛋白的结构与功能差异
蛋白类型 | 代表成员 | 主要结构特征 | 主要定位 | 主要功能 |
Caveolin | CAV1、CAV2、CAV3 | 发夹样膜插入区和寡聚化区域 | Caveolae及质膜 | 膜曲率、机械缓冲和信号调控 |
Cavin | CAVIN1、CAVIN2、CAVIN3 | 胞质侧膜结合复合物 | Caveolae胞质侧 | 稳定小窝结构和膜曲率 |
Stomatin家族 | STOM、STOML1、STOML2、STOML3、Podocin | SPFH结构域及寡聚化区域 | 质膜、内体、线粒体或裂孔膜 | 通道、转运蛋白和膜复合物调控 |
Flotillin | FLOT1、FLOT2 | SPFH结构域和脂质修饰区域 | 质膜及内体 | 受体聚集、内吞和信号组织 |
四跨膜蛋白 | CD9、CD63、CD81、CD151 | 四次跨膜结构 | 质膜、内体和外泌体 | 黏附、膜融合和囊泡形成 |
Annexin | ANXA1、ANXA2、ANXA5、ANXA6 | Ca²⁺依赖性磷脂结合结构 | 质膜内侧及囊泡膜 | 膜修复、曲率调节和囊泡运输 |
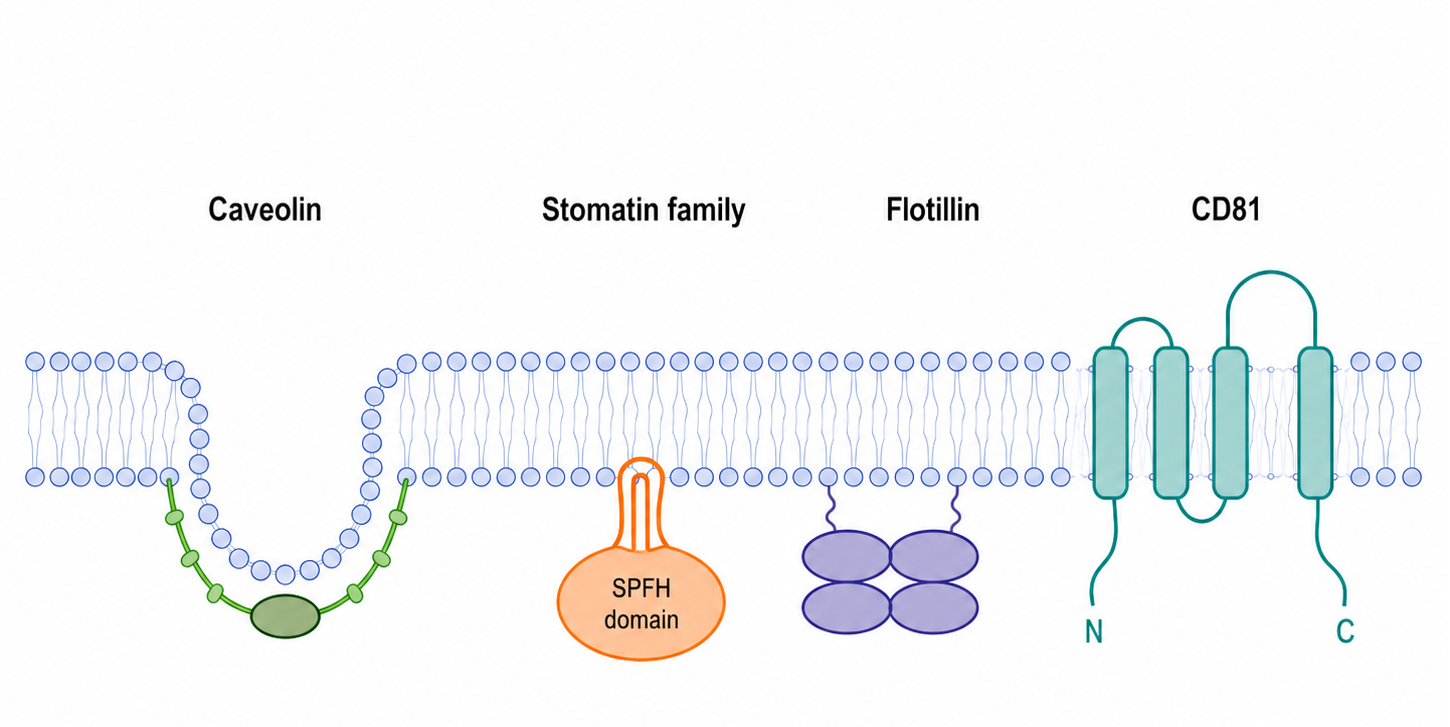
图1 主要细胞膜微区蛋白的膜拓扑结构示意
3 STOM及SPFH结构域蛋白的膜结合与寡聚化
3.1 STOM家族的分子组成
哺乳动物Stomatin家族主要包括STOM、STOML1、STOML2、STOML3和Podocin。STOM主要分布于质膜和内体,STOML1偏向内体—溶酶体系统,STOML2主要定位于线粒体内膜相关区域,STOML3参与感觉神经元膜微区组织,Podocin则定位于肾小球足细胞裂孔膜。
3.2 发夹样膜插入结构
STOM及多个相关成员含有短疏水区域,通常以发夹样方式插入脂双层的一侧,使蛋白主体位于膜的胞质面。该拓扑结构便于SPFH结构域和C端区域沿膜面与脂质、通道、转运蛋白及其他支架蛋白结合。
3.3 SPFH结构域介导的膜组织
SPFH结构域为膜脂结合和蛋白相互作用提供界面,但通常不直接形成离子通道。该结构域通过促进蛋白侧向聚集和复合物组装,使离子通道、转运蛋白或代谢复合物集中于特定膜域。不同成员对胆固醇、鞘脂或心磷脂的依赖存在差异。
3.4 寡聚化与高阶复合物形成
STOM、STOML3、Flotillin及其他SPFH蛋白能够形成二聚体或更高阶寡聚体。寡聚化可提高局部蛋白密度并稳定膜蛋白复合物。膜结合区、SPFH结构域或C端寡聚化区域发生突变时,即使总表达量没有明显变化,也可能因定位或复合物组装异常而失去功能。
3.5 翻译后修饰
棕榈酰化、肉豆蔻酰化、磷酸化和泛素化可影响膜微区蛋白的膜亲和力、稳定性及内吞运输。不同蛋白的修饰方式不同,功能分析需要结合修饰位点突变、质谱和亚细胞定位实验。
4 膜微区蛋白对离子通道和转运蛋白的调控
4.1 膜微区调控通道的主要方式
膜微区蛋白可通过直接结合通道、改变通道质膜表达、调节局部脂质环境和限制侧向扩散影响离子通道功能。检测到总电流变化时,需要区分通道数量、单通道开放概率和离子梯度变化。
4.2 STOM家族与酸敏感离子通道
STOM、STOML1和STOML3可调节部分酸敏感离子通道,但不同家族成员和不同ASIC亚型之间的调控方向并不一致。其作用可能涉及通道膜定位、门控状态和局部脂质环境,应通过电生理、表面表达和蛋白相互作用实验联合验证。
4.3 STOML3与机械敏感通道
STOML3可在感觉神经元膜上形成寡聚体并组织机械敏感膜复合物,从而增强部分机械刺激响应。STOML3本身并不是机械敏感通道,而是通过影响膜力学环境、通道聚集和复合物稳定性调节机械转导。
4.4 Caveolin与离子通道
Caveolin可与钙通道、钾通道、钠通道和瞬时受体电位通道形成复合物,并通过Caveolae定位、胆固醇环境及信号酶募集调节通道功能。不同细胞中调控方向可能不同,应同步检测通道表面表达、Caveolin结合状态和电生理参数。
4.5 Podocin与足细胞通道
Podocin可与Nephrin、CD2AP及TRPC6等裂孔膜蛋白形成复合物。Podocin寡聚化和胆固醇结合状态会影响裂孔膜结构及通道功能。NPHS2异常可能同时造成足细胞骨架、裂孔膜完整性和离子通道调控改变。
4.6 膜微区与转运蛋白
STOM可与红细胞及部分有核细胞中的葡萄糖转运蛋白形成复合物,影响其膜组织和运输功能。Flotillin与Caveolin还可参与多种转运蛋白的内吞和回收。转运研究应同时检测底物摄取、转运蛋白总量和质膜表达量。
5 膜微区与细胞骨架、囊泡运输及信号转导
5.1 膜微区与细胞骨架耦联
Actin、Spectrin和ERM蛋白在质膜下方形成骨架网络,可限制膜蛋白扩散并维持膜微区稳定。细胞骨架重组会改变通道聚集、受体移动和膜张力,但骨架抑制剂同时会影响细胞黏附、内吞和细胞形态,因此需要结合遗传学方法验证。
5.2 Caveolae与机械缓冲
细胞受到拉伸或膜张力升高时,部分Caveolae可展平并释放额外膜面积,降低质膜破裂风险。Caveolin或Cavin缺失会削弱这种机械缓冲能力,并改变机械敏感信号和膜修复过程。
5.3 内吞与膜蛋白分选
Caveolin、Flotillin、四跨膜蛋白和STOM相关蛋白可参与膜蛋白内吞、内体分选和膜回收。目标蛋白与内体标志物共定位不能区分其处于内吞、回收还是降解过程,需要结合时间追踪、表面生物素化和溶酶体抑制实验。
5.4 四跨膜蛋白与外泌体
CD81等四跨膜蛋白富集于内体和细胞外囊泡膜,可参与囊泡形成、货物分选、靶细胞识别和膜融合。CD81常作为细胞外囊泡相关标志物,但单独检测CD81不能证明样品中的全部颗粒均为外泌体,应结合粒径、形态及其他囊泡标志物分析。
5.5 受体信号复合物组织
膜微区可集中受体、激酶、磷酸酶和小GTP酶,改变信号起始速度和持续时间。Caveolin、Flotillin和四跨膜蛋白既可能促进受体聚集,也可能通过隔离、内吞或降解限制信号。
5.6 线粒体膜微区
STOML2和Prohibitin可在线粒体内膜组织呼吸链、脂质和嵴结构。STOML2异常会影响呼吸链复合物稳定、氧化磷酸化和线粒体应激。该类结构属于细胞器膜微区,与质膜胆固醇相关膜域具有不同的脂质组成和功能。
6 膜微区蛋白异常与血液系统、神经系统及肿瘤疾病
6.1 红细胞膜与血液系统异常
红细胞中的STOM与膜骨架、离子通道和葡萄糖转运蛋白形成复合物。过度水合型遗传性口形红细胞增多症中常见Stomatin明显减少,但这种减少通常是原发性膜离子通透异常的继发结果,不能将STOM缺失视为所有病例的直接病因。
6.2 感觉神经与机械转导
STOML3参与触觉感受神经元和伤害性感受神经元的机械刺激响应。降低STOML3表达或抑制其寡聚化可削弱部分机械敏感反应,因此适合用于机械痛、触觉和感觉神经末梢膜组织研究。
6.3 神经系统膜微区信号
Caveolin、Flotillin和四跨膜蛋白可影响神经递质受体、离子通道和突触膜蛋白定位。膜胆固醇变化或支架蛋白异常可能改变突触传递和轴突信号,但不同神经细胞和脑区的膜微区组成存在明显差异。
6.4 肌肉及肾脏相关疾病
CAV3异常可影响肌细胞Caveolae和膜稳定性,与部分肌营养不良及肌病相关。NPHS2异常可导致Podocin膜定位或寡聚化受损,破坏足细胞裂孔膜并引起遗传性蛋白尿;NPHS1异常则可直接影响Nephrin介导的裂孔膜结构和信号。
6.5 肿瘤细胞增殖与迁移
CAV1、FLOT1、FLOT2、STOML2和CD81等膜微区蛋白在多种肿瘤中可出现表达异常,并影响受体信号、细胞迁移、内吞、外泌体和能量代谢。CAV1在不同肿瘤阶段和细胞区室中可能表现出促癌或抑癌作用,不能仅根据表达升高判断其功能方向。
6.6 肿瘤代谢与治疗反应
STOML2可通过维持线粒体内膜结构和呼吸链功能支持高代谢肿瘤细胞。Flotillin和CD81则可通过调节受体回收、囊泡通信和细胞黏附影响侵袭及治疗反应。建立因果关系需要结合基因敲低、敲除、回补和体内模型。
7 膜微区蛋白的相互作用与功能研究方法
7.1 去垢剂不溶性膜分离
低温Triton X-100提取和密度梯度离心常用于分离去垢剂不溶性膜组分,但去垢剂可重新分配膜脂和蛋白。目标蛋白进入低密度组分只能提示其与特定膜环境相关,不能单独证明其在活细胞中形成脂筏。
7.2 亚细胞分馏与表面蛋白检测
膜蛋白分馏、细胞表面生物素化和膜片分离可用于区分总表达量与质膜表达量。实验应使用质膜、内体、线粒体和胞质标志蛋白评价分馏纯度,并避免强去垢剂破坏天然寡聚体。
7.3 显微成像与膜扩散分析
共聚焦显微镜适合观察细胞尺度定位,超分辨成像可分析纳米级聚集,单分子追踪和荧光恢复可检测膜蛋白扩散。单纯共定位不能证明蛋白直接结合,需要联合免疫共沉淀、邻近检测或能量转移分析。
7.4 蛋白相互作用与寡聚化
免疫共沉淀适合验证较稳定的蛋白复合物,交联和邻近标记可检测弱相互作用及局部蛋白网络,蓝色非变性聚丙烯酰胺凝胶电泳(BN-PAGE)和荧光共振能量转移可用于评价寡聚化。高分子量条带还可能来源于非特异性聚集,应设置缺失突变体和裂解条件对照。
7.5 脂质依赖性验证
甲基-β-环糊精常用于降低膜胆固醇,Filipin可用于观察游离胆固醇分布。胆固醇耗竭会广泛改变膜流动性、细胞活率和通道表面表达,因此应设置胆固醇回补组,并同步检测膜完整性。
7.6 离子通道与转运功能
膜片钳可直接测量离子通道电流,钙成像和膜电位探针适合进行功能筛查,荧光或同位素底物摄取可评价膜转运。功能结果应与目标蛋白质膜表达、膜微区定位和支架蛋白相互作用联合分析。
7.7 基因功能与结构域验证
siRNA和CRISPR/Cas9可用于降低或敲除膜微区蛋白,野生型回补及膜结合、寡聚化或脂质结合缺陷突变体可用于确定关键结构域。敲低或敲除表型应通过独立序列、蛋白检测和回补实验确认。
7.8 外泌体与四跨膜蛋白研究
CD81荧光融合蛋白可用于追踪囊泡形成、释放和细胞间转移,CD81敲低或敲除模型可用于评价其在囊泡生物发生和靶细胞摄取中的作用。过表达示踪可能改变蛋白聚集和囊泡组成,因此应与内源性CD81检测结果对照。
8 细胞膜微区结构与功能研究产品
表2 STOM、Caveolin、Flotillin及足细胞膜微区研究产品
货号 | 名称 | 级别和纯度 | 产品类型 | 主要用途 |
OB-1, STOML3低聚抑制剂 | ≥98%(HPLC) | 小分子抑制剂 | 抑制STOML3寡聚化,研究机械敏感通道及感觉传导调控 | |
Recombinant Human STOM Protein | ≥90%(SDS-PAGE) | 重组蛋白 | STOM蛋白结合、抗体评价及体外相互作用研究 | |
Recombinant Stomatin Like 2 Antibody | 敲低验证 | 重组抗体 | STOML2表达、线粒体定位及功能研究 | |
STOM Human Pre-designed siRNA Set A | — | siRNA | 降低STOM表达,评价离子通道、膜转运及膜微区功能 | |
STOML2 Human Pre-designed siRNA Set A | — | siRNA | 研究STOML2对线粒体膜组织、能量代谢及肿瘤细胞功能的影响 | |
STOML3 Human Pre-designed siRNA Set A | — | siRNA | 研究STOML3寡聚化、机械敏感通道及感觉转导 | |
Recombinant Caveolin 1 Antibody | 敲除验证 | 重组抗体 | Caveolin-1表达、定位及Caveolae结构研究 | |
Recombinant Caveolin-2 Antibody | 重组, ExactAb™, 已验证, 0.2 mg/mL | 重组抗体 | Caveolin-2表达及Caveolin复合物研究 | |
Recombinant Caveolin-3 Antibody | 重组, ExactAb™, 已验证, 见COA | 重组抗体 | 肌细胞Caveolae及Caveolin-3相关疾病研究 | |
Recombinant Human Caveolin-1 Protein | 无载体, ≥95%(SDS-PAGE) | 重组蛋白 | Caveolin-1蛋白相互作用、抗体评价及机制研究 | |
Recombinant Flotillin 1 Antibody | 重组, ExactAb™, 敲低验证, 已验证, 见COA | 重组抗体 | Flotillin-1膜微区、内吞及信号复合物研究 | |
Recombinant Flotillin 2/ESA Antibody | 重组, ExactAb™, 已验证, 0.6 mg/mL | 重组抗体 | Flotillin-2表达、定位及寡聚化研究 | |
NPHS1 Human Pre-designed siRNA Set A | — | siRNA | 降低Nephrin表达,研究足细胞裂孔膜复合物 | |
NPHS2 Human Pre-designed siRNA Set A | — | siRNA | 降低Podocin表达,研究裂孔膜微区及离子通道调控 | |
Nphs1 Mouse Pre-designed siRNA Set A | — | siRNA | 小鼠Nephrin基因功能及足细胞疾病模型研究 |
表3 CD81四跨膜蛋白微区与外泌体研究产品
货号 | 名称 | 级别和纯度 | 产品类型 | 主要用途 |
CD81 Human Pre-designed siRNA Set A | — | siRNA | 降低CD81表达,研究四跨膜蛋白微区、黏附和囊泡功能 | |
CD81基因敲除HEK293T细胞RIPA裂解液 | — | 基因敲除验证样品 | 用于CD81抗体蛋白检测特异性评价 | |
CD81基因敲除HEK293T细胞Trizol裂解液 | — | 基因敲除验证样品 | 用于CD81基因表达及核酸检测验证 | |
Lenti-CMV-CD81-EGFP (外泌体示踪用) | 10^9TU/ml | 慢病毒示踪载体 | CD81阳性细胞外囊泡的绿色荧光示踪 | |
Lenti-CMV-CD81-mCherry (外泌体示踪用) | 10^9TU/ml | 慢病毒示踪载体 | CD81阳性细胞外囊泡的红色荧光示踪 | |
Recombinant CD81/TAPA-1 Antibody | 无动物源, 无载体, 重组, ExactAb™, 无叠氮钠, 已验证, 高性能, PBS Only, ≥95%(SDS-PAGE), 见COA | 重组抗体 | CD81表达、定位及蛋白相互作用研究 | |
Recombinant CD81/TAPA-1 Antibody (AF488) | ExactAb™, 已验证, 5 μL/test | 荧光标记抗体 | CD81荧光成像和流式表型检测 | |
Recombinant Human CD81 Protein | 无动物源, 无载体, His标签, PBS Only, ≥95%(SDS-PAGE), 见COA | 重组蛋白 | CD81结合、抗体评价及四跨膜蛋白复合物研究 |
细胞膜微区的功能来源于脂质、支架蛋白、膜骨架和效应蛋白的协同组织。联合分析蛋白定位、寡聚化、脂质依赖性、膜运输和功能读数,才能区分膜蛋白表达改变、膜区室重分布与离子通道门控变化。
更多相关文章,详见下方:
[1] 细胞骨架染色


 危险品化学品经营许可证(带存储)