
关于诺丝菌素的16个常见问题
关于诺丝菌素的16个常见问题
一、诺丝菌素的作用机制是什么?
答:诺丝菌素通过抑制蛋白质合成发挥抗微生物作用,核心作用环节位于翻译延伸阶段:
①干扰mRNA易位(translocation)步骤,降低肽链延伸效率,与氯霉素(Chloramphenicol)、四环素(Tetracycline)等蛋白合成抑制剂在表型层面具有可比性,常用于机制对照。
②与细菌核糖体亚基结合,导致mRNA与tRNA配对及读码框定位偏差,引发遗传信息错读,在与庆大霉素(Gentamicin)等核糖体靶向药物并行设计时,可用于区分不同核糖体干预方式的差异。
③错误氨基酸被掺入新生肽链,形成非功能性蛋白并在细胞内累积,从而造成生长抑制并可进一步导致细胞死亡。
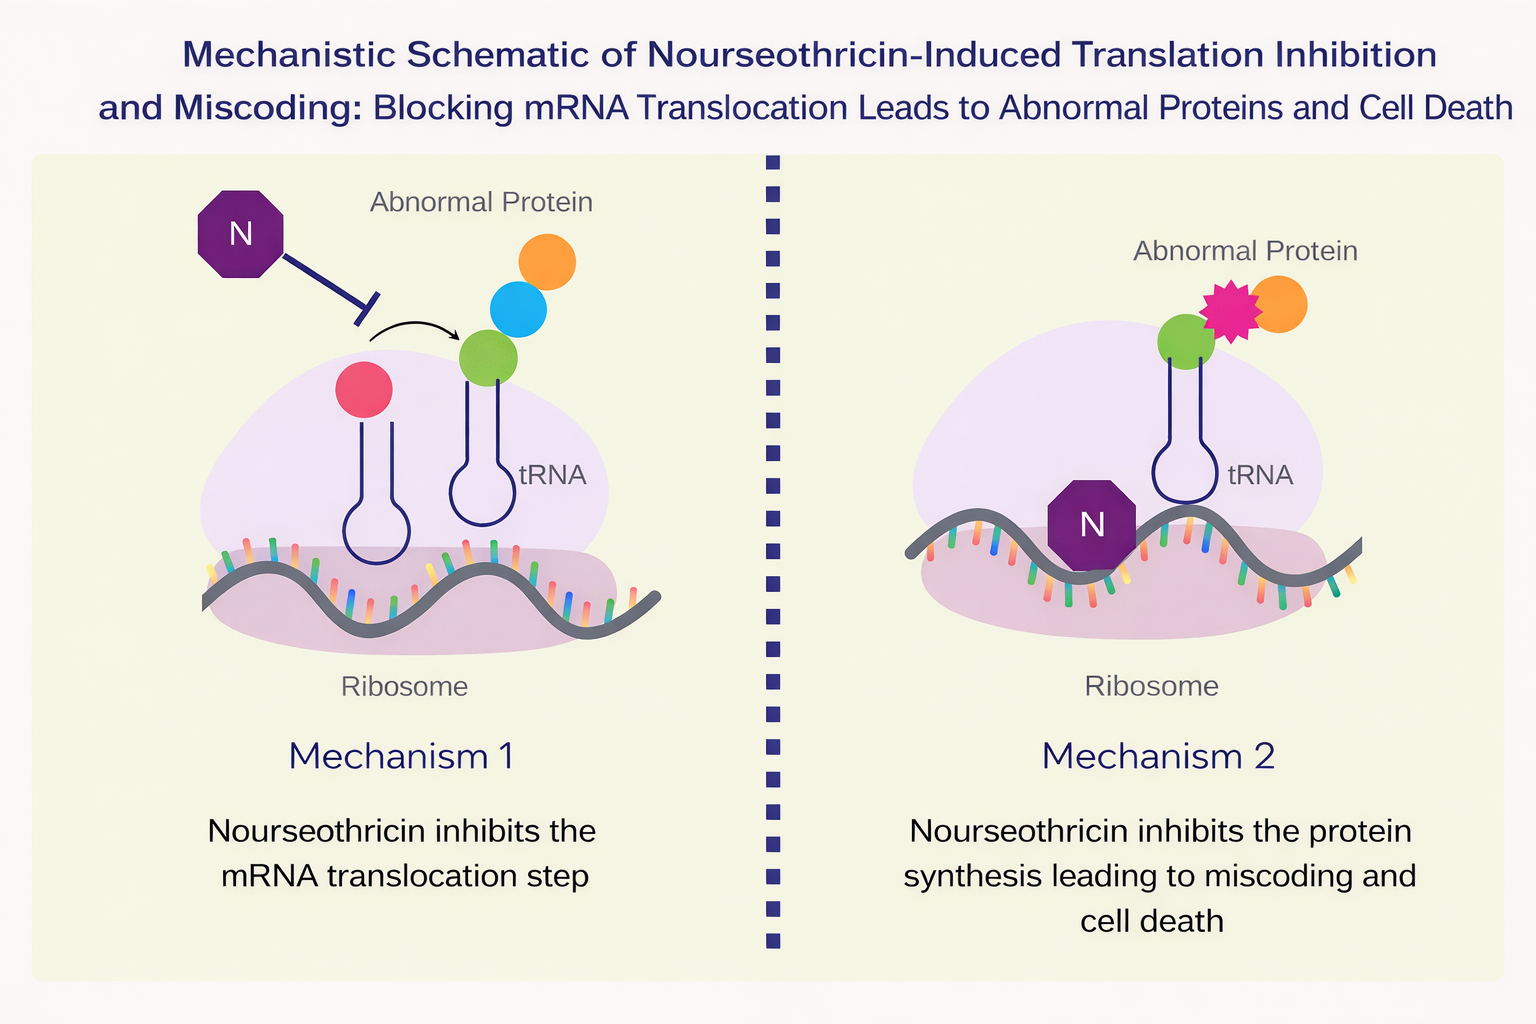
图一 诺丝菌素抑制核糖体翻译并诱导错译的机制示意图
二、clonNAT与诺丝菌素是同一种物质吗?
答:在科研使用语境中,clonNAT通常作为诺丝菌素的常用名称或商品名使用,二者一般指向同一类用于遗传筛选的抗生素制剂。不同来源试剂在盐型、纯度与配方上可能存在差异,但在“用于诺丝菌素筛选”的功能指代上通常一致;若载体层面还需维持质粒骨架,实验中常与氨苄西林(Ampicillin)或卡那霉素(Kanamycin)形成并行选择压力,以实现质粒维持与目标构建筛选的分层管理。
三、诺丝菌素如何被失活?
答:诺丝菌素可被乙酰辅酶A依赖的链霉丝菌素乙酰转移酶失活(常见表述为ACSAT),该过程以乙酰辅酶A(Acetyl-CoA)作为乙酰基供体,对分子中关键氨基位点进行N-乙酰化修饰,导致抗生素与靶位点的有效相互作用下降,抗微生物活性随之降低或丧失,从而形成耐药表型。
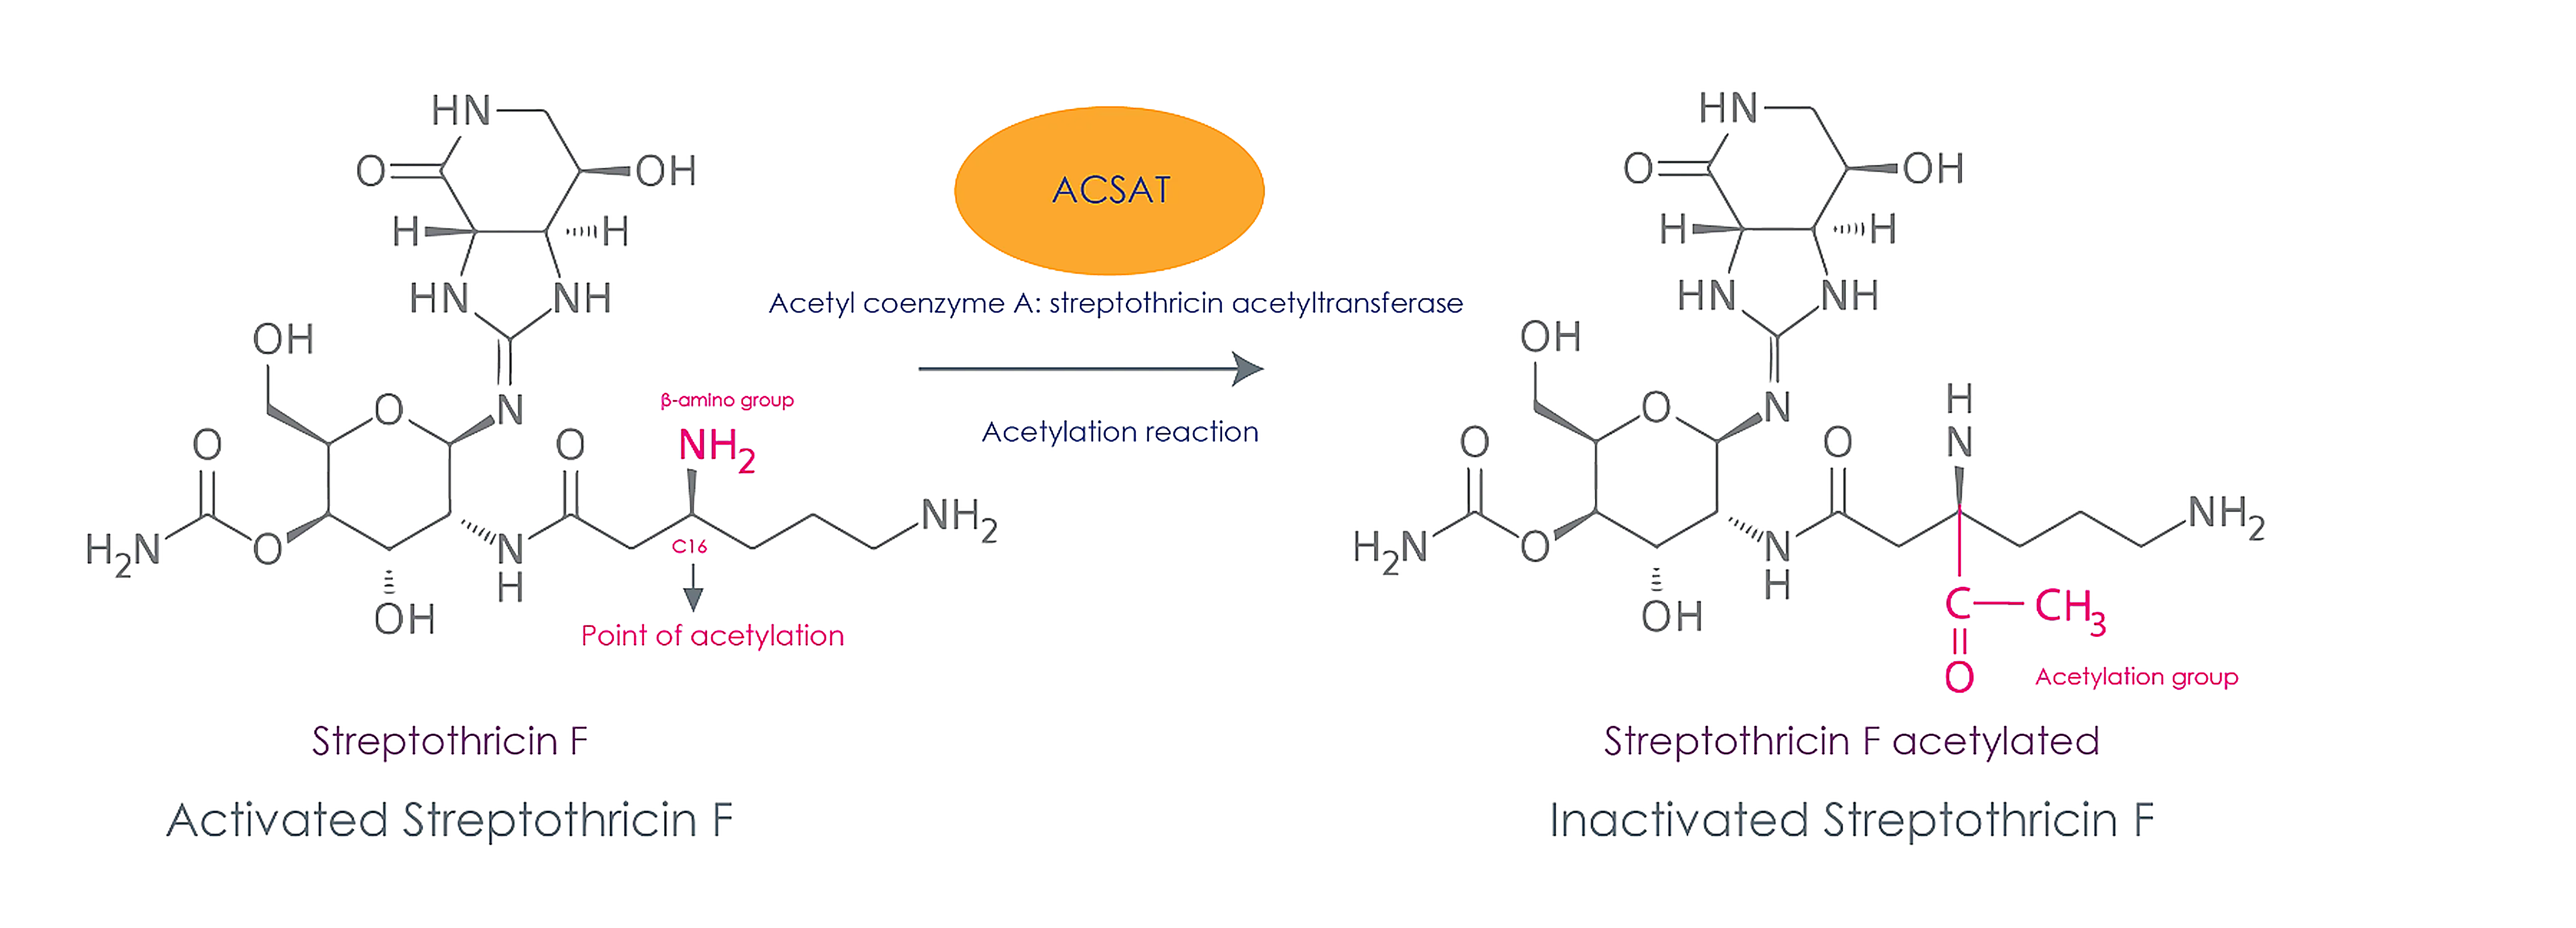
图二 ACSAT介导Streptothricin F乙酰化失活机制示意图
四、诺丝菌素是抑菌还是杀菌?
答:诺丝菌素可表现为抑菌或杀菌效应,具体取决于菌种/菌株、培养条件与药物浓度。建议以MIC与MBC进行规范判定:
①MIC(最低抑菌浓度):24小时内抑制可见生长的最低浓度,通常以Mueller-Hinton肉汤(MH Broth)或LB肉汤作为基础培养体系完成测定。
②MBC(最低杀菌浓度):24小时内导致细菌数量显著下降的最低浓度。
③常用判据为MBC/MIC≤4倾向杀菌,>4倾向抑菌;若需从细胞层面辅助判读死亡表型,可结合碘化丙啶(Propidium Iodide, PI)等膜完整性染料进行验证。
五、诺丝菌素有哪些常见名称或别名?
答:常见名称包括:
①诺丝菌素(Nourseothricin)
②clonNAT
③NTC
④诺丝菌素硫酸盐(Nourseothricin sulfate)
⑤链霉丝菌素硫酸盐(Streptothricin sulfate)
六、诺丝菌素的结构特征是什么?
答:诺丝菌素属于链霉丝菌素类抗生素,其结构可概括为三类关键结构单元:
①氨基糖相关核心结构。
②streptolidine内酰胺结构单元。
③β-赖氨酸相关结构单元。
围绕结构鉴定与稳定性评估的分析流程中,常使用甲醇(Methanol)、乙腈(Acetonitrile)与甲酸(Formic Acid)等LC-MS级溶剂与添加剂完成色谱质谱检测。
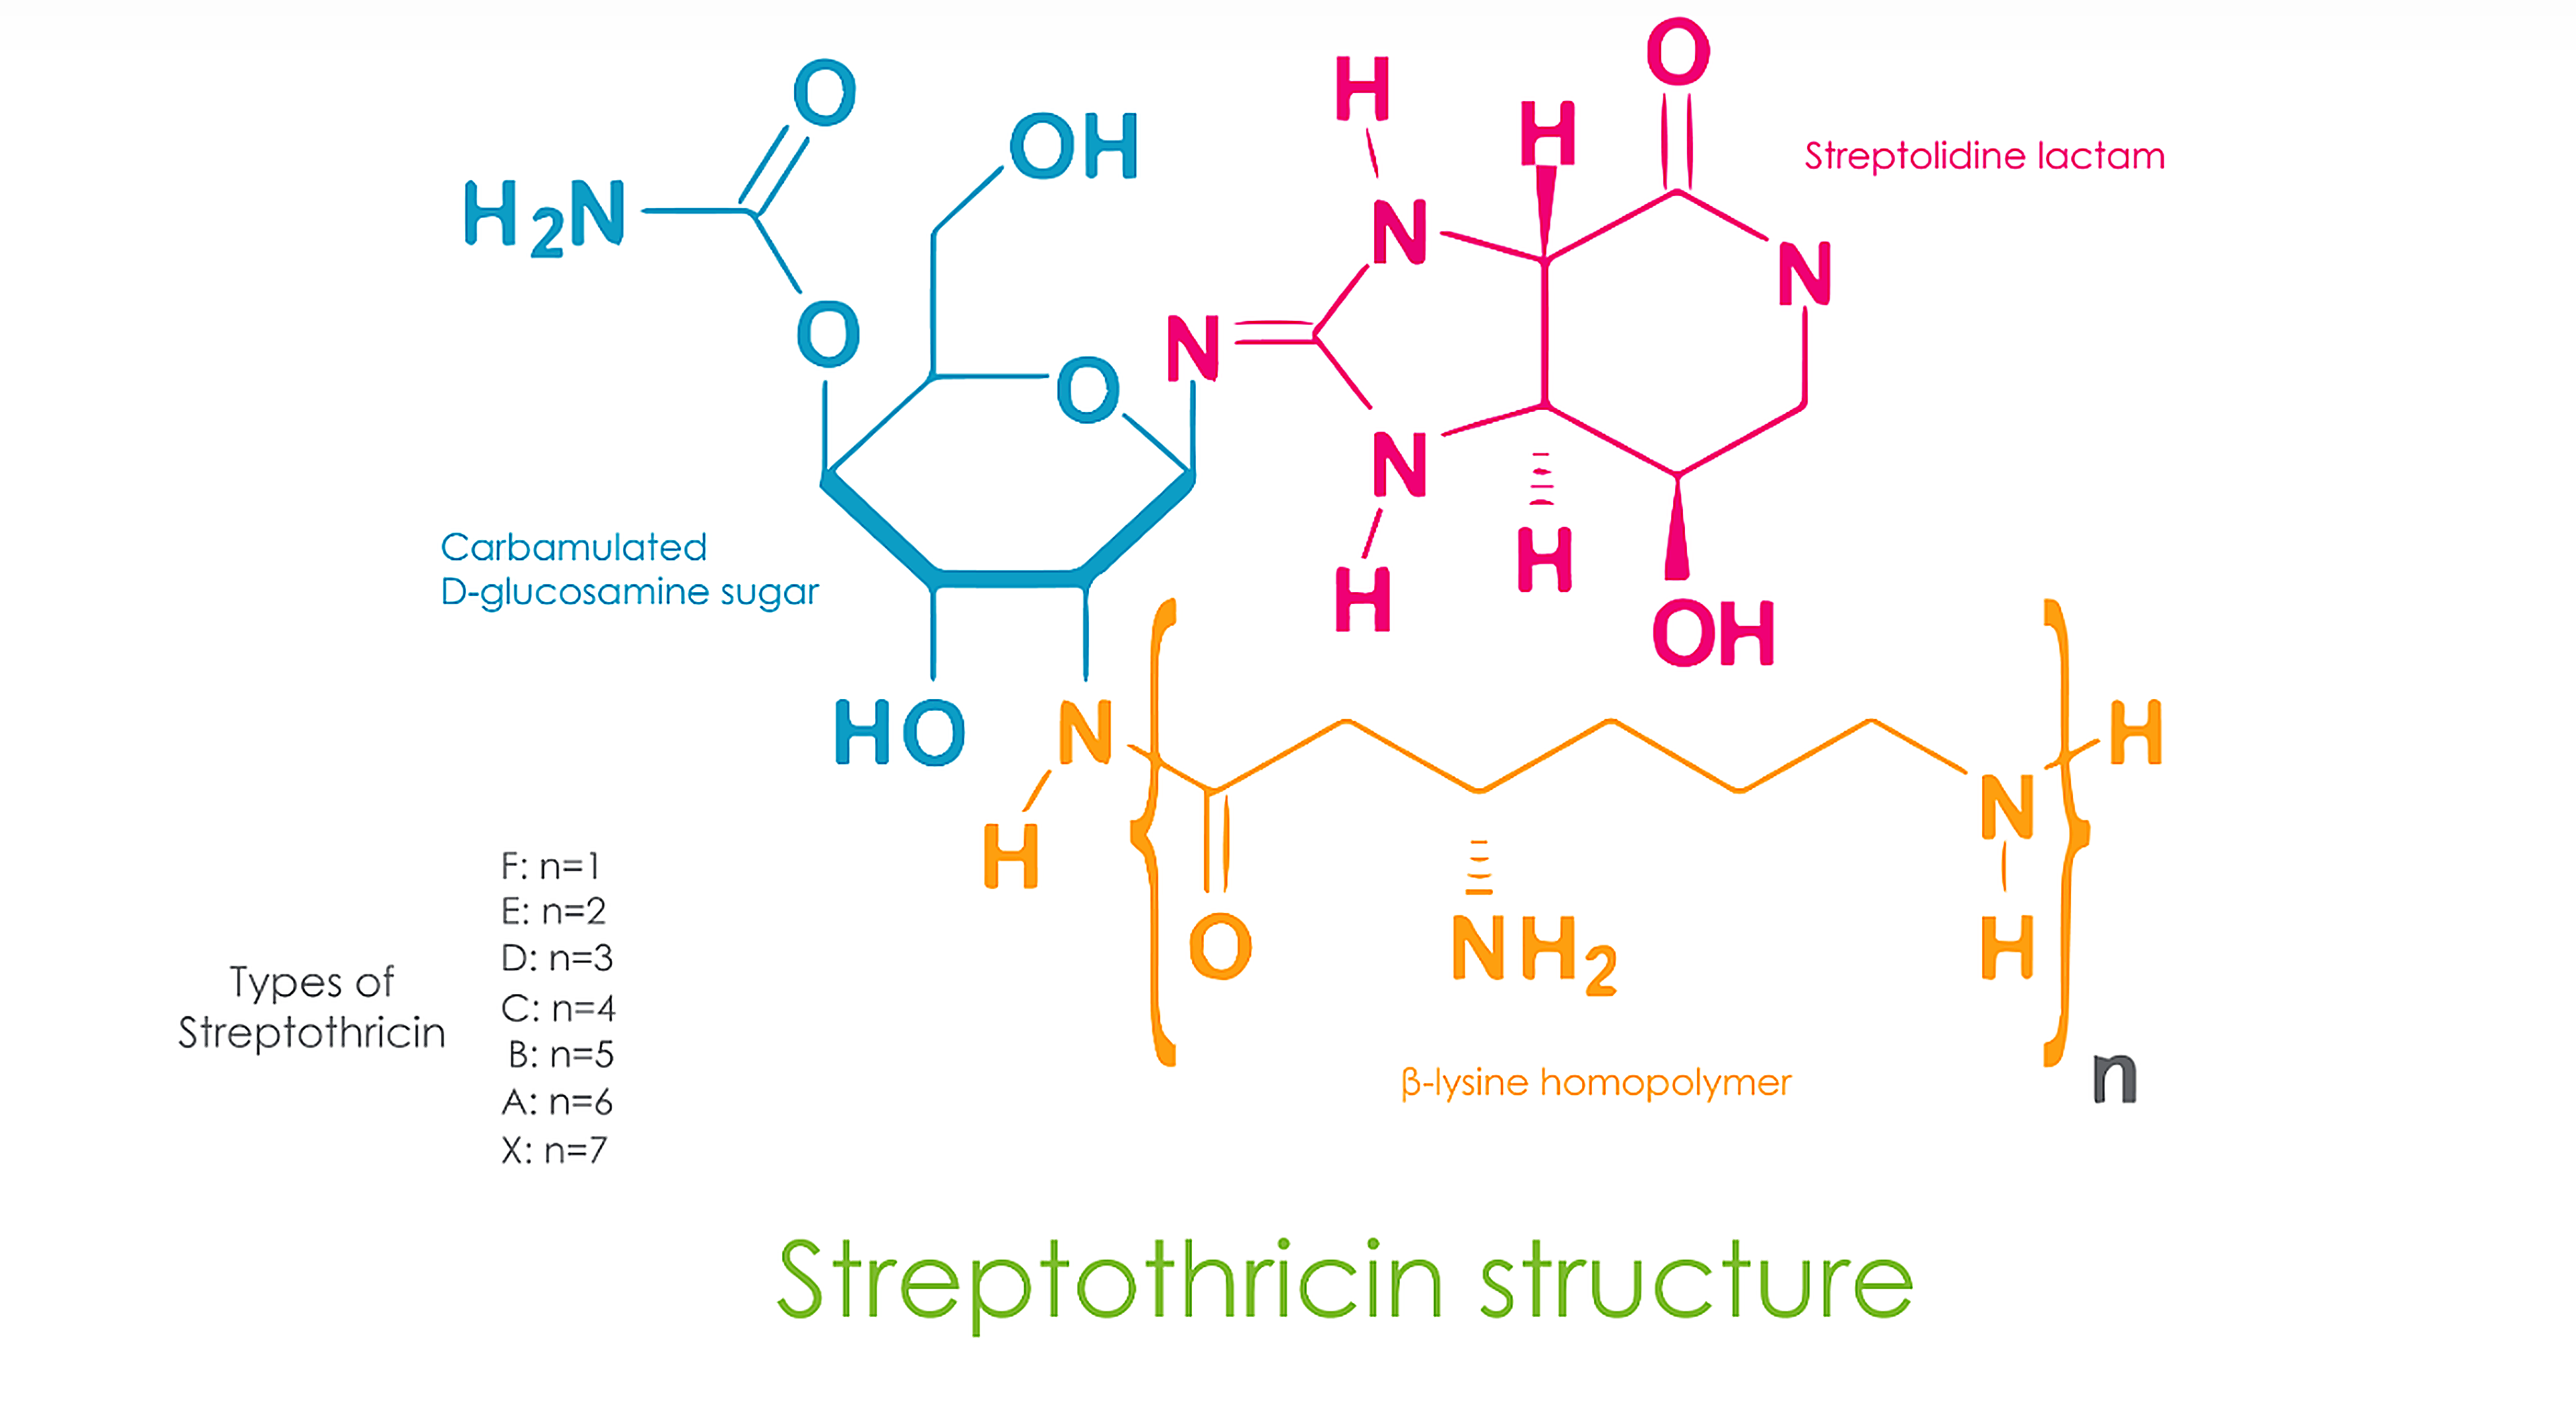
图三 诺丝菌素结构组成示意图:氨基糖、Streptolidine lactam与β-赖氨酸同聚物(n)
七、诺丝菌素的耐药基因有哪些?
答:常用耐药基因为sat1、sat2、sat3、sat4。sat基因编码乙酰转移酶,介导诺丝菌素的N-乙酰化失活,从而赋予宿主耐药性;在分子层面验证sat基因表达时,常以TRIzol类试剂进行RNA提取,配合逆转录试剂盒与SYBR Green qPCR Mix进行转录水平检测。
八、诺丝菌素对革兰阴性菌或革兰阳性菌是否有效?
答:诺丝菌素对革兰阴性菌与革兰阳性菌均可有效。常见敏感对象包括:
①革兰阴性菌:大肠杆菌、肺炎克雷伯菌、根癌农杆菌、土拉弗朗西斯菌、铜绿假单胞菌等。
②革兰阳性菌:枯草芽孢杆菌、微球菌、屎肠球菌、金黄色葡萄球菌等。
针对革兰阳性菌样本处理或转化相关流程,溶菌酶(Lysozyme)常用于细胞壁预处理;酵母与部分真菌体系中则更常见溶壁酶(Lyticase)用于细胞壁消化。
九、诺丝菌素属于哪一类抗生素?
答:诺丝菌素更严谨的分类为链霉丝菌素(streptothricin)类抗生素。其功能效应表现为核糖体靶向的翻译抑制与错读,但在结构分类上不宜简单等同于典型氨基糖苷类;在设置并行对照时,卡那霉素(Kanamycin)、链霉素(Streptomycin)或庆大霉素(Gentamicin)常用于代表性氨基糖苷对照体系构建。
十、诺丝菌素对哪些微生物有效?
答:诺丝菌素具有较广抗谱,除细菌外,也可用于多类真核模型体系的遗传筛选。常见适用范围包括:
①细菌:多种革兰阴性与革兰阳性细菌。
②酵母:例如酿酒酵母、裂殖酵母等。
③真菌:丝状真菌及部分担子菌。
④原生生物:例如利什曼原虫、弓形虫等。
⑤微藻与植物:在部分体系中可作为筛选压力使用。
酵母培养实践中常与YPD培养基、SD缺陷培养基配套使用;植物组织培养流程中常以MS基础盐、蔗糖、琼脂粉构建基础培养体系,并根据再生路径配置6-BA与NAA等植物激素。
类群 | 物种 | MIC*(µg/mL) | 筛选浓度(µg/mL) |
革兰氏阴性菌 | 农杆菌(Agrobacterium tumefaciens) | 100 | — |
革兰氏阴性菌 | 大肠杆菌(Escherichia coli) | 2–12 | 50 |
革兰氏阴性菌 | 土拉弗朗西斯菌(Francisella tularensis) | — | 50 |
革兰氏阴性菌 | 铜绿假单胞菌(Pseudomonas aeruginosa) | 50 | 100 |
革兰氏阳性菌 | 枯草芽孢杆菌(Bacillus subtilis) | 5 | 50 |
革兰氏阳性菌 | 屎肠球菌(Enterococcus faecium) | 8–256 | 500 |
革兰氏阳性菌 | 金黄色葡萄球菌(Staphylococcus aureus) | 2–12 | 50 |
链霉菌类(Streptomycetes) | 活地链霉菌(Streptomyces lividans) | 6 | 100 |
酵母 | 白色念珠菌(Candida albicans) | 200 | 250–450 |
酵母 | 汉逊酵母(Hansenula polymorpha) | — | 100 |
酵母 | 克鲁维酵母(Kluyveromyces lactis) | — | 50 |
酵母 | 毕赤酵母(Pichia pastoris) | — | 100 |
酵母 | 酿酒酵母(Saccharomyces cerevisiae) | 25 | 75–100 |
酵母 | 裂殖酵母(Schizosaccharomyces pombe) | 40 | 100 |
其他子囊菌门(Ascomycota) | 产头孢霉(Acremonium chrysogenum) | — | 25 |
其他子囊菌门(Ascomycota) | 构巢曲霉(Aspergillus nidulans) | — | 120 |
其他子囊菌门(Ascomycota) | 栗疫菌(Cryphonectria parasitica) | — | 100 |
其他子囊菌门(Ascomycota) | 粗糙脉孢菌(Neurospora crassa) | — | 200 |
其他子囊菌门(Ascomycota) | 青霉(Penicillium chrysogenum) | — | 150–200 |
其他子囊菌门(Ascomycota) | 粪壳菌(Podospora anserina) | — | 50 |
其他子囊菌门(Ascomycota) | 大壳孢菌(Sordaria macrospora) | — | 50 |
其他子囊菌门(Ascomycota) | 犬小孢子菌/皮肤癣菌(Trichophyton mentagrophytes) | — | 50 |
担子菌门(Basidiomycota) | 新型隐球菌(Cryptococcus neoformans) | — | 100 |
担子菌门(Basidiomycota) | 裂褶菌(Schizophyllum commune) | 3 | 8 |
担子菌门(Basidiomycota) | 玉米黑粉菌(Ustilago maydis) | — | 75–100 |
原生动物 | 利什曼原虫(Leishmania tarentolae、L. major 等) | — | 100 |
原生动物 | 植物锥虫(Phytomonas serpens) | — | 100 |
原生动物 | 恶性疟原虫(Plasmodium falciparum) | 75** | — |
原生动物 | 弓形虫(Toxoplasma gondii) | — | 500 |
微藻 | 三角褐指藻(Phaeodactylum tricornutum) | — | 50–250 |
微藻 | 假微型海链藻(Thalassiosira pseudonana) | — | 100 |
植物 | 拟南芥(Arabidopsis thaliana) | 20 | 50–200 |
植物 | 胡萝卜(Daucus carota) | — | 100 |
植物 | 百脉根(Lotus corniculatus) | — | 50 |
植物 | 烟草(Nicotiana tabacum) | — | 100 |
植物 | 水稻(Oryza sativa) | 20 | 200 |
十一、诺丝菌素筛选应使用什么浓度?
答:诺丝菌素筛选浓度通常位于50–100 µg/mL区间,但该范围不具备通用性,必须依据宿主体系确定。推荐方法学流程为:
①建立未转化对照的浓度梯度杀灭曲线。
②选取在既定时间窗内完全抑制对照生长的最低浓度区间。
③以该区间下限或略高浓度作为筛选浓度,以兼顾筛选强度与阳性克隆生长负担;为降低移液误差导致的有效浓度漂移,常将储备液以无菌水或PBS预稀释为工作液后加入体系。
生物 | 类型 | 浓度 |
大肠杆菌(Escherichia coli) | 细菌 | 50 µg/mL |
玉米黑粉菌(Ustilago maydis) | 真菌 | 75 µg/mL |
酿酒酵母(Saccharomyces cerevisiae) | 酵母 | 100 µg/mL |
利什曼原虫(Leishmania sp.) | 原生动物 | >100 µg/mL |
新型隐球菌(Cryptococcus neoformans) | 真菌 | 100 µg/mL |
拟南芥(Arabidopsis thaliana) | 植物 | 100 µg/mL |
十二、诺丝菌素适合用于细胞培养筛选吗?
答:诺丝菌素常用于植物、真菌、酵母与细菌等体系的遗传筛选。由于存在肾毒性相关毒理学风险的文献报道,诺丝菌素不用于人或动物的抗感染治疗;在高等级细胞或组织培养相关场景中,若涉及环境与表面去污,次氯酸钠(Sodium hypochlorite)溶液是实验室常用的消毒处理试剂之一,但需严格遵循安全规范与材料兼容性要求。
十三、诺丝菌素与其他常用抗生素的主要差异是什么?
答:主要差异体现在结构特征与耐药机制:
①结构上不具备多种典型氨基糖苷共有的2-deoxystreptamine环核心。
②耐药机制以sat乙酰转移酶介导的乙酰化失活为代表。
③在多物种筛选体系中可作为与其他抗性标记并行的选择压力来源,用于构建多重筛选策略;在真核筛选场景中,潮霉素B(Hygromycin B)或G418常作为其他筛选压力与之并行设计,以实现不同遗传事件的分层选择。
十四、诺丝菌素在生物技术中的主要用途有哪些?
答:主要用途为遗传工程筛选与稳定维持,包括:
①细菌转化体筛选(革兰阴性与阳性)。
②酵母与丝状真菌转化体筛选。
③原生生物、微藻与植物遗传修饰筛选。
④与sat耐药盒配套,用于多重遗传标记体系构建与长期实验维持;阳性克隆验证时,琼脂糖(Agarose)、TAE/TBE缓冲液与核酸染料(如GelRed类)是电泳检测环节常用的基础试剂组合。
十五、如何配制诺丝菌素储备液?
答:建议采用“无菌配制—过滤除菌—分装冻存”的标准流程,以减少污染与效价漂移风险:
①以无菌水充分溶解,配制所需浓度储备液。
②经0.22 µm滤膜过滤除菌。
③按一次用量分装,避免反复冻融。
④-20°C避光保存,并在使用中记录开封时间与冻融次数。
十六、诺丝菌素是否具有毒性?
答:诺丝菌素存在毒性风险的文献报道,尤其与肾毒性相关。在动物研究中,高剂量静脉给药可出现明显毒性表现。实验室使用应视为具有潜在危害的化学品:
①佩戴手套、护目镜与实验服,避免皮肤与黏膜接触。
②配制与分装尽量在通风条件下进行,减少粉尘与气溶胶暴露。
③废液与污染耗材按机构危险废弃物流程处置,避免进入常规生活垃圾或下水系统。
参考文献
[1] Cundliffe, E. (1989). How antibiotic-producing organisms avoid suicide. Annual Review of Microbiology, 207–233.
[2] Derbise, A., Dyke, K.G.H., El Solh, N. (1996). Characterization of a Staphylococcus aureus transposon, Tn5405, located within Tn5404 and carrying the aminoglycoside resistance genes, aphA-3 and aadE. Plasmid 35, 174–188.
[3] Dowgiallo, M.G., Miller, B.C., Kassu, M., Smith, K.P., Fetigan, A.D., Guo, J.J., Kirby, J.E., Manetsch, R. (2022). The convergent total synthesis and antibacterial profile of the natural product streptothricin F. Chemical Science 13, 3447–3453.
[4] Zähringer, U., Voigt, W., Seltmann, G. (1993). Nourseothricin (streptothricin) inactivated by a plasmid pIE636 encoded acetyl transferase of Escherichia coli: location of the acetyl group. FEMS Microbiology Letters 110, 331–334.
[5] Hahn, F. (1983). Modes and mechanisms of microbial growth inhibitors.
[6] Haupt, I., Hübener, R., Thrum, H. (1978). Streptothricin F, an inhibitor of protein synthesis with miscoding activity. Journal of Antibiotics (Tokyo) 31, 1137–1142.
[7] Inamori, Y., Kato, Y., Morimoto, K., Morisaka, K., Saito, G., Sawada, Y., Taniyama, H. (1979). Toxicological approaches to streptothricin antibiotics. III. Biological studies on delayed toxicity of streptothricin antibiotics in rats. Chemical and Pharmaceutical Bulletin, 2091.
[8] Makeyev, A.V., Liebhaber, S.A. (2002). The poly(C)-binding proteins: a multiplicity of functions and a search for mechanisms. RNA 8, 265–278.
[9] Robinson, H., Graessle, O., Smith, D. (1944). Studies on the toxicity and activity of streptothricin. Science (New Series) 99(2583).
[10] Schwabacher, H., Hughes, W.H. (1954). Bacterial resistance to antiseptics. British Medical Journal 2, 247.
[11] Smith, K.P., Kang, Y.-S., Green, A.B., Dowgiallo, M.G., Miller, B.C., Chiaraviglio, L., Truelson, K.A., Zulauf, K.E., Rodriguez, S., Manetsch, R., Kirby, J.E. (2021). Profiling the in vitro and in vivo activity of streptothricin-F against carbapenem-resistant Enterobacterales: a historic scaffold with a novel mechanism of action. bioRxiv.
[12] Waksman, S.A., Woodruff, H.B. (1942). Streptothricin, a new selective bacteriostatic and bactericidal agent, particularly active against Gram-negative bacteria. Proceedings of the Society for Experimental Biology and Medicine 49, 207–210.
[13] Wendlandt, S., Feßler, A.T., Monecke, S., Ehricht, R., Schwarz, S., Kadlec, K. (2013). The diversity of antimicrobial resistance genes among staphylococci of animal origin. International Journal of Medical Microbiology 303, 338–349.
更多相关文章,详见下方:
[2] 抗生素如何卡住细菌蛋白质合成(附典型产品与选型导航表)
[3] 氨基糖苷类抗生素潮霉素 B的生物学特性与应用价值研究
[4] 抗生素阻断细菌蛋白合成
[5] 阿拉丁®实验常用抗生素


 危险品化学品经营许可证(带存储)