
5mC DNA甲基化的调控机制
5mC DNA甲基化的调控机制
DNA甲基化是哺乳动物重要的表观遗传调控方式,其中5-甲基胞嘧啶(5-methylcytosine,5mC)是主要研究形式。5mC由DNMT家族建立和维持,经TET家族连续氧化后可通过复制依赖性稀释或TDG-BER途径去除,并与甲基化读取蛋白、组蛋白修饰及染色质状态共同调节基因表达和基因组稳定性。
关键词:DNA甲基化;5mC;DNMT;TET;5hmC;UHRF1;TDG;表观遗传
1 5mC的形成与功能定位
1.1 5mC的化学修饰特征
5mC是在胞嘧啶嘧啶环第5位碳原子上引入甲基形成的DNA修饰。哺乳动物基因组中的胞嘧啶甲基化主要发生于CpG二核苷酸,其中CpG中的“p”表示胞嘧啶与鸟嘌呤之间的磷酸连接。除5mC外,生物体系中还存在4-甲基胞嘧啶(4mC)、N6-甲基腺嘌呤(6mA)等DNA碱基修饰,但在哺乳动物表观遗传研究中,5mC及其氧化衍生物5hmC、5fC和5caC仍是主要研究对象。
1.2 不同基因组区域的甲基化特征
DNA甲基化的功能高度依赖其基因组位置,不能简单等同于转录抑制。启动子CpG岛高甲基化通常与转录活性降低相关;基因体甲基化可存在于活跃转录基因,并与转录稳定性及异常转录起始抑制相关;重复序列和转座元件通常维持较高甲基化水平,对限制异常转录、抑制转座活动及维持基因组稳定性具有重要作用。
表1 不同基因组区域DNA甲基化的主要功能特征
基因组区域 | 典型甲基化特征 | 主要功能关联 |
启动子CpG岛 | 活跃基因通常维持低甲基化 | 高甲基化常与转录抑制相关 |
基因体 | 部分活跃基因具有较高甲基化 | 转录稳定性、异常转录起始抑制 |
增强子 | 甲基化状态动态变化明显 | 细胞类型特异性转录调控 |
重复序列 | 通常维持较高甲基化 | 转座元件抑制、基因组稳定 |
印记控制区域 | 亲本来源特异性甲基化 | 基因组印记 |
X染色体相关区域 | 区域特异性甲基化 | X染色体失活相关调控 |
2 DNMT介导DNA甲基化建立
2.1 DNA甲基转移反应
DNA甲基转移酶(DNA methyltransferase,DNMT)利用S-腺苷-L-甲硫氨酸(SAM)作为甲基供体,将甲基转移至胞嘧啶C5位形成5mC,同时生成S-腺苷-L-同型半胱氨酸(SAH)。哺乳动物DNA甲基化主要包括从头甲基化和复制后的维持甲基化,分别以DNMT3A/DNMT3B和DNMT1为核心。
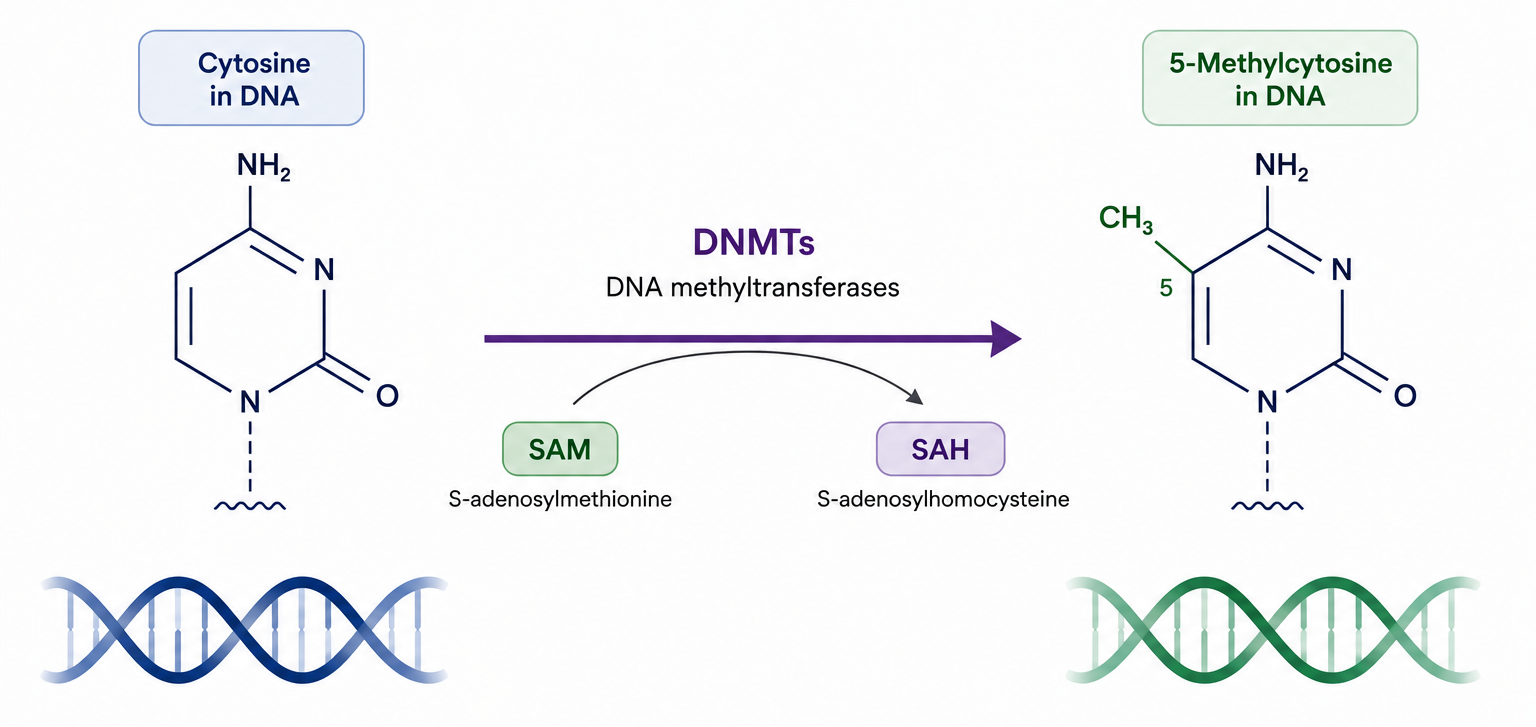
图1 DNMT介导的胞嘧啶C5甲基化反应机制
2.2 DNMT3A与DNMT3B介导从头甲基化
DNMT3A和DNMT3B属于从头DNA甲基转移酶,可在此前尚未建立稳定甲基化模式的DNA区域形成新的5mC。二者参与胚胎发育、生殖细胞表观遗传重编程、细胞分化及组织特异性甲基化模式建立,其活性和染色质定位同时受到组蛋白修饰、辅助蛋白及局部染色质结构调控。
DNMT3L与DNMT3A和DNMT3B具有结构相关性,但缺少完整的经典DNA甲基转移催化能力,主要作为调节因子参与DNMT3复合物形成和从头甲基化调控,尤其与生殖细胞和印记区域甲基化模式建立相关。因此,DNMT3L的主要功能定位是DNMT3家族辅助调节蛋白,而非独立催化型DNA甲基转移酶。
3 DNMT1-UHRF1介导甲基化维持
3.1 半甲基化CpG的形成
DNA半保留复制后,亲代链保留原有5mC,而新合成链最初缺乏对应甲基化,由此形成半甲基化CpG。若新生链不能及时恢复甲基化,原有5mC模式将随连续细胞分裂逐渐稀释,因此复制后的甲基化恢复是DNA甲基化信息稳定传递的重要环节。
3.2 DNMT1的维持甲基化功能
DNMT1是主要的维持型DNA甲基转移酶,对半甲基化CpG具有显著底物偏好,可在新生链对应胞嘧啶上重新建立5mC。DNMT1并非绝对仅作用于半甲基化DNA,因此在机制描述中应强调其对半甲基化CpG的优先识别和催化特征,而不是将其定义为只作用于半甲基化底物。
3.3 UHRF1介导复制偶联定位
UHRF1是DNMT1维持甲基化体系的重要调控因子。其SRA结构域能够识别半甲基化CpG,其他结构域参与组蛋白状态识别和染色质结合,并通过组蛋白泛素化等过程促进DNMT1在复制区域募集,使半甲基化DNA识别、DNMT1定位和新生链甲基化形成连续的复制偶联机制。
表2 DNA甲基化建立与维持的核心蛋白
蛋白 | 主要功能 | 关键特征 | 主要研究环节 |
DNMT1 | 维持DNA甲基化 | 偏好半甲基化CpG | 复制后甲基化继承 |
DNMT3A | 从头DNA甲基化 | 建立新的甲基化模式 | 发育、分化、疾病相关突变 |
DNMT3B | 从头DNA甲基化 | 区域性甲基化建立 | 发育、重复序列调控 |
DNMT3L | DNMT3调节因子 | 缺乏完整独立催化能力 | 生殖细胞及印记甲基化 |
UHRF1 | DNMT1募集与定位 | SRA结构域识别半甲基化CpG | 复制偶联甲基化维持 |
4 TET介导5mC氧化
4.1 TET家族的催化特征
TET1、TET2和TET3属于Fe²⁺和α-酮戊二酸(α-KG)依赖的双加氧酶,可依次将5mC氧化形成5-羟甲基胞嘧啶(5hmC)、5-甲酰基胞嘧啶(5fC)和5-羧基胞嘧啶(5caC)。TET介导的是5mC逐级氧化,而不是直接断裂5mC上的碳-碳键并去除甲基。
5mC → 5hmC → 5fC → 5caC
4.2 5hmC的功能定位
5hmC既是5mC进一步脱甲基化的重要中间状态,也可以作为相对稳定的DNA修饰存在,尤其在神经系统等组织中具有较高丰度。因此,5hmC水平升高不能单独解释为DNA脱甲基化增强,应结合5mC、5fC、5caC水平及TET活性综合判断。
4.3 代谢状态对TET活性的影响
TET催化依赖α-KG、Fe²⁺和氧,并受到细胞氧化还原状态及相关代谢物调节。α-KG供应不足或竞争性代谢物积累可改变TET活性,从而影响5mC向5hmC及后续氧化产物的转换,使细胞代谢状态与DNA甲基化调控形成直接联系。
5 DNA脱甲基化途径
5.1 被动DNA脱甲基化
被动脱甲基化主要依赖DNA复制。当DNMT1-UHRF1维持甲基化体系受到抑制或功能不足时,新合成DNA链无法有效恢复亲代甲基化模式,5mC水平随连续细胞分裂逐步下降。TET形成的部分氧化胞嘧啶也可能降低复制后甲基化维持效率,从而促进修饰的复制依赖性稀释。
5.2 TDG-BER介导主动脱甲基化
(1)5fC和5caC切除
TET连续氧化形成5fC和5caC后,胸腺嘧啶DNA糖基化酶(Thymine DNA Glycosylase,TDG)可识别并切除这些氧化修饰碱基,形成无碱基位点(AP site),从而使修饰胞嘧啶从DNA链中移除。
(2)碱基切除修复
AP位点随后进入碱基切除修复(Base Excision Repair,BER)过程,经AP核酸内切酶、DNA聚合酶和DNA连接酶等修复组分处理后重新补入未修饰胞嘧啶。因此,经典主动DNA脱甲基化可概括为“TET连续氧化—TDG切除—BER修复”。
表3 DNA脱甲基化的主要机制
调控方式 | 核心过程 | DNA复制依赖性 | 最终结果 |
维持甲基化不足 | DNMT1/UHRF1功能下降 | 是 | 5mC逐代稀释 |
TET氧化后复制稀释 | 5mC转化为氧化衍生物 | 是 | 修饰随复制降低 |
TET-TDG-BER | 氧化、碱基切除与修复 | 否 | 恢复未修饰胞嘧啶 |
6 DNA甲基化的读取
6.1 MBD家族
MeCP2、MBD1和MBD2等蛋白含有甲基CpG结合结构域(Methyl-CpG-Binding Domain,MBD),能够识别特定甲基化DNA环境,并募集HDAC及其他染色质调节复合物,使DNA甲基化信号进一步转化为组蛋白修饰、核小体状态及转录活性的改变。
6.2 UHRF家族
UHRF1兼具甲基化读取和维持功能,其SRA结构域能够识别半甲基化CpG,并通过其他染色质识别结构域整合DNA和组蛋白信息。UHRF2同样具有DNA修饰识别能力,但其在复制偶联维持甲基化中的功能定位与UHRF1并不完全相同。
6.3 甲基化敏感锌指蛋白
Kaiso、ZBTB4和ZBTB38等锌指蛋白可识别特定甲基化DNA序列并参与转录调控。不同读取蛋白对DNA序列、CpG密度和局部染色质环境具有不同偏好,因此5mC的功能输出由修饰位置、读取蛋白和染色质状态共同决定。
7 DNA甲基化与组蛋白修饰
7.1 H3K4甲基化与DNMT3调控
DNMT3A、DNMT3B及DNMT3L相关ADD结构模块能够感知H3K4甲基化状态。活跃启动子通常富集H3K4me3,该状态不利于DNMT3相关复合物建立新的DNA甲基化;当H3K4处于未甲基化状态时,则更有利于ADD结构域与组蛋白H3结合并促进DNMT3相关催化状态形成。
7.2 H3K36甲基化与DNA甲基化定位
DNMT3A和DNMT3B的PWWP结构域参与识别H3K36甲基化相关染色质环境。H3K36me2和H3K36me3在不同基因组区域可分别影响DNMT3A和DNMT3B的染色质定位,使DNA甲基化模式与既有组蛋白修饰状态形成协同调控。
7.3 抑制性染色质的协同建立
甲基化DNA可通过MBD类读取蛋白募集HDAC及其他共抑制复合物,降低组蛋白乙酰化并促进抑制性染色质环境形成。DNA甲基化还可与H3K9me2/3等抑制性组蛋白标记协同,但不同基因组区域的具体组合模式存在差异,不能根据单一组蛋白标记推断DNA甲基化状态。
8 肿瘤中的DNA甲基化异常
8.1 启动子CpG岛异常高甲基化
肿瘤细胞可在特定启动子CpG岛形成异常高甲基化。若涉及抑癌基因、DNA损伤修复基因或细胞分化相关基因,可伴随相应基因转录下降,并参与异常细胞表型形成。因此,启动子甲基化变化需要结合基因表达及相关染色质状态进行功能判读。
8.2 全局DNA低甲基化
肿瘤基因组同时可出现重复序列、转座元件和较大基因组区域的DNA低甲基化,进而影响转座元件抑制、染色体稳定性和异常转录。因此,肿瘤DNA甲基化重塑通常表现为局部CpG岛异常高甲基化与广泛低甲基化并存,而非全基因组甲基化水平单向改变。
8.3 DNMT、TET异常与甲基化重塑
DNMT3A、TET2等表观遗传调控蛋白的遗传变异或功能异常可直接改变5mC和5hmC稳态。Decitabine和5-Azacytidine等低甲基化核苷类似物可通过干扰DNMT依赖的甲基化维持过程降低DNA甲基化,其效应具有明显的剂量、暴露时间和细胞代谢依赖性。低剂量延长暴露的Decitabine可产生DNA低甲基化效应,而5-Azacytidine与Decitabine在核酸代谢途径和转录响应方面存在差异,即使采用等毒性剂量也可产生不同的早期转录变化。
9 5mC甲基化研究相关产品
9.1 5mC及氧化衍生物标准品
名称 | CAS号 | 主要研究用途 |
5-甲基胞嘧啶 | 5mC化学性质及分析研究 | |
5-羟甲基胞嘧啶 | 5hmC及TET氧化研究 | |
5-甲酰基胞嘧啶 | 5fC氧化中间体研究 | |
5-甲基-2'-脱氧胞苷 | DNA中5mC核苷定量标准 | |
5-羟甲基-2'-脱氧胞苷 | DNA中5hmC核苷定量 | |
2'-脱氧胞苷 | 未修饰DNA核苷对照 | |
胞嘧啶 | 未修饰碱基对照 |
9.2 DNMT与TET调控相关化合物
名称 | CAS号 | 主要研究用途 |
地西他滨(Decitabine) | DNMT抑制及DNA低甲基化研究 | |
阿扎胞苷(5-Azacytidine) | DNA/RNA代谢及DNMT相关研究 | |
Zebularine | DNMT相关甲基化调控研究 | |
RG108 | 非核苷类DNMT机制研究 | |
SGI-1027 | DNMT相关抑制机制研究 | |
α-酮戊二酸 | TET双加氧酶辅底物研究 | |
L-抗坏血酸 | TET活性及5mC氧化研究 | |
EDTA | 金属依赖性对照 |
9.3 甲基转移与TET反应辅助材料
名称 | CAS号 | 主要研究用途 |
S-腺苷-L-甲硫氨酸 | DNMT甲基供体 | |
S-腺苷-L-同型半胱氨酸 | 甲基转移反应产物及调控研究 | |
L-甲硫氨酸 | SAM代谢及甲基供体循环研究 | |
α-酮戊二酸 | TET催化辅底物 | |
硫酸亚铁七水合物 | TET反应体系Fe²⁺来源 | |
亚硫酸氢钠 | DNA胞嘧啶化学转化相关研究 |
5mC稳态由DNMT介导的从头建立和复制维持、TET介导的连续氧化以及TDG-BER介导的修饰去除共同决定。解析这些调控环节及其与染色质状态的协同关系,有助于理解DNA甲基化在正常表观遗传稳态和疾病相关重塑中的作用。
参考文献
[1] Issa JP, et al. Phase 1 study of low-dose prolonged exposure schedules of the hypomethylating agent 5-aza-2'-deoxycytidine (decitabine) in hematopoietic malignancies. Blood. 2004;103(5):1635-1640.
[2] Christman JK. 5-Azacytidine and 5-aza-2'-deoxycytidine as inhibitors of DNA methylation: mechanistic studies and their implications for cancer therapy. Oncogene. 2002;21(35):5483-5495.
[3] Qiu X, et al. Equitoxic doses of 5-azacytidine and 5-aza-2'-deoxycytidine induce diverse immediate and overlapping heritable changes in the transcriptome. PLoS One. 2010;5(9):e12994.
更多相关文章,详见下方:
[1] 表观遗传调控剂


 危险品化学品经营许可证(带存储)