
线粒体应激信号传导与疾病
线粒体应激信号传导与疾病
线粒体功能扰动可激活一系列应激信号,用于恢复能量代谢、蛋白稳态和氧化还原平衡。膜电位下降、呼吸链受损、蛋白导入障碍或线粒体蛋白稳态异常,可诱导ISR、UPRmt、线粒体自噬和线粒体因子分泌等多种应激反应。短期应激有助于细胞适应,长期或异常激活则可能参与衰老、肿瘤、神经退行性疾病、代谢病和慢性炎症。
关键词:线粒体应激;整合应激反应;DELE1;OMA1;HRI;ATF4;UPRmt;线粒体蛋白导入;GDF15;FGF21;线粒体自噬;线粒体激效;疾病机制
1 线粒体应激的研究切入点
1.1 线粒体应激的主要来源
线粒体应激不是单一损伤事件,而是线粒体膜电位、氧化磷酸化、蛋白导入、蛋白折叠、mtDNA稳定性和氧化还原状态异常后形成的综合反应。不同压力来源可激活不同信号分支,但最终常汇入蛋白稳态、代谢重塑、炎症调控和细胞命运改变。
应激来源 | 直接影响 | 主要响应通路 |
呼吸链受损 | ATP下降、NADH/NAD⁺失衡、ROS升高 | ISR、AMPK、氧化还原应答 |
膜电位下降 | 蛋白导入障碍、离子稳态异常 | PINK1/Parkin、OMA1-DELE1-HRI |
线粒体蛋白错误折叠 | 基质蛋白稳态受损 | UPRmt、线粒体蛋白酶系统 |
线粒体蛋白导入受阻 | 前体蛋白在胞质积累 | mPOS、mitoCPR、mitoRQC等 |
mtDNA损伤或释放 | 炎症与免疫识别 | cGAS-STING、TLR9、炎症小体 |
线粒体ROS升高 | 氧化还原信号改变 | NRF2、ISR、线粒体激效 |
线粒体动力学异常 | 融合、分裂、清除失衡 | DRP1、MFN1/2、OPA1、线粒体自噬 |
1.2 适应性反应与病理反应
线粒体应激具有双重性质。轻度、短暂的线粒体压力可增强抗氧化能力、蛋白质量控制和代谢弹性,属于保护性线粒体激效;但当应激过强或持续存在时,同样的信号可能转向病理效应,促进炎症、细胞死亡、组织功能衰退或肿瘤适应。
应激强度/持续时间 | 主要结果 | 生物学意义 |
轻度、短暂 | 代谢适应、抗氧化能力增强 | 保护性线粒体激效 |
中等、可恢复 | ISR、UPRmt、线粒体自噬增强 | 稳态修复 |
强烈、持续 | 蛋白稳态崩溃、炎症、细胞死亡 | 疾病进展 |
慢性低水平 | 细胞适应性重编程 | 衰老、肿瘤耐受、代谢异常 |
2 OMA1-DELE1-HRI轴与整合应激反应
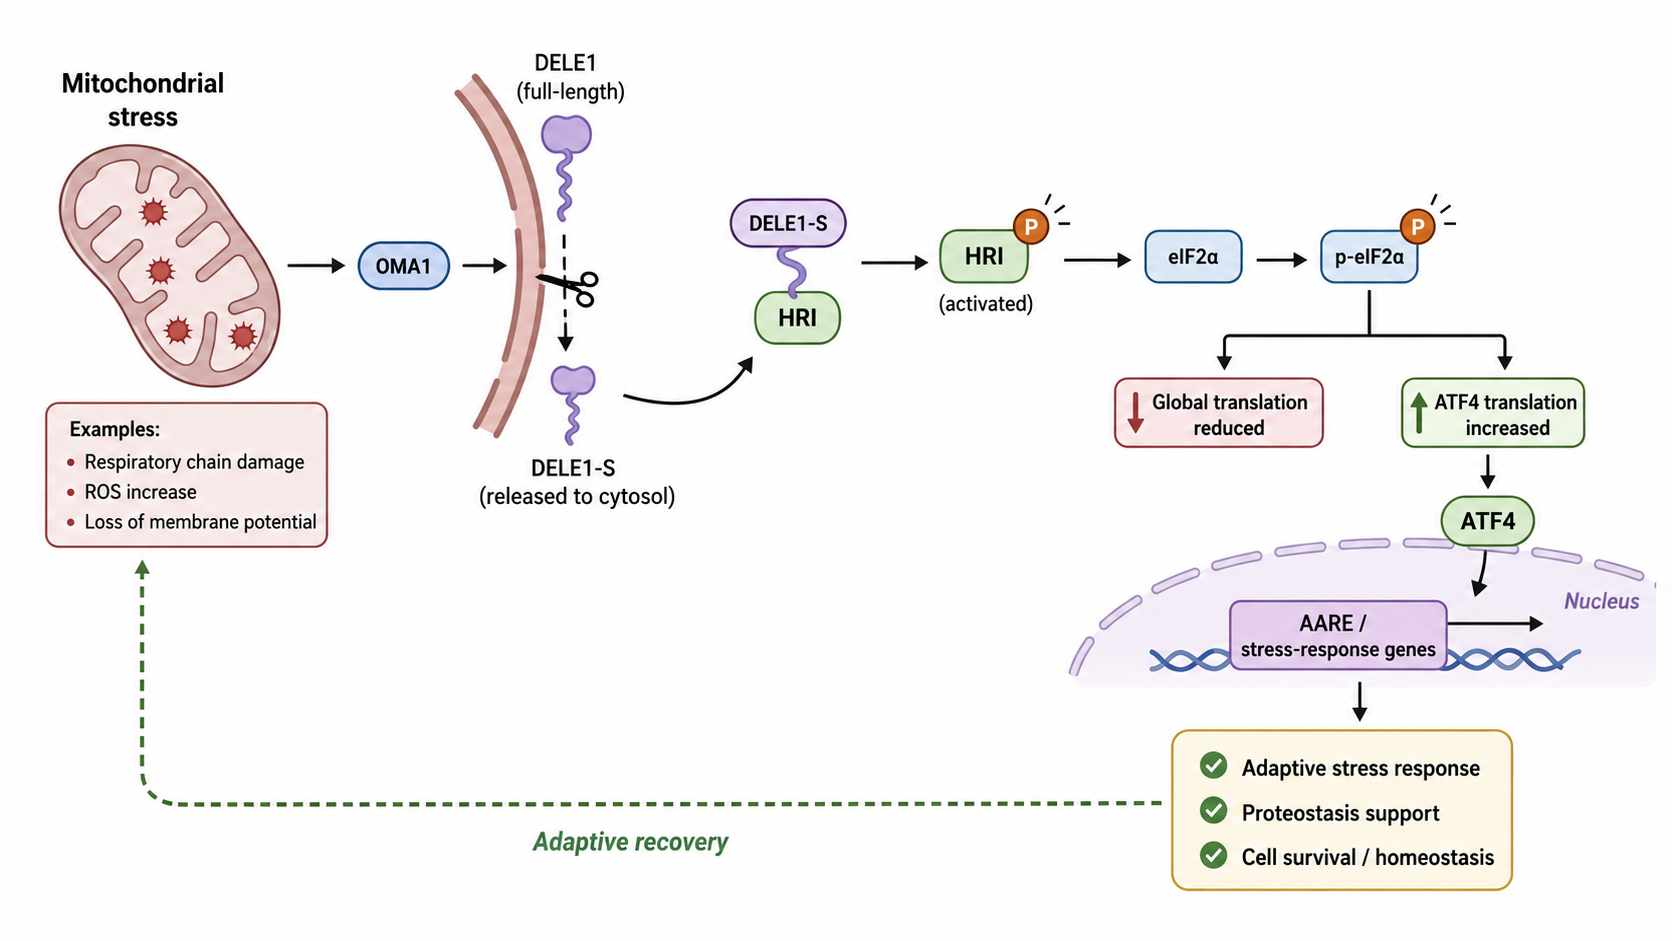
图1 OMA1-DELE1-HRI-eIF2α-ATF4轴介导的线粒体整合应激反应
2.1 OMA1感知线粒体功能扰动
OMA1是位于线粒体内膜的应激敏感蛋白酶。线粒体膜电位下降、呼吸链受损、蛋白导入异常或膜蛋白稳态紊乱时,OMA1可被激活,并切割线粒体相关底物。其重要功能之一是介导DELE1裂解,从而把线粒体内部损伤信号传递到胞质ISR通路。
OMA1的作用可以理解为线粒体内膜应激传感节点。当线粒体无法维持正常膜电位和蛋白稳态时,OMA1将局部线粒体压力转化为细胞核可感知的转录应答。
2.2 DELE1连接线粒体与胞质应激激酶
DELE1是线粒体应激传递中的关键蛋白。正常状态下,DELE1定位于线粒体;当线粒体发生应激时,OMA1可切割DELE1,产生较短的胞质形式DELE1-S。DELE1-S进入胞质后可结合并激活HRI。
除OMA1切割外,线粒体蛋白导入受损、低铁状态或转位障碍也可能导致全长DELE1在线粒体外侧或胞质中异常积累,从而参与HRI激活。也就是说,DELE1不仅响应膜电位相关损伤,也参与蛋白导入和线粒体功能异常的广义应激识别。
2.3 HRI-eIF2α-ATF4介导ISR转录程序
HRI被DELE1激活后,可磷酸化eIF2α。eIF2α磷酸化会抑制总体蛋白翻译,但促进ATF4等特定转录因子的翻译。ATF4随后诱导氨基酸代谢、抗氧化反应、蛋白稳态调节、线粒体代谢重塑和细胞命运相关基因表达。
节点 | 功能 | 结果 |
线粒体损伤 | 膜电位下降、导入受阻、蛋白稳态异常 | 激活OMA1或促进DELE1异常定位 |
OMA1 | 切割DELE1 | 产生胞质DELE1-S |
DELE1 | 激活HRI | 将线粒体压力传递到ISR |
HRI | 磷酸化eIF2α | 抑制全局翻译,改变应激蛋白合成 |
ATF4 | 启动应激转录程序 | 调节代谢、抗氧化、蛋白稳态和细胞命运 |
2.4 ISR的保护性与病理性
ISR短期激活有助于减少新生蛋白负荷、调整代谢、增强抗氧化能力和提高细胞存活率。若ISR长期激活,则可能导致翻译抑制过度、细胞功能下降、炎症因子表达增加或凋亡/死亡相关通路被启动。
在疾病中,ISR既可能是保护机制,也可能成为病理放大器。判断其作用不能只看ATF4是否升高,还需要结合应激持续时间、细胞类型、下游靶基因和组织功能变化。
3 线粒体蛋白导入受损与胞质蛋白稳态反应
3.1 线粒体蛋白导入受损的核心问题
线粒体中大多数蛋白由核基因编码,在胞质中合成后通过线粒体靶向序列进入线粒体。若线粒体膜电位下降、转位复合体受损或导入通道拥堵,带有线粒体靶向序列的前体蛋白会滞留在胞质中,造成蛋白稳态压力。
这种压力不仅影响线粒体,也会牵连胞质蛋白质量控制系统。错误定位或停滞的线粒体前体蛋白若不能及时清除,会聚集、干扰蛋白酶体负荷,并影响ER和胞质稳态。
3.2 酵母中的线粒体导入应激通路
在酵母模型中,线粒体蛋白导入受损可触发多种协同反应,包括mPOS、mitoStore、mitoTAD、mitoCPR和mitoRQC。这些通路的共同目标是识别、隔离或清除未能正确进入线粒体的蛋白。
通路 | 主要对象 | 作用结果 |
mPOS | 胞质中积累的线粒体前体蛋白 | 诱导胞质蛋白稳态应答 |
mitoStore | 难以及时导入的前体蛋白 | 暂时储存并限制毒性 |
mitoTAD | 线粒体膜转位受阻蛋白 | 促进停滞蛋白清除 |
mitoCPR | 在线粒体导入通道停滞的蛋白 | 促进泛素化和蛋白酶体降解 |
mitoRQC | 翻译或导入异常相关蛋白 | 维持线粒体蛋白质量控制 |
TA蛋白再靶向 | 错误靶向的尾锚定蛋白 | 重新导向ER并降解 |
3.3 HSF1、蛋白酶体和泛素化系统参与协同调控
线粒体蛋白导入应激并不是单纯的线粒体内部问题。胞质热休克反应、蛋白酶体系统和泛素化通路都参与清除错误定位蛋白。在酵母中,HSF1、RPN4等转录调控因子可参与该类反应,增强蛋白折叠、泛素化和蛋白酶体降解能力;在哺乳动物细胞中,应结合HSF1、蛋白酶体应激和相应蛋白稳态调控因子进行判断。
这一机制提示,线粒体应激可以重塑整个细胞蛋白稳态网络。对于神经元、肌细胞和肿瘤细胞等高代谢或高蛋白合成压力细胞,线粒体蛋白导入障碍可能尤其重要。
4 UPRmt与线粒体蛋白质量控制
4.1 UPRmt的基本功能
线粒体未折叠蛋白反应(UPRmt)是线粒体蛋白稳态受损后启动的转录适应程序。其核心功能是提高线粒体伴侣蛋白、蛋白酶、抗氧化因子和代谢重塑基因表达,以恢复线粒体蛋白折叠环境。
功能模块 | 代表分子 | 作用 |
蛋白折叠 | HSP60、mtHSP70 | 促进线粒体蛋白正确折叠 |
蛋白降解 | LONP1、CLPP | 清除错误折叠或损伤蛋白 |
抗氧化反应 | SOD2、PRDX3 | 降低ROS损伤 |
代谢重塑 | 氨基酸代谢、线粒体代谢相关基因 | 调整能量和合成代谢 |
核-线粒体通讯 | ATF5、CHOP、ATF4相关程序 | 传递线粒体压力到细胞核 |
4.2 UPRmt与ISR存在交叉
UPRmt和ISR并不是完全独立的两条通路。线粒体应激可同时诱导ATF4相关ISR程序和ATF5/CHOP等UPRmt相关转录调控。二者在氨基酸代谢、氧化还原调节、线粒体蛋白稳态和细胞命运决定中存在交叉。
在实验设计中,不能只用单个指标判断“UPRmt被激活”。例如,仅检测HSP60升高不足以说明完整UPRmt激活,还应结合LONP1、CLPP、ATF5、CHOP、ATF4和线粒体功能读数共同判断。
5 线粒体因子与系统性应激信号
5.1 GDF15和FGF21
线粒体应激不仅局限于单个细胞内部,还可通过分泌因子影响全身代谢。GDF15和FGF21是研究较多的线粒体应激相关分泌因子,常受ISR/ATF4相关程序诱导。
GDF15常与线粒体疾病、代谢压力、炎症和肿瘤恶病质相关;FGF21则与肝脏、脂肪组织和肌肉代谢调节密切相关。二者可作为线粒体应激的系统性读数,但不能简单等同于某一条单一通路激活。
5.2 线粒体衍生肽
线粒体衍生肽(mitochondrial-derived peptides,MDPs)是由线粒体基因组或相关小开放阅读框编码的短肽,包括Humanin、MOTS-c等。它们参与代谢调控、应激保护、炎症调节和衰老相关过程。
运动、能量压力和线粒体功能变化可影响部分MDPs表达。MDPs的意义在于把线粒体状态与组织间通讯、代谢适应和衰老调控联系起来。
5.3 线粒体因子的研究价值
因子类型 | 代表分子 | 主要意义 |
ISR诱导分泌因子 | GDF15 | 反映线粒体应激、代谢压力和疾病负荷 |
代谢调节因子 | FGF21 | 参与肝脏、脂肪和肌肉代谢适应 |
线粒体衍生肽 | Humanin、MOTS-c | 连接线粒体功能与系统性保护反应 |
炎症相关信号 | mtDNA、N-formyl peptides | 触发免疫识别和炎症反应 |
代谢信号 | NAD⁺/NADH、乳酸、TCA中间产物 | 影响表观遗传、代谢重塑和细胞命运 |
6 线粒体应激与炎症和免疫
6.1 mtDNA释放与固有免疫激活
线粒体来源于内共生过程,其DNA和部分分子结构具有类似细菌的免疫刺激特征。当线粒体膜完整性下降或线粒体清除障碍时,mtDNA可进入胞质或胞外环境,激活cGAS-STING、TLR9或炎症小体相关通路。
这种反应在感染、组织损伤、自身免疫病、神经炎症和衰老相关慢性炎症中具有重要意义。
6.2 线粒体ROS与炎症放大
线粒体ROS既可作为信号分子,也可在过量时造成氧化损伤。适度ROS可触发保护性线粒体激效;持续高水平ROS则会促进NF-κB、NLRP3炎症小体、脂质过氧化和细胞死亡通路激活。
线粒体ROS的作用必须结合强度和时间判断。单纯把ROS视为“有害产物”并不准确;在某些适应性背景下,低水平ROS是应激保护反应的重要信号。
7 线粒体应激在疾病中的作用
7.1 衰老与年龄相关疾病
轻度线粒体应激可通过线粒体激效增强抗氧化防御、蛋白稳态和代谢适应能力,可能延缓部分年龄相关功能下降。二甲双胍、运动、热量限制和部分线粒体质量控制调节剂都与这一思路相关。
但长期线粒体功能衰退会导致能量不足、蛋白稳态压力、ROS升高、炎症激活和细胞衰老增加。因此,衰老研究中需要区分短期适应性应激和长期退行性损伤。
7.2 肿瘤
肿瘤细胞常处于缺氧、营养不足、氧化应激和代谢重编程状态。UPRmt、ISR和线粒体质量控制可帮助肿瘤细胞适应这些压力,增强存活、侵袭、转移和治疗耐受。
在部分肿瘤中,UPRmt基因特征升高与不良预后相关;HSP60、LONP1、CLPP等线粒体蛋白质量控制分子也可能支持肿瘤细胞生存。与抗衰老策略不同,在肿瘤中抑制某些线粒体适应性应激通路,可能反而具有治疗价值。
7.3 神经退行性疾病
神经元对能量供应、蛋白稳态和线粒体运输高度依赖。线粒体应激异常可导致突触能量不足、轴突运输障碍、ROS升高、蛋白聚集和神经炎症。帕金森病、阿尔茨海默病、肌萎缩侧索硬化症等疾病中,线粒体质量控制和应激信号异常均具有重要意义。
PINK1/Parkin介导的线粒体自噬障碍、线粒体蛋白导入异常和mtDNA释放都可能参与神经退行性病变。此类疾病中,增强适度线粒体质量控制可能具有保护作用,但过度激活ISR也可能抑制神经元蛋白合成和功能维持。
7.4 代谢性疾病
肝脏、骨骼肌、脂肪组织和胰岛β细胞均依赖线粒体维持能量稳态。线粒体应激可诱导FGF21、GDF15、AMPK和ISR相关反应,参与脂质代谢、胰岛素敏感性、炎症和能量消耗调节。
在脂肪肝、肥胖和2型糖尿病中,线粒体应激既可能是代谢负荷过高的结果,也可能通过代谢适应暂时维持组织功能。判断其作用需要结合组织类型、时间窗和代谢表型。
7.5 心血管疾病
心肌细胞能量需求高,对线粒体功能高度敏感。缺血再灌注、心力衰竭和心肌肥厚均可引发线粒体应激、ROS升高、钙稳态紊乱和线粒体质量控制异常。适度激活线粒体保护程序可能减轻损伤,但持续应激会推动心肌细胞死亡和功能衰退。
疾病类型 | 线粒体应激特征 | 可能作用 |
衰老 | 轻度ROS、蛋白稳态压力、质量控制变化 | 短期保护,长期衰退 |
肿瘤 | UPRmt/ISR增强、代谢适应 | 支持存活、转移和耐药 |
神经退行性疾病 | 蛋白导入障碍、线粒体自噬异常、ROS升高 | 促进突触和神经元功能损伤 |
代谢病 | FGF21/GDF15升高、氧化代谢异常 | 代谢适应或病理重塑 |
心血管疾病 | 缺血再灌注、ROS和钙稳态异常 | 影响心肌损伤和修复 |
8 常见问题与结果判断
8.1 ATF4升高是否等于线粒体ISR激活
不能直接等同。ATF4是ISR共同下游,氨基酸缺乏、ER应激、氧化应激和病毒感染等也可诱导ATF4。若要证明线粒体来源ISR,应结合DELE1、HRI、OMA1、线粒体膜电位和呼吸链功能变化。
8.2 GDF15和FGF21是否可作为线粒体应激特异标志物
GDF15和FGF21可作为线粒体应激相关分泌读数,但不是绝对特异。炎症、营养状态、肿瘤负荷、组织损伤和代谢病也会影响二者表达。更合理的做法是将其作为系统性应激指标,与细胞内通路和功能读数联合分析。
8.3 UPRmt激活一定是保护性的吗
不一定。UPRmt短期激活有助于恢复线粒体蛋白稳态,但在肿瘤中可能增强细胞适应压力、转移和耐药。在退行性疾病中,持续UPRmt可能提示线粒体压力长期存在,未必代表功能恢复。
8.4 线粒体ROS升高一定有害吗
不一定。低水平、短暂ROS可作为信号触发线粒体激效和适应性保护;高水平、持续ROS则会造成脂质、蛋白和DNA损伤,并促进炎症和细胞死亡。ROS结果需要结合剂量、时间和功能表型判断。
8.5 抑制线粒体应激通路是否一定有治疗价值
不能一概而论。在肿瘤中,抑制UPRmt或线粒体质量控制可能削弱癌细胞适应能力;但在神经退行性疾病、心肌损伤或衰老相关功能下降中,适度增强线粒体保护反应可能更有利。治疗策略必须依赖疾病背景和应激阶段。
9 线粒体应激信号传导与疾病研究相关产品选择
产品模块 | 货号 | 产品名称 | 级别和纯度 | 应用定位 |
线粒体膜电位检测 | 线粒体膜电位检测试剂盒(JC-1) | BioReagent, 适用于荧光分析, 分子生物学级 | 检测线粒体膜电位下降,适合评估线粒体早期损伤和应激激活 | |
线粒体膜电位检测 | JC-1,线粒体膜电位染料 | ≥95% | 用于线粒体膜电位荧光检测,可配合流式或荧光显微分析 | |
线粒体膜电位检测 | 线粒体膜电位检测试剂盒(JC-10) | BioReagent | JC-1替代型膜电位检测体系,适合线粒体功能变化分析 | |
线粒体ROS检测 | MitoSOX Red(线粒体超氧化物红色荧光探针) | ≥95% | 检测线粒体超氧阴离子,连接线粒体ROS、氧化应激和炎症反应 | |
线粒体ROS检测 | 线粒体超氧化物检测试剂盒(MitoSOX Red) | 适用于免疫荧光(IF), BioReagent, 生物染色剂, 用于显微镜 | 用于细胞线粒体ROS成像和线粒体氧化应激评价 | |
能量代谢检测 | ATP检测试剂盒 | BioReagent, 即用型, 用于化学发光 | 评估细胞ATP水平,辅助反映细胞能量状态;若判断氧化磷酸化功能,应结合氧耗率、呼吸链活性或线粒体膜电位等指标 | |
能量代谢检测 | ATP检测试剂盒 (增强型) | BioReagent, 用于化学发光 | 用于更高灵敏度ATP检测,适合线粒体功能损伤模型 | |
线粒体应激诱导 | CCCP溶液 (10 mmol/L) | BioReagent, 10 mmol/L | 破坏线粒体膜电位,常用于PINK1/Parkin线粒体自噬和线粒体应激模型 | |
线粒体应激诱导 | 羰基氰酯-3-氯苯基腙(CCCP) | Moligand™, ≥98% | 线粒体解偶联剂,用于诱导膜电位丧失和线粒体质量控制反应 | |
ISR转录应答 | 小鼠转录激活因子4(ATF4)酶联免疫吸附测定试剂盒 | BioReagent | 检测ATF4水平,辅助评估ISR下游转录应答;若判断线粒体来源ISR,应结合DELE1、HRI、OMA1、eIF2α磷酸化和线粒体功能变化 | |
持续ISR/损伤应答 | Recombinant DDIT3 Antibody | 重组, ExactAb™, 已验证, 0.3 mg/mL | 检测CHOP/DDIT3,判断持续ISR是否转向损伤或细胞死亡相关程序 | |
线粒体应激分泌因子 | 人生长分化因子15(GDF15)酶联免疫吸附测定试剂盒 | BioReagent | 检测人源样本GDF15,适合疾病模型、血清或组织线粒体应激评估 | |
线粒体应激分泌因子 | 小鼠生长分化因子15(GDF15)酶联免疫吸附测定试剂盒 | BioReagent | 检测小鼠GDF15,适合动物模型中线粒体应激和系统性应答分析 | |
代谢应激分泌因子 | 小鼠成纤维生长因子21(FGF21)酶联免疫吸附测定试剂盒 | BioReagent | 检测FGF21,评估线粒体代谢应激、肝脏/肌肉适应和系统性代谢反应 | |
UPRmt伴侣蛋白 | Hsp60 Antibody | 敲低验证 | 检测HSP60,辅助评估线粒体基质蛋白折叠压力;若判断UPRmt激活,应结合LONP1、CLPP、ATF5、CHOP/ATF4和线粒体功能读数 | |
UPRmt检测 | 小鼠热休克蛋白60(Hsp60)酶联免疫吸附测定试剂盒 | BioReagent | 定量检测小鼠HSP60,适合动物模型UPRmt和线粒体蛋白稳态评价 | |
UPRmt蛋白质量控制 | LONP1/Lon Antibody | ExactAb™, 已验证, 1.0 mg/mL | 检测线粒体基质蛋白酶LONP1,分析线粒体蛋白质量控制异常 | |
UPRmt蛋白质量控制 | Recombinant CLPP Antibody | 重组, ExactAb™, 敲低验证, 已验证, 见COA | 检测CLPP,适合UPRmt、线粒体蛋白酶系统和肿瘤线粒体依赖性研究 | |
线粒体形态/质量标志 | Recombinant TOMM20 Antibody | 重组, ExactAb™, 已验证, 0.3 mg/mL | 标记线粒体外膜,分析线粒体形态和分布;若评价线粒体自噬降解,应结合LC3、p62、PINK1/Parkin或溶酶体共定位等指标 | |
线粒体自噬启动 | 人PTEN诱导假定激酶1(PINK1)酶联免疫吸附测定试剂盒 | BioReagent | 检测PINK1水平,辅助评估PINK1相关线粒体自噬变化;若判断膜电位下降后的线粒体自噬启动,应结合PINK1在线粒体上的积累、Parkin募集或线粒体-溶酶体共定位 |
线粒体应激信号连接细胞器损伤、蛋白稳态、氧化还原调控和系统性代谢反应。OMA1-DELE1-HRI-ATF4轴、UPRmt、PINK1/Parkin线粒体自噬以及GDF15/FGF21等线粒体因子,是理解线粒体应激与疾病关系的核心节点。


 危险品化学品经营许可证(带存储)