
铜死亡的分子机制、实验判定与研究工具
铜死亡的分子机制、实验判定与研究工具
铜死亡是由细胞内铜异常积累触发的一类调控性细胞死亡。其核心机制不是脂质过氧化或Caspase级联反应,而是铜与线粒体三羧酸循环中的硫辛酰化蛋白结合,诱导蛋白异常聚集、铁–硫簇蛋白减少和蛋白毒性应激。FDX1、蛋白质硫辛酰化和线粒体氧化代谢状态共同决定细胞对铜死亡的敏感性。
关键词:铜死亡;Cuproptosis;铜稳态;FDX1;DLAT;蛋白质硫辛酰化;三羧酸循环;铁–硫簇蛋白;线粒体呼吸;铜离子载体
1 铜死亡的基本特征
1.1 铜死亡的定义
铜是参与线粒体呼吸、氧化还原反应、铁代谢和抗氧化防御的重要微量元素,细胞通过铜摄取、转运、储存和外排维持铜稳态。当细胞内铜负荷超过稳态调节能力时,过量铜可与线粒体三羧酸循环中的硫辛酰化蛋白结合,诱导蛋白异常寡聚化和不溶性聚集,同时伴随铁–硫簇蛋白减少及蛋白毒性应激,最终引起铜死亡。该过程依赖FDX1、蛋白质硫辛酰化途径和线粒体氧化代谢,因此仅有铜积累或细胞活力下降并不足以判定铜死亡,还需结合相应分子特征进行验证。
1.2 铜死亡与其他细胞死亡方式的区别
铜死亡和铁死亡均与金属稳态失调有关,但二者的执行机制明显不同。铁死亡主要由铁依赖性磷脂过氧化驱动,与谷胱甘肽、GPX4、脂质代谢和游离铁水平密切相关;铜死亡则主要涉及硫辛酰化蛋白聚集、铁–硫簇蛋白减少和线粒体蛋白毒性。铜死亡也不同于细胞凋亡、焦亡和坏死性凋亡,在典型铜离子载体模型中,细胞死亡不依赖Caspase-3活化,也不能通过BAX和BAK1缺失、泛Caspase抑制剂或RIPK1抑制剂完全阻断。
表1 铜死亡与其他主要细胞死亡方式的比较
细胞死亡方式 | 主要诱导因素 | 核心执行过程 | 代表性检测指标 | 常用干预方式 |
细胞凋亡 | DNA损伤、死亡受体激活、线粒体应激 | BAX/BAK介导线粒体通透性改变及Caspase级联反应 | Cleaved Caspase-3、Cleaved PARP、DNA片段化 | Z-VAD-FMK、Boc-D-FMK |
焦亡 | 炎症小体激活、胞质脂多糖及感染刺激 | 炎症性Caspase激活和Gasdermin成孔 | Cleaved GSDMD、Caspase-1、IL-1β释放 | 炎症小体或Gasdermin相关抑制剂 |
坏死性凋亡 | 死亡受体激活且Caspase-8活性受限 | RIPK1–RIPK3–MLKL信号及细胞膜破裂 | p-RIPK3、p-MLKL | Necrostatin-1等RIPK1抑制剂 |
铁死亡 | GPX4抑制、半胱氨酸缺乏、铁积累 | 铁依赖性磷脂过氧化和细胞膜损伤 | 脂质ROS升高、GPX4活性降低、ACSL4相关变化 | Ferrostatin-1、铁螯合剂 |
铜死亡 | 铜离子载体处理或铜稳态失调 | 硫辛酰化蛋白聚集、铁–硫簇蛋白减少和蛋白毒性应激 | DLAT聚集、Fe–S蛋白减少、HSP70升高、FDX1依赖性 | 铜螯合、降低铜摄取或干预硫辛酰化途径 |
2 铜稳态与铜死亡的代谢基础
2.1 铜的摄取与外排
细胞铜稳态主要由铜摄取蛋白、胞内铜伴侣蛋白和铜外排ATP酶共同维持。SLC31A1又称CTR1,是细胞膜上的主要高亲和力铜摄取蛋白,可促进胞外铜进入细胞;ATP7A和ATP7B属于铜转运ATP酶,负责将铜转运至分泌途径或排出细胞。SLC31A1表达升高可增加细胞内铜负荷,而ATP7A或ATP7B功能下降会削弱铜外排能力,两类变化均可能提高细胞对铜依赖性损伤的敏感性。但铜转运异常并不必然代表铜死亡,还需进一步证明其FDX1和硫辛酰化途径依赖性。
2.2 蛋白质硫辛酰化
蛋白质硫辛酰化是发生在线粒体代谢酶复合体上的赖氨酸翻译后修饰。哺乳动物细胞中的主要硫辛酰化蛋白包括丙酮酸脱氢酶复合体组分DLAT、α-酮戊二酸脱氢酶复合体组分DLST、支链α-酮酸脱氢酶复合体组分DBT和甘氨酸裂解系统组分GCSH。LIAS参与硫辛酸辅基合成,LIPT1参与硫辛酰基向靶蛋白转移,DLD参与多个硫辛酰化酶复合体中的氧化还原反应。由于这些蛋白主要参与线粒体氧化代谢,依赖三羧酸循环和氧化磷酸化的细胞通常具有更明显的铜死亡敏感性。
2.3 DLAT与丙酮酸脱氢酶复合体
DLAT是丙酮酸脱氢酶复合体的E2组分,负责将乙酰基从硫辛酰化结构域转移至辅酶A,生成乙酰辅酶A。乙酰辅酶A随后进入三羧酸循环,为线粒体呼吸和多种合成代谢过程提供碳源。DLAT是铜死亡中研究较为充分的铜结合蛋白,铜与硫辛酰化DLAT结合后,可诱导其异常寡聚化和不溶性聚集,进而干扰丙酮酸脱氢酶复合体功能,并增加线粒体蛋白质质量控制系统的负担。
3 铜死亡的核心分子机制
3.1 FDX1对铜和硫辛酰化途径的调控
FDX1是一种线粒体铁氧还蛋白,参与线粒体氧化还原反应,并与蛋白质硫辛酰化途径密切相关。FDX1缺失可降低DLAT和DLST等蛋白的硫辛酰化水平,同时降低细胞对铜离子载体的敏感性。FDX1还可促进Cu²⁺还原为Cu⁺,增加铜与硫辛酰化蛋白相互作用的可能性。因此,FDX1连接了铜氧化还原状态、蛋白质硫辛酰化和线粒体代谢,是铜死亡的重要上游调节因子。但FDX1表达变化本身不能独立证明铜死亡,仍需结合细胞铜负荷、蛋白质硫辛酰化、DLAT聚集和细胞死亡表型进行分析。
3.2 铜与硫辛酰化蛋白结合
铜可与硫辛酰化DLAT和DLST结合,而硫辛酰化修饰减少后,相应蛋白与铜的结合能力也会下降,说明硫辛酰化结构是铜识别这些线粒体代谢蛋白的重要基础。铜结合后,DLAT可由正常可溶性状态转变为异常寡聚体和不溶性聚集体,不仅影响丙酮酸脱氢酶复合体功能,还会增加蛋白质质量控制压力,并诱导HSP70等应激蛋白升高。
3.3 铁–硫簇蛋白减少
铁–硫簇是多种线粒体酶、电子传递蛋白和代谢调节蛋白的重要辅基。铜离子载体处理可导致部分铁–硫簇蛋白水平降低,而FDX1缺失能够减弱这一变化。铁–硫簇蛋白减少会进一步影响线粒体代谢、电子传递和氧化还原稳态,但这一变化并不意味着铜死亡属于铁死亡。铁死亡的核心是铁依赖性磷脂过氧化,而铜死亡中的铁–硫簇变化主要反映线粒体蛋白稳态和辅基稳定性受到破坏。
3.4 铜死亡的作用链
铜死亡可概括为铜离子载体或铜转运异常增加细胞内铜负荷,FDX1参与铜还原并维持蛋白质硫辛酰化,铜进一步与硫辛酰化DLAT等线粒体代谢蛋白结合,引起蛋白异常寡聚化和不溶性聚集,同时导致铁–硫簇蛋白减少,最终破坏线粒体代谢和蛋白质质量控制并诱导细胞死亡。因此,铜死亡并不是由单一分子驱动的线性过程,而是铜稳态、蛋白质硫辛酰化、三羧酸循环、铁–硫簇稳定性和蛋白质质量控制共同失衡的结果。
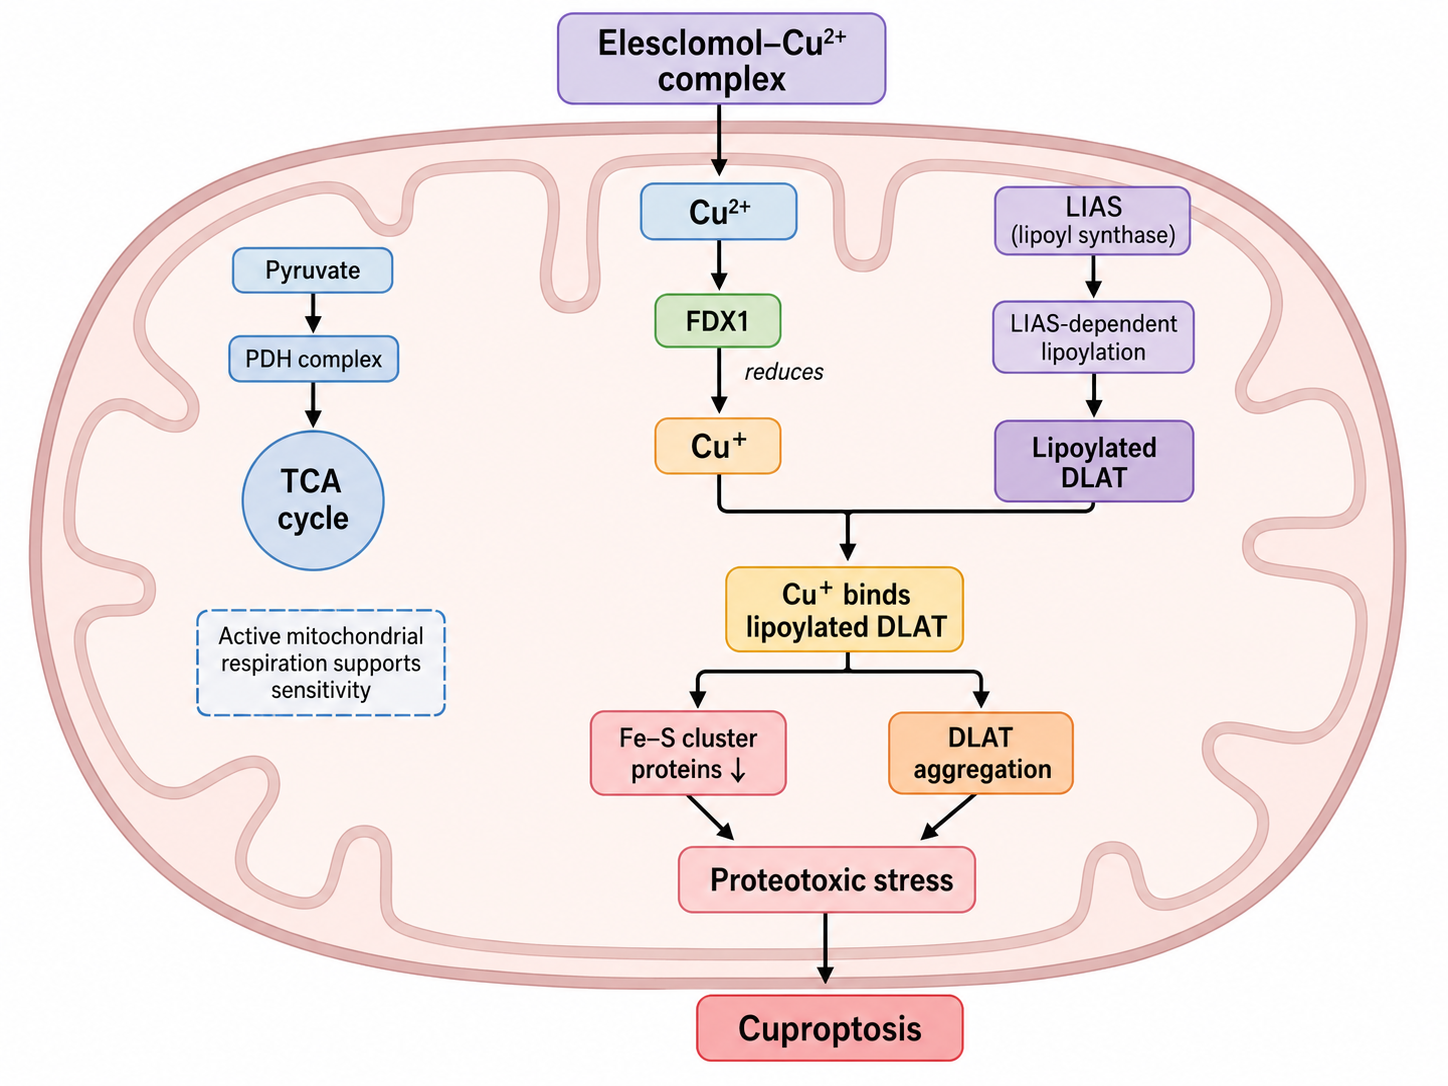
图1 铜死亡的线粒体分子机制
4 铜离子载体诱导铜死亡的实验证据
4.1 铜依赖性和金属选择性
依来司莫是一种亲脂性铜结合分子,可与铜形成复合物并促进铜进入细胞和线粒体。单独使用依来司莫时,部分细胞的生长变化有限,同时补充铜后细胞毒性可明显增强,而其他金属离子通常不能完全复制这种效应,说明依来司莫相关细胞死亡具有较强的铜依赖性。双硫仑、NSC319726和8-羟基喹啉等化合物也可在特定条件下改变细胞内铜分布或产生铜依赖性细胞毒性,但这些化合物还具有其他药理作用,不能仅根据细胞活力下降认定其诱导了铜死亡。铜螯合剂能够缓解铜离子载体产生的细胞毒性,是证明铜依赖性的重要救援实验。
4.2 与细胞凋亡的区别
在典型依来司莫–铜模型中,细胞死亡不一定伴随明显的Caspase-3切割或Caspase-3/7活化。敲除BAX和BAK1,或使用Z-VAD-FMK和Boc-D-FMK等泛Caspase抑制剂,也不能完全阻断铜依赖性细胞死亡,说明铜死亡的核心执行过程不依赖经典线粒体凋亡和Caspase级联反应。但高剂量或长时间铜处理仍可能继发激活凋亡,因此具体实验中仍应检测Cleaved Caspase-3、Cleaved PARP、线粒体膜电位和DNA片段化。
4.3 与铁死亡和坏死性凋亡的区别
Ferrostatin-1可抑制铁死亡相关脂质过氧化,但在典型铜死亡模型中通常不能有效消除依来司莫–铜产生的细胞毒性;坏死抑素-1可抑制RIPK1依赖性坏死性凋亡,但也不能完全阻断铜死亡。N-乙酰-L-半胱氨酸可补充半胱氨酸和谷胱甘肽,并具有抗氧化作用,但在部分铜死亡模型中不能像铜螯合剂一样产生稳定救援,提示一般性活性氧积累并不是铜死亡的唯一执行机制。
4.4 线粒体呼吸依赖性
主要依赖线粒体氧化代谢的细胞通常对铜离子载体更加敏感。将细胞由高葡萄糖培养条件转移至半乳糖培养条件,可迫使细胞更多依赖线粒体氧化磷酸化,并增强部分细胞的铜死亡表型。电子传递链抑制剂和线粒体丙酮酸载体抑制剂UK-5099可降低三羧酸循环底物输入或线粒体呼吸,从而减弱部分细胞对依来司莫–铜的敏感性。FCCP可使线粒体氧化磷酸化解偶联,但其作用不同于直接阻断丙酮酸进入线粒体,因此不能将线粒体膜电位降低简单等同于铜死亡受到抑制。
4.5 缺氧与HIF信号
真实缺氧可降低线粒体氧化代谢,并减弱部分细胞对铜离子载体的敏感性。罗沙司他通过抑制HIF脯氨酰羟化酶稳定HIF,可模拟部分缺氧转录反应,但并不能完全复制真实低氧环境对线粒体代谢和铜死亡的影响。因此,研究缺氧对铜死亡的调节时,需要区分氧浓度下降、HIF通路激活和线粒体呼吸抑制三个层面,不能仅根据HIF蛋白稳定判断细胞代谢状态。
5 铜死亡相关基因与遗传学证据
5.1 FDX1和硫辛酸途径基因
CRISPR筛选显示,敲除FDX1、LIAS、LIPT1和DLD等基因可降低细胞对铜离子载体的敏感性。这些基因共同参与线粒体硫辛酸合成、硫辛酰基转移或相关氧化还原过程。FDX1、LIAS或LIPT1缺失可减少硫辛酰化蛋白水平,使铜失去部分关键结合底物,从而降低DLAT聚集和细胞毒性,构成铜死亡依赖蛋白质硫辛酰化的重要遗传学证据。
5.2 丙酮酸脱氢酶复合体基因
DLAT、PDHA1和PDHB是丙酮酸脱氢酶复合体的重要组分。敲除这些基因会降低丙酮酸向乙酰辅酶A的转化,并改变细胞对线粒体氧化代谢的依赖。相关基因缺失可减弱铜离子载体产生的细胞毒性,说明完整的丙酮酸脱氢酶复合体和硫辛酰化DLAT是铜死亡发生的重要条件,也解释了依赖糖酵解的细胞和依赖线粒体呼吸的细胞具有不同铜死亡敏感性的原因。
5.3 FDX1缺失后的代谢改变
FDX1缺失可引起丙酮酸、α-酮戊二酸、琥珀酸及硫辛酸合成相关代谢物变化,并降低细胞呼吸水平。由于FDX1同时参与多个线粒体代谢过程,其敲除后的保护作用不能仅归因于铜还原能力下降,还可能与硫辛酰化底物减少和氧化代谢重编程有关。因此,FDX1敲除实验需要结合蛋白质硫辛酰化、细胞耗氧率、三羧酸循环代谢物和细胞铜含量共同解释。
6 铜稳态失调与铜死亡
6.1 SLC31A1过表达模型
过表达SLC31A1可增强细胞对铜的摄取,使细胞在外源铜存在时出现更明显的铜积累和细胞毒性,并伴随DLAT异常聚集、铁–硫簇蛋白减少和HSP70升高等变化。铁死亡、坏死性凋亡和凋亡抑制剂通常不能稳定阻断SLC31A1过表达细胞中的铜依赖性死亡,而铜螯合剂能够产生明显保护,说明化学性铜递送和遗传性铜摄取增加可汇入相似的铜死亡机制。
6.2 ATP7B缺陷模型
ATP7B负责肝细胞铜转运和胆汁排铜,ATP7B缺陷会导致肝脏铜积累,是研究遗传性铜稳态紊乱的重要模型。ATP7B缺陷组织中可出现硫辛酰化蛋白异常、铁–硫簇蛋白减少和蛋白质应激增强,这些变化与铜离子载体处理细胞中的分子表型具有一定一致性。但遗传性铜代谢异常通常还涉及氧化应激、炎症、脂质代谢和多种细胞器损伤,不能仅根据单一指标将全部组织损伤归因于铜死亡。
6.3 化学模型与遗传模型的共同特征
铜离子载体、SLC31A1过表达和ATP7B缺陷均可增加细胞或组织铜负荷。若这些模型同时表现出FDX1和蛋白质硫辛酰化途径依赖、DLAT聚集、铁–硫簇蛋白减少及铜螯合救援,则可以认为其具有共同的铜死亡机制基础。
7 铜死亡诱导、细胞死亡判定与线粒体代谢研究产品
7.1 铜递送与金属离子载体研究化合物
名称 | CAS号 | 主要作用通路或靶点 | 作用特点 | 主要研究用途 |
依来司莫(Elesclomol) | 铜递送、FDX1和线粒体铜负荷 | 亲脂性铜结合分子,可形成依来司莫–铜复合物并提高线粒体铜负荷 | 铜死亡诱导、铜依赖性细胞毒性和FDX1功能研究 | |
双硫仑(Disulfiram) | 醛脱氢酶、铜依赖性蛋白毒性 | 可与铜形成活性复合物并影响蛋白质稳态,不属于铜死亡特异性诱导剂 | 铜依赖性细胞毒性、蛋白质质量控制和离子载体比较研究 | |
NSC319726 | 金属离子转运、突变型p53相关过程 | 具有金属离子载体和突变型p53再激活相关作用,细胞毒性受金属环境影响 | 铜离子载体比较、金属依赖性细胞毒性和突变型p53研究 | |
8-羟基喹啉 | 金属离子螯合与跨膜转运 | 可结合铜、锌等金属离子并改变其细胞内分布 | 金属离子载体、金属选择性和铜稳态研究 | |
Pyrithione | 锌及其他金属离子转运 | 常作为锌离子载体使用,也可改变其他金属离子的细胞内分布 | 铜与锌选择性比较及金属离子载体对照研究 |
7.2 细胞死亡途径判定与氧化应激研究化合物
名称 | CAS号 | 主要作用通路或靶点 | 作用特点 | 主要研究用途 |
ML162 | GPX4、铁死亡 | 共价抑制GPX4并促进脂质过氧化 | 铁死亡阳性对照及铜死亡与铁死亡比较研究 | |
Ferrostatin-1 | 脂质过氧化、铁死亡 | 自由基捕获型抗氧化剂,可抑制多种铁死亡模型 | 排除铁死亡参与及脂质过氧化救援实验 | |
DL-丁硫氨酸-(S,R)-亚砜亚胺 | 谷氨酸–半胱氨酸连接酶、谷胱甘肽合成 | 抑制谷胱甘肽合成并降低细胞抗氧化能力 | 谷胱甘肽耗竭、氧化应激和铁死亡敏感性研究 | |
Z-VAD-FMK | Caspase家族 | 细胞可渗透的不可逆泛Caspase抑制剂 | 排除Caspase依赖性细胞凋亡及死亡途径比较研究 | |
Boc-D-FMK | Caspase家族 | 不可逆泛Caspase抑制剂 | 凋亡救援、Caspase依赖性和铜死亡机制验证 | |
坏死抑素-1(Necrostatin-1) | RIPK1、坏死性凋亡 | 抑制RIPK1激酶活性并降低坏死性凋亡 | 排除RIPK1依赖性坏死性凋亡 | |
N-乙酰-L-半胱氨酸 | 谷胱甘肽合成、氧化应激 | 半胱氨酸前体并具有抗氧化作用 | 氧化应激救援及铜死亡是否依赖活性氧的比较研究 | |
依托泊苷 | 拓扑异构酶Ⅱ、DNA损伤 | 诱导DNA损伤、细胞周期停滞和细胞凋亡 | 细胞凋亡阳性对照及Caspase活化检测 | |
紫杉醇 | 微管蛋白、有丝分裂 | 稳定微管并诱导有丝分裂停滞和细胞凋亡 | 有丝分裂性细胞死亡和凋亡对照研究 | |
DPQ | PARP-1 | 抑制PARP-1过度活化 | PARP依赖性细胞死亡及NMDA相关损伤对照研究 | |
抑胃酶肽A(Pepstatin A) | 天冬氨酸蛋白酶、Cathepsin D | 抑制多种天冬氨酸蛋白酶 | 溶酶体蛋白酶和溶酶体相关细胞死亡对照研究 |
7.3 线粒体呼吸与代谢依赖性研究化合物
名称 | CAS号 | 主要作用通路或靶点 | 作用特点 | 主要研究用途 |
羰基氰化物-4-(三氟甲氧基)苯腙(FCCP) | 线粒体质子梯度、氧化磷酸化 | 质子载体型解偶联剂,可降低线粒体膜电位并提高非耦联呼吸 | 线粒体膜电位、最大耗氧能力及铜死亡呼吸依赖性研究 | |
UK-5099 | 线粒体丙酮酸载体 | 抑制丙酮酸进入线粒体并降低丙酮酸驱动的三羧酸循环 | 丙酮酸代谢、PDH复合体和铜死亡底物依赖性研究 | |
罗沙司他 | HIF脯氨酰羟化酶、HIF信号 | 抑制PHD并稳定HIF转录因子,模拟部分低氧信号 | 区分真实缺氧与HIF稳定对铜死亡敏感性的影响 | |
鱼藤酮 | 线粒体电子传递链复合物Ⅰ | 抑制复合物Ⅰ并降低NADH氧化和线粒体呼吸 | 电子传递链、线粒体活性氧及铜死亡呼吸依赖性研究 | |
寡霉素 | 线粒体ATP合酶 | 抑制ATP合酶并阻断氧化磷酸化ATP生成 | ATP相关呼吸、线粒体能量代谢和铜死亡敏感性研究 |
铜死亡的可靠判定需要同时证明铜依赖性、蛋白质硫辛酰化依赖性和线粒体代谢依赖性。将细胞铜含量、DLAT聚集、铁–硫簇蛋白、HSP70、细胞呼吸和遗传学救援结果联合分析,才能将铜死亡与一般性铜毒性及其他调控性细胞死亡方式区分开来。
参考文献
[1] Tsvetkov P, Coy S, Petrova B, et al. Copper induces cell death by targeting lipoylated TCA cycle proteins. Science. 2022;375(6586):1254–1261.
[2] Li SR, Bu LL, Cai L. Cuproptosis: lipoylated TCA cycle proteins-mediated novel cell death pathway. Signal Transduct Target Ther. 2022;7(1):158.
[3] Tang D, Chen X, Kroemer G. Cuproptosis: a copper-triggered modality of mitochondrial cell death. Cell Res. 2022;32(5):417–418.
更多相关文章,详见下方:
[1] 细胞死亡的形态学评价实验
[2] 细胞死亡的生化分析实验
[4] 细胞因子和炎症
[5] 显微镜形态学观察细胞凋亡
[6] 细胞铜死亡检测
[8] 铁死亡与免疫代谢互作的分子基础


 危险品化学品经营许可证(带存储)