
对伞花烃在问题肌肤中的潜在作用机制:膜扰动、炎症信号调节与局部递送
对伞花烃在问题肌肤中的潜在作用机制:膜扰动、炎症信号调节与局部递送
1 对伞花烃的化学结构与原料特征
1.1 对伞花烃是一种芳香族单萜烃
对伞花烃英文名称为p-cymene,化学名称为1-异丙基-4-甲基苯,分子式为C₁₀H₁₄,相对分子质量为134.22,CAS号为99-87-6。
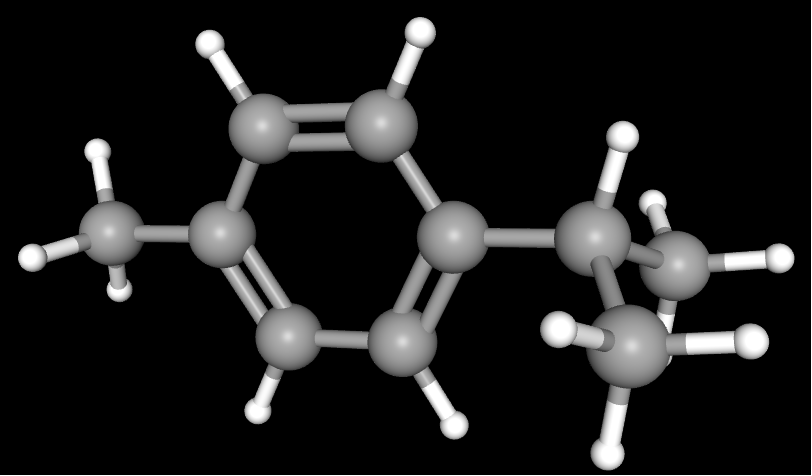
其简化结构为:
p-CH₃—C₆H₄—CH(CH₃)₂
分子中的甲基和异丙基位于苯环的对位,因此称为“对伞花烃”。它不含羟基、羧基或氨基等极性官能团,通常归为芳香族单萜烃,也可称为单萜来源的芳香烃。[1]
对伞花烃具有以下与配方应用密切相关的性质:
原料性质 | 对作用方式的影响 |
疏水性较强 | 容易进入油相、皮脂和磷脂膜 |
水溶性较低 | 在水性体系中难以形成均匀的游离浓度 |
分子体积较小 | 可以在油相、角质层脂质和生物膜之间重新分配 |
具有挥发性 | 储存和涂抹后可能发生浓度损失 |
不含酚羟基 | 对细菌离子稳态和质子动力势的直接扰动通常弱于香芹酚等含酚羟基单萜 |
1.2 对伞花烃与邻伞花烃-5-醇不同
对伞花烃容易与邻伞花烃-5-醇混淆,但两者在结构和功能上存在明显差异。
比较项目 | 对伞花烃 | 邻伞花烃-5-醇 |
英文名称 | p-Cymene | O-Cymen-5-ol |
关键官能团 | 无酚羟基 | 含酚羟基 |
主要物理特征 | 疏水性芳香烃 | 疏水性酚类化合物 |
直接抗菌能力 | 通常较弱,受环境影响明显 | 通常较强 |
研究重点 | 膜分配、协同抗菌、抗炎及递送 | 抗菌和防腐 |
2 对伞花烃如何作用于细菌膜
2.1 疏水分配引起膜结构变化
细菌细胞膜主要由磷脂双层构成。磷脂的亲水头部朝向水相,疏水脂肪酸链位于膜内部。
对伞花烃缺少极性官能团,与水相的亲和力较低,进入细菌附近后倾向于从水相转移到磷脂双层的疏水区域。
在脂质体和蜡样芽孢杆菌模型中,对伞花烃对脂质膜表现出较强的分配倾向,并引起明显的膜膨胀。研究中,对伞花烃造成的膜膨胀甚至高于香芹酚。[2]
这种膜膨胀可解释为对伞花烃进入磷脂脂肪酸链之间,占据部分疏水空间并改变脂肪酸链之间的相互作用。
2.2 膜膨胀不等于细菌能量系统崩溃
细菌膜不仅起到分隔作用,还承担以下功能:
①维持膜内外离子浓度差;
②形成膜电位;
③建立质子动力势;
④驱动三磷酸腺苷合成;
⑤完成营养物质转运。
三磷酸腺苷(adenosine triphosphate,ATP)是细菌进行代谢和生长的重要能量来源。膜结构发生轻度改变后,细菌仍可能通过离子泵、膜脂重排和代谢调节维持基本功能。
在同一项研究中,对伞花烃虽然引起较明显的膜膨胀,但对跨膜pH梯度和ATP储量没有产生明显影响,对膜电位的作用也弱于香芹酚。[2]
2.3 酚羟基决定对伞花烃与香芹酚的膜效应差异
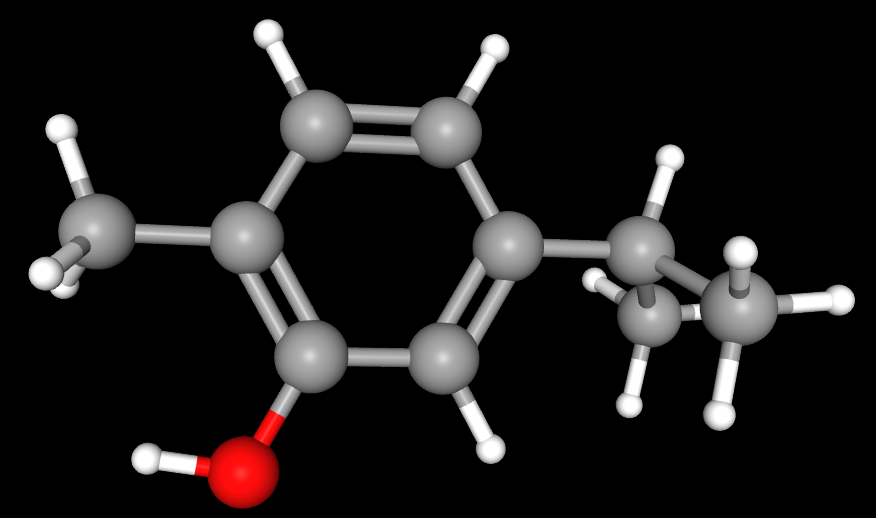
对伞花烃与香芹酚具有相近的芳香族碳骨架,但香芹酚含有酚羟基,对伞花烃不含羟基。两者均可进入疏水膜相并引起膜结构变化,但对细菌跨膜离子梯度、能量代谢和生长的影响不同。香芹酚分子结构示意如下。
原研究采用蛋黄来源L-α-磷脂酰乙醇胺构建单层膜脂质体,用于评价膜相分配和膜膨胀;采用葡萄糖供能的蜡样芽孢杆菌(Bacillus cereus)IFR-NL94-25营养细胞,测定膜电位、跨膜pH梯度和ATP池;生长抑制实验则在脑心浸液培养基中进行。[2]。
结构与作用 | 对伞花烃 | 香芹酚 |
酚羟基 | 无 | 有 |
脂质膜分配 | 对疏水膜相具有较强亲和力 | 对疏水膜相具有明显亲和力 |
脂质体膜膨胀 | 引起明显膜膨胀;最大膨胀幅度高于香芹酚,但需要较高的膜负载量 | 引起明显膜膨胀;在较低膜负载量下达到最大效应 |
对膜电位Δψ的影响 | 可降低膜电位,但达到相同降幅需要较高浓度 | 降低膜电位的作用较明显 |
对跨膜pH梯度ΔpH的影响 | 在0.5~2 mmol/L范围内未观察到明显影响 | 1 mmol/L时可消除跨膜pH梯度 |
对ATP池的影响 | 1和2.4 mmol/L时未明显改变胞内或胞外ATP水平 | 可引起胞内ATP池下降 |
对蜡样芽孢杆菌生长的影响 | 在该研究所测浓度范围内未观察到生长抑制 | 表现出明确的生长抑制作用 |
对伞花烃较强的膜分配和膜膨胀能力,主要反映其对磷脂排列和膜物理状态的影响,并不直接等同于强效抗菌作用。香芹酚的酚羟基可参与质子与单价阳离子交换,使跨膜pH梯度和膜电位下降,进而削弱质子动力势和ATP合成。该质子交换过程属于根据离子通量和能量状态变化提出的机制模型。[2]
对伞花烃主要引起膜的物理扰动;香芹酚除扰动膜结构外,还可借助酚羟基破坏离子稳态和能量代谢,因此具有较明显的直接抗菌作用。
3 对伞花烃的抗菌复配效应与潜在协同机制
注:下图基于现有微生物膜、炎症信号及递送研究绘制,用于说明对伞花烃在问题肌肤中的潜在作用路径。图中部分环节属于基于现有证据提出的机制推测,尚未在痤疮相关皮肤模型或人体外用研究中得到直接验证。
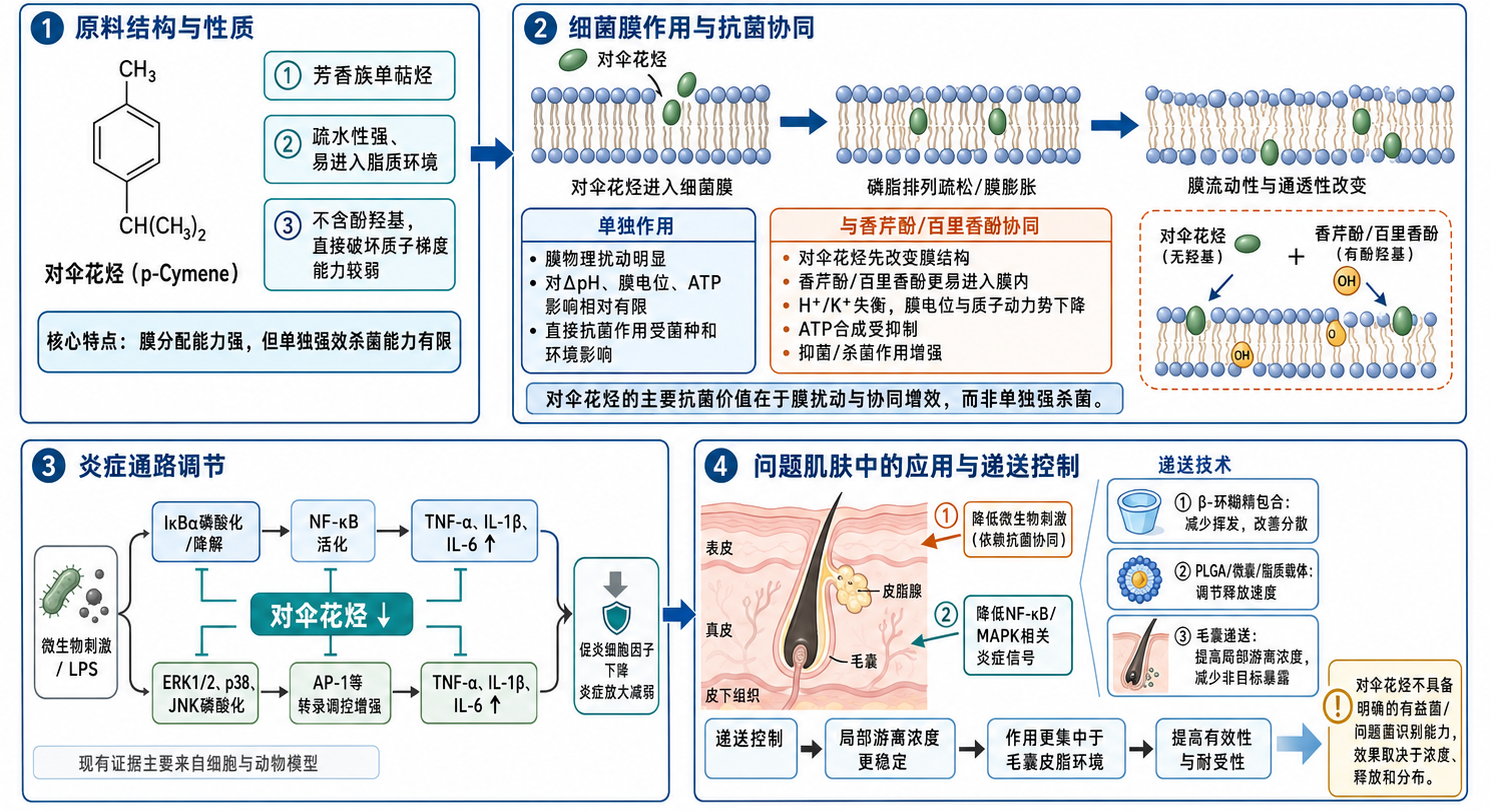
3.1 对伞花烃通过膜扰动增强其他成分的作用
对伞花烃进入细菌膜后,可能增大磷脂分子之间的距离,改变膜流动性及通透性。此时,香芹酚等具有酚羟基的抗菌成分可能更容易在膜相中分配并接近其作用部位。
这种潜在协同由不同作用环节相互衔接形成:
①对伞花烃主要影响膜的物理状态;
②香芹酚主要进一步影响膜通透性、离子平衡和能量代谢。
3.2 协同作用受到环境条件影响
在未巴氏杀菌苹果汁研究中,1.25 mmol/L对伞花烃可使大肠杆菌O157:H7在1~2天内降至检测限以下;0.25 mmol/L对伞花烃与0.5 mmol/L香芹酚联合时,也表现出较明显的抑菌效果。[3]
该结果说明,对伞花烃在特定环境中可以直接产生抗菌作用;与香芹酚联合时,还可在该苹果汁模型中降低两种成分达到抑菌效果所需的单独使用浓度。但苹果汁体系具有以下特点:
①pH约为3.2;
②水分活度和营养组成与皮肤不同;
③实验菌为大肠杆菌O157:H7;
④温度和暴露时间受到人为控制。
这些条件与人体皮肤表面或毛囊内部存在明显差异。因此,食品体系中的有效浓度不能直接作为护肤配方的添加浓度,也不能直接证明对痤疮丙酸杆菌具有相同作用。
3.3 抗菌协同需要同时评价皮肤耐受性
对伞花烃依靠脂质分配作用于细菌膜,这种机制本身不具有明确的病原菌识别能力。局部浓度升高后,皮肤共生菌和宿主细胞膜也可能受到影响。
具有护肤应用价值的协同体系,应同时满足三个条件:
评价层面 | 关键指标 |
微生物作用 | 目标菌生长、生物膜或炎症刺激能力下降 |
复配效率 | 主抗菌成分的有效浓度降低 |
皮肤耐受性 | 角质形成细胞、屏障脂质和共生菌受到的影响处于可接受范围 |
如果抑菌作用和细胞膜损伤同时增强,这种结果更接近非选择性的膜作用叠加,而不是具有明确皮肤应用优势的抗菌协同。
4 对伞花烃如何影响NF-κB和MAPK信号
4.1 NF-κB和MAPK参与炎症信号放大
核因子κB(nuclear factor-κB,NF-κB)是调控炎症基因转录的重要转录因子。未受到刺激时,NF-κB通常与核因子κB抑制蛋白α(inhibitor of nuclear factor-κB alpha,IκBα)结合,主要停留在细胞质中。
脂多糖(lipopolysaccharide,LPS)等刺激可引起IκBα磷酸化和后续降解,使NF-κB进入细胞核,促进促炎基因表达。
丝裂原活化蛋白激酶(mitogen-activated protein kinase,MAPK)则包含细胞外信号调节激酶1/2、p38和c-Jun氨基末端激酶等支路。
其中:
①细胞外信号调节激酶1/2,简称ERK1/2;
②c-Jun氨基末端激酶,简称JNK。
炎症信号的主要传递过程表示为:
LPS等刺激 → IκBα磷酸化/降解 → NF-κB进入细胞核
→ ERK1/2、p38、JNK磷酸化 → AP-1等转录调控增强
↓
TNF-α、IL-1β、IL-6等促炎介质表达增加
激活蛋白-1(activator protein-1,AP-1)是MAPK下游的重要转录调控因子。NF-κB和MAPK并非完全独立,它们可共同调节多种炎症介质的表达。
4.2 对伞花烃降低LPS诱导的信号活化
在LPS刺激的RAW 264.7小鼠巨噬细胞中,对伞花烃降低了肿瘤坏死因子α、白细胞介素-1β和白细胞介素-6的产生,并下调了相应信使核糖核酸表达。[4]
其中:
①肿瘤坏死因子α,简称TNF-α;
②白细胞介素-1β,简称IL-1β;
③白细胞介素-6,简称IL-6。
该研究还显示,对伞花烃抑制了LPS诱导的IκBα、ERK1/2、p38和JNK磷酸化。[4]
在LPS诱导的小鼠急性肺损伤模型中,对伞花烃也降低了促炎细胞因子水平、炎症细胞浸润和组织水肿,并抑制IκBα及MAPK相关蛋白的磷酸化。[5]
4.3 对伞花烃调节NF-κB/MAPK通路的直接靶点尚未明确
上述结果表明,对伞花烃处理与LPS诱导的IκBα及MAPK相关蛋白磷酸化下降、促炎细胞因子产生减少相关。[4,5] 但这些结果主要反映信号通路活化状态的变化,尚不能确定对伞花烃直接结合或抑制了其中某个蛋白。
现有研究尚未确认对伞花烃是否直接作用于以下分子:
① Toll样受体4(TLR4);
② IκB激酶复合物(IKK);
③ ERK1/2、p38或JNK;
④ NF-κB蛋白本身。
现阶段可确认的是,对伞花烃干预与NF-κB和MAPK信号活化下降相关;其上游作用环节及直接分子靶点仍有待确定。
5 对伞花烃与问题肌肤的作用联系
5.1 问题肌肤由毛囊环境、微生物和炎症共同驱动
油脂分泌旺盛、毛囊口角化异常和皮脂滞留会改变毛囊内的脂质组成、氧化还原状态和营养条件。部分微生物菌株可能在这种环境中表现出较强的黏附、生物膜形成或炎症刺激能力。
痤疮丙酸杆菌现称Cutibacterium acnes,是皮脂丰富区域的常驻微生物。痤疮与健康皮肤之间的差异并不只是该菌总量发生变化,还涉及不同菌株和遗传谱系的比例差异。[6]
问题肌肤中的相互作用可表示为:
皮脂滞留和角化异常 → 毛囊环境改变 → 微生物组成或代谢改变 → 微生物来源刺激增加 → NF-κB/MAPK活化 → 炎症因子释放 → 毛囊壁水肿和角化进一步异常
基于现有微生物膜研究和LPS炎症模型,可以提出对伞花烃在问题肌肤中的潜在作用框架,但该框架尚未在痤疮丙酸杆菌相关皮肤模型或人体外用研究中得到直接验证:
微生物膜及抗菌复配效应 ← 对伞花烃 → NF-κB/MAPK相关炎症信号
左侧作用理论上可能降低部分微生物的生长或活性;右侧作用可能减弱宿主细胞的炎症信号输出。两方面可能共同影响“微生物刺激—炎症放大”的循环。
5.2 微生态效应取决于菌株敏感性与局部暴露
对伞花烃主要依靠疏水分配进入微生物膜。[2]目前没有证据表明其能够特异性识别痤疮相关菌株,或选择性保留皮肤共生菌。不同微生物对对伞花烃的敏感性可能存在差异,这些差异与细胞包膜结构、膜脂组成、生物膜状态及应激适应能力有关,但这不等同于对伞花烃具有明确的菌群选择性。
对皮肤微生态的实际影响取决于菌株敏感性、目标部位的游离浓度、暴露时间、复配成分以及毛囊和皮肤屏障状态。局部浓度过低时,难以产生预期作用;大面积或持续高浓度暴露则可能同时影响问题菌、共生菌和皮肤细胞。
因此,若开发对伞花烃的问题肌肤外用体系,研究重点应是通过浓度控制和毛囊递送,使其作用尽可能集中于需要干预的毛囊皮脂环境,并减少非目标区域暴露。
6 递送控制如何影响对伞花烃的局部作用
对伞花烃具有疏水性和挥发性。加入配方后,它会在油相、胶束或载体、皮肤表面、角质层脂质和毛囊皮脂之间不断分配。配方中的总添加量不能直接代表微生物膜或皮肤细胞实际接触到的浓度。
递送体系的主要作用是控制三个过程:
从配方中释放 → 向皮肤和毛囊分配 → 在目标部位形成局部暴露
6.1 配方总含量与目标部位暴露不同
对伞花烃加入乳液、凝胶或颗粒载体后,可能存在于油滴、胶束、聚合物基质、包装顶空、角质层脂质和毛囊皮脂中。不同位置的对伞花烃并不具有相同的生物可利用性。
评价递送效果时,可区分以下三个层次:
评价层次 | 含义 |
配方总含量 | 配方中对伞花烃的全部含量 |
可释放部分 | 能够从油相、包合物或颗粒载体中释放的比例及释放速率 |
目标部位局部浓度 | 分配到角质层、毛囊皮脂或细胞附近,并能够参与作用的对伞花烃浓度 |
若对伞花烃主要停留在配方油相或载体内部,目标部位的可利用量可能不足。若释放过快,则可能在皮肤表面形成短暂的浓度峰值,随后因挥发、扩散和组织分配而下降。
因此,配方研究不仅需要测定总含量,还应评价释放速率、挥发损失、皮肤分层分布和毛囊沉积。
6.2 β-环糊精包合改变分散与作用持续时间
β-环糊精(beta-cyclodextrin,β-CD)是一种环状低聚糖,外表面具有亲水性,内部空腔相对疏水。对伞花烃可进入其疏水空腔,形成动态的非共价包合平衡:
对伞花烃 + β-CD ⇌ 对伞花烃/β-CD包合物
包合有望改善对伞花烃在水性体系中的表观分散性,并通过改变游离—包合平衡影响其挥发、解离和释放行为。
在小鼠口服给药实验中,对伞花烃/β-CD包合物的镇痛作用持续时间长于游离对伞花烃,角叉菜胶诱导足肿胀模型中的抗炎作用也维持了较长时间。[7] 该研究支持β-CD包合可改变对伞花烃的体内暴露和作用持续时间,但没有评价人体皮肤外用释放、毛囊分布或局部耐受性。
外用包合体系需要进一步测定:
① 包合率和载药量;
② 包合物在配方中的稳定性;
③ 涂抹后的解离与释放速率;
④ 对伞花烃的挥发损失;
⑤ 角质层和毛囊中的分布。
6.3 PLGA载体调节对伞花烃释放
聚乳酸-羟基乙酸共聚物〔poly(lactic-co-glycolic acid),PLGA〕可将对伞花烃包载于聚合物纳米颗粒中。载体与包载分子之间的非共价相互作用会影响颗粒稳定性和释放行为。
相关研究显示,香芹酚可与PLGA形成较强且方向性明显的氢键;对伞花烃不含羟基,其与PLGA之间主要为色散力和疏水相互作用。实验中,香芹酚出现较快的初始释放,而对伞花烃表现出延迟释放,并在含金黄色葡萄球菌的条件下出现释放增加。[8]
这些结果说明,对伞花烃的释放并不只由分子疏水性决定,还受到以下因素影响:
影响因素 | 对释放行为的意义 |
对伞花烃与PLGA的相互作用 | 影响分子在聚合物基质中的保留与迁移 |
PLGA分子量及乳酸/乙醇酸比例 | 影响聚合物水化、降解和扩散过程 |
颗粒粒径与内部结构 | 影响扩散距离和表面积 |
外部介质与微生物环境 | 可能改变颗粒结构或对伞花烃释放 |
该研究采用PLGA纳米颗粒、体外释放和金黄色葡萄球菌体系,不能直接确定外用皮肤配方中的释放速度。用于皮肤研究时,还需评价颗粒在配方中的稳定性、初始释放、持续释放、皮肤沉积和细胞耐受性。
聚合物包载的目标不是单纯延长释放时间,而是使对伞花烃在目标部位形成相对稳定、可重复的局部暴露。
6.4 颗粒载体提高毛囊沉积的通用研究依据
皮脂分泌、痤疮丙酸杆菌定植及痤疮相关炎症主要涉及毛囊皮脂腺单位。对于这类问题,毛囊中的局部暴露比整个皮肤表面的平均浓度更具有研究意义。
颗粒载体可在毛囊开口处沉积。经典研究使用直径约320 nm的染料颗粒发现,在按摩条件下,颗粒形式进入猪皮毛囊的深度大于相同染料的非颗粒形式;人体皮肤实验中,颗粒形式在毛囊内可检测约10天,而非颗粒形式约为4天。未进行按摩时,两种制剂的毛囊进入差异不明显。[9]
这项研究证明了颗粒辅助毛囊沉积和储留的可行性,但研究对象是模型染料颗粒,并非对伞花烃。对伞花烃毛囊递送体系需要确认:
① 颗粒及所载对伞花烃是否进入毛囊;
② 对伞花烃能否在毛囊内从载体释放;
③ 释放位置是否接近皮脂和微生物定植区域;
④ 毛囊内局部浓度是否达到预期作用范围;
⑤ 表皮、共生菌和皮肤细胞的非目标暴露是否减少。
毛囊沉积也不等同于对伞花烃已经到达毛囊深部或皮脂腺。颗粒位置、活性物释放位置和局部生物效应需要分别测定。
目前尚缺少对伞花烃人体外用递送体系的直接证据。其配方应用需要同时确认局部浓度、抗菌协同、炎症指标、共生菌影响和皮肤耐受性,才能判断递送技术是否真正改善了作用效率。
7 对伞花烃抗菌协同、炎症通路与递送研究相关化学品分类及科研应用
说明:下表包括对伞花烃核心原料、结构与作用对照成分、炎症通路研究试剂及递送相关材料,主要用于化学分析、体外实验、机理研究或实验室配方研究。部分产品为根据本文研究逻辑列出的扩展对照或候选材料,不代表均已在对伞花烃、痤疮丙酸杆菌或人体皮肤外用研究中获得直接验证。
表1 对伞花烃核心原料、结构对照与抗菌协同成分
分类 | Cas编号 | 阿拉丁货号 | 名称 | 规格或纯度 | 产品特色与应用 |
核心芳香族单萜原料 | 99-87-6 | 4-异丙基甲苯 | ≥98% | 对伞花烃核心研究原料;用于芳香族单萜结构、细菌膜分配、膜流动性变化、抗菌协同及炎症信号调节研究。 | |
伞花烃位置异构体对照 | 527-84-4 | 邻伞花烃 | ≥98%(GC) | 用于比较甲基与异丙基取代位置对疏水分配、脂质膜相互作用及微生物抑制活性的影响。 | |
伞花烃位置异构体对照 | 535-77-3 | 间伞花烃 | ≥98% | 用于伞花烃位置异构体的结构鉴别、色谱分析、膜分配及抗菌构效关系研究。 | |
非芳香族单萜骨架对照 | 99-85-4 | γ-萜品烯 | ≥95%(GC) | 用于非芳香族单萜向芳香族单萜转化的结构对照、氧化稳定性及脂质膜分配研究。 | |
环状单萜疏水性对照 | 138-86-3 | 双戊烯 | ≥95% | 用于比较环状非芳香族单萜与对伞花烃在疏水分配、膜扰动、挥发性及氧化行为方面的差异。 | |
酚类单萜抗菌协同成分 | 499-75-2 | 香芹酚 | Moligand™, ≥99% | 对伞花烃相关酚类结构对照;用于酚羟基构效关系、膜电位、跨膜酸碱梯度、三磷酸腺苷变化及抗菌协同研究。 | |
酚类单萜抗菌协同成分 | 89-83-8 | 麝香草酚 | Moligand™, ≥99%(GC) | 含酚羟基单萜;用于与对伞花烃复配,研究细菌膜通透性、离子稳态、质子动力势及生物膜抑制作用。 | |
酚羟基抗菌结构对照 | 3228-02-2 | 4-异丙基-3-甲基苯酚 | ≥99%(HPLC) | 用于比较伞花烃骨架引入酚羟基后的直接抑菌、防腐、膜通透性及微生物敏感性差异。 |
表2 细菌膜模型、炎症诱导与信号通路对照试剂
分类 | Cas编号 | 阿拉丁货号 | 名称 | 规格或纯度 | 产品特色与应用 |
定义型磷脂膜模型材料 | 63-89-8 | 1,2-二棕榈酰-sn-甘油-3-磷酰胆碱(DPPC) | Moligand™, ≥99% | 用于构建脂质体或磷脂双层模型,研究对伞花烃的膜分配、膜膨胀、流动性及通透性变化。 | |
炎症模型诱导剂 | 93572-42-0 | 脂多糖(LPS) | 来源于大肠杆菌 055:B5, purified by trichloroacetic acid extraction | 用于建立巨噬细胞及相关免疫细胞炎症模型,检测对伞花烃对促炎细胞因子、核因子κB及丝裂原活化蛋白激酶信号的影响。 | |
p38通路对照抑制剂 | 152121-47-6 | SB-203580,p38 MAPK抑制剂 | Moligand™, ≥98%(HPLC) | 用于p38丝裂原活化蛋白激酶通路阻断对照,分析对伞花烃作用与p38磷酸化及炎症因子表达的关系。 | |
核因子κB通路对照抑制剂 | 19542-67-7 | BAY 11-7082,IκBα磷酸化抑制剂 | Moligand™, ≥98% | 用于抑制IκBα磷酸化,作为NF-κB信号阻断的工具化合物对照,研究对伞花烃处理后促炎细胞因子转录和表达变化。 | |
细胞外信号调节激酶通路对照抑制剂 | 109511-58-2 | U0126,MEK1/2抑制剂 | Moligand™, ≥98% | 用于阻断MEK1/2—ERK1/2信号,分析对伞花烃对细胞外信号调节激酶磷酸化及炎症反应的影响。 | |
c-Jun氨基末端激酶通路对照抑制剂 | 129-56-6 | SP600125〔蒽[1,9-cd]吡唑-6(2H)-酮〕 | Moligand™, ≥98% | 作为JNK通路工具抑制剂对照,用于分析相关激酶磷酸化、转录调控及炎症因子表达变化。 |
表3 对伞花烃包合、缓释与局部递送材料
分类 | Cas编号 | 阿拉丁货号 | 名称 | 规格或纯度 | 产品特色与应用 |
主客体包合材料 | 7585-39-9 | β-环糊精 | ≥98% | 用于与对伞花烃形成主客体包合体系,改善水相分散、降低挥发损失并调节游离成分释放。 | |
水溶性环糊精包合材料 | 128446-35-5 | 环糊精HPB | PharmPure™, USP | 水溶性环糊精衍生物;用于对伞花烃增溶、包合稳定性、游离浓度及释放动力学研究。 | |
生物可降解缓释载体 | 26780-50-7 | Resomer® RG 505,聚(D,L-丙交酯-co-乙交酯)(PLGA) | 酯封端,Mw54000-69000 | 用于制备生物可降解纳米粒或微囊,研究对伞花烃包载、初始释放、持续释放、皮肤沉积及毛囊递送。 | |
阳离子高分子包载材料 | 9012-76-4 | 壳聚糖 | 中粘度,200-400 mPa.s | 用于制备阳离子微粒、纳米粒、复合膜或水凝胶,研究黏附、包载、缓释及毛囊局部滞留。 | |
离子凝胶与微囊材料 | 9005-38-3 | 海藻酸 钠盐 来源于褐藻 | 中等粘度 | 用于离子凝胶微囊、水凝胶及复合载体制备,研究对伞花烃包封、扩散释放和局部滞留。 | |
颗粒乳化与悬浮稳定材料 | 9002-89-5 | Mowiol® PVA-124聚乙烯醇(PVA) | 粘度Viscosity:54-66 mPa·s | 用于聚合物颗粒制备过程中的乳化和悬浮稳定,调节粒径、包封率、表面性质及释放行为。 | |
胶束与温敏凝胶材料 | 9003-11-6 | Kolliphor® P 407 | 氧乙烯71.5-74.9% | 用于胶束增溶、温敏凝胶及局部缓释体系,研究对伞花烃分散、释放、皮肤滞留和使用流变性。 | |
磷脂囊泡与脂质载体材料 | 8002-43-5 | 磷脂 来自向日葵(非转基因) | 天然, with ≥60% phosphatidylcholine | 用于脂质体、囊泡及脂质纳米载体构建,研究对伞花烃包载、磷脂膜相互作用、释放及局部递送。 | |
脂质双层稳定组分 | 57-88-5 | 胆固醇,来自羊毛脂 | PharmPure™, JP, BP, 欧洲药典(Ph.Eur), NF, 超纯级 | 用于调节脂质体双层有序性、流动性和渗漏,评价对伞花烃载体的结构稳定性、包载保持及释放行为。 |
注:以上为阿拉丁代表性科研及配方研究相关产品,更多产品规格、级别、COA信息可用“品名/CAS/货号”在阿拉丁官网检索。
参考文献
[1] National Center for Biotechnology Information. PubChem Compound Summary for CID 7463, p-Cymene. PubChem Database. Accessed July 23, 2026.
[2] Ultee A, Bennik M H J, Moezelaar R. The phenolic hydroxyl group of carvacrol is essential for action against the food-borne pathogen Bacillus cereus. Applied and Environmental Microbiology, 2002, 68(4): 1561-1568. DOI: 10.1128/AEM.68.4.1561-1568.2002.
[3] Kiskó G, Roller S. Carvacrol and p-cymene inactivate Escherichia coli O157:H7 in apple juice. BMC Microbiology, 2005, 5: 36. DOI: 10.1186/1471-2180-5-36.
[4] Zhong W, Chi G, Jiang L, Soromou L W, Chen N, Huo M, Guo W, Deng X, Feng H. p-Cymene modulates in vitro and in vivo cytokine production by inhibiting MAPK and NF-κB activation. Inflammation, 2013, 36(3): 529-537. DOI: 10.1007/s10753-012-9574-y.
[5] Xie G, Chen N, Soromou L W, Liu F, Xiong Y, Wu Q, Li H, Feng H, Liu G. p-Cymene protects mice against lipopolysaccharide-induced acute lung injury by inhibiting inflammatory cell activation. Molecules, 2012, 17(7): 8159-8173. DOI: 10.3390/molecules17078159.
[6] Fitz-Gibbon S, Tomida S, Chiu B H, Nguyen L, Du C, Liu M, et al. Propionibacterium acnes strain populations in the human skin microbiome associated with acne. Journal of Investigative Dermatology, 2013, 133(9): 2152-2160. DOI: 10.1038/jid.2013.21.
[7] Quintans J S S, Menezes P P, Santos M R V, Bonjardim L R, Almeida J R G S, Gelain D P, Araújo A A S, Quintans-Júnior L J. Improvement of p-cymene antinociceptive and anti-inflammatory effects by inclusion in β-cyclodextrin. Phytomedicine, 2013, 20(5): 436-440. DOI: 10.1016/j.phymed.2012.12.009.
[8] Romero-Montero A, Medel E, Gutiérrez-Flores J, García-Aguirre I A, Vargas R, Del Prado-Audelo M L. The crucial role of noncovalent interactions in PLGA nanoparticles: impact on carvacrol/p-cymene release, biological activity, and antibiofilm properties. ACS Omega, 2026, 11(1): 1505-1520. DOI: 10.1021/acsomega.5c09202.
[9] Lademann J, Richter H, Teichmann A, Otberg N, Blume-Peytavi U, Luengo J, Weiß B, Schaefer U F, Lehr C M, Wepf R, Sterry W. Nanoparticles—an efficient carrier for drug delivery into the hair follicles. European Journal of Pharmaceutics and Biopharmaceutics, 2007, 66(2): 159-164. DOI: 10.1016/j.ejpb.2006.10.019.
更多相关文章,详见下方:
细胞培养包被体系中玻连蛋白、层粘连蛋白与纤连蛋白的适用性比较
谷胱甘肽(GSH)含量检测:方法体系、实验流程与质量控制要点
谷胱甘肽还原酶:维持GSH/GSSG稳态的黄素依赖还原体系及其检测与应用


 危险品化学品经营许可证(带存储)