
猴痘病毒关键抗原的生命周期功能、 免疫学特征与诊疗研究应用
猴痘病毒关键抗原的生命周期功能、 免疫学特征与诊疗研究应用
猴痘病毒可形成成熟病毒粒子和包膜病毒粒子,不同表面抗原分别参与病毒附着、膜融合和细胞间传播,也是核酸检测、免疫诊断、疫苗设计及抗病毒药物研究的重要靶点。
关键词:猴痘病毒;正痘病毒;成熟病毒粒子;包膜病毒粒子;A29L;M1R;A35R;H3L;免疫逃逸;核酸检测;中和抗体
1 猴痘病毒的基因组结构与病毒学特征
1.1 猴痘病毒的分类与基本结构
猴痘病毒(monkeypox virus,MPXV)属于痘病毒科正痘病毒属,是一种具有包膜的双链DNA病毒。病毒粒子呈砖形或卵圆形,内部由核样核心、侧体和脂蛋白膜构成。猴痘病毒与痘苗病毒、天花病毒等正痘病毒具有较高的基因和抗原同源性,因此不同正痘病毒之间可产生一定程度的交叉免疫。
1.2 双链DNA基因组结构
猴痘病毒基因组为线性双链DNA,两端具有共价闭合的发夹结构和倒置末端重复序列。基因组中央区域主要编码DNA复制、转录、病毒粒子组装和膜融合等保守功能蛋白,两端区域则富含宿主范围、毒力和免疫调控相关基因。末端基因的缺失、重复或变异可影响病毒的组织适应、免疫逃逸和传播特征。
1.3 胞质复制特征
与多数DNA病毒不同,猴痘病毒的转录和基因组复制主要在宿主细胞胞质内进行。病毒粒子自身携带DNA依赖性RNA聚合酶、转录因子和mRNA加工酶,可在进入细胞后迅速启动早期基因表达,不依赖宿主细胞核内转录系统。
1.4 早期、中期与晚期基因表达
猴痘病毒基因表达具有明确的时间顺序。早期基因主要编码DNA复制酶、免疫逃逸蛋白和宿主调控因子;DNA复制启动后表达中期基因,推动晚期转录;晚期基因则主要编码核心蛋白、膜蛋白、组装蛋白和病毒粒子结构成分。不同阶段之间形成连续调控,保证病毒复制与形态发生按顺序完成。
1.5 病毒分支与抗原保守性
不同猴痘病毒分支之间存在一定的基因序列和毒力差异,但多数核心复制蛋白、膜融合蛋白及主要结构抗原较为保守。A29L、M1R、A35R和H3L等抗原总体保持稳定的结构与功能,是疫苗、抗体和免疫检测研究的重要候选靶点。
表1 猴痘病毒主要功能蛋白及研究定位
功能阶段 | 代表性蛋白或同源蛋白 | 主要功能 | 主要研究应用 |
病毒附着 | A29L、H3L、E8L | 结合细胞表面糖胺聚糖或基质分子 | 附着抑制、中和抗体和疫苗研究 |
膜融合与入侵 | M1R及进入融合复合物成员 | 介导病毒膜与宿主膜融合 | 入侵机制和中和抗体评价 |
DNA复制 | E9L、D5R、A20R、D4R | DNA聚合、解旋和复制延伸 | 复制机制及抑制剂研究 |
病毒组装 | D13L、A14L、A17L、A10L | 膜形成、支架组装和核心成熟 | 病毒形态发生研究 |
包膜与释放 | F13L/VP37、A35R | 包裹、运输和细胞外传播 | 抗病毒药物和传播阻断研究 |
免疫逃逸 | 干扰素、补体及细胞因子调节蛋白 | 抑制固有免疫和炎症反应 | 毒力、宿主反应和药物靶点研究 |
2 成熟病毒粒子与包膜病毒粒子的形成及传播
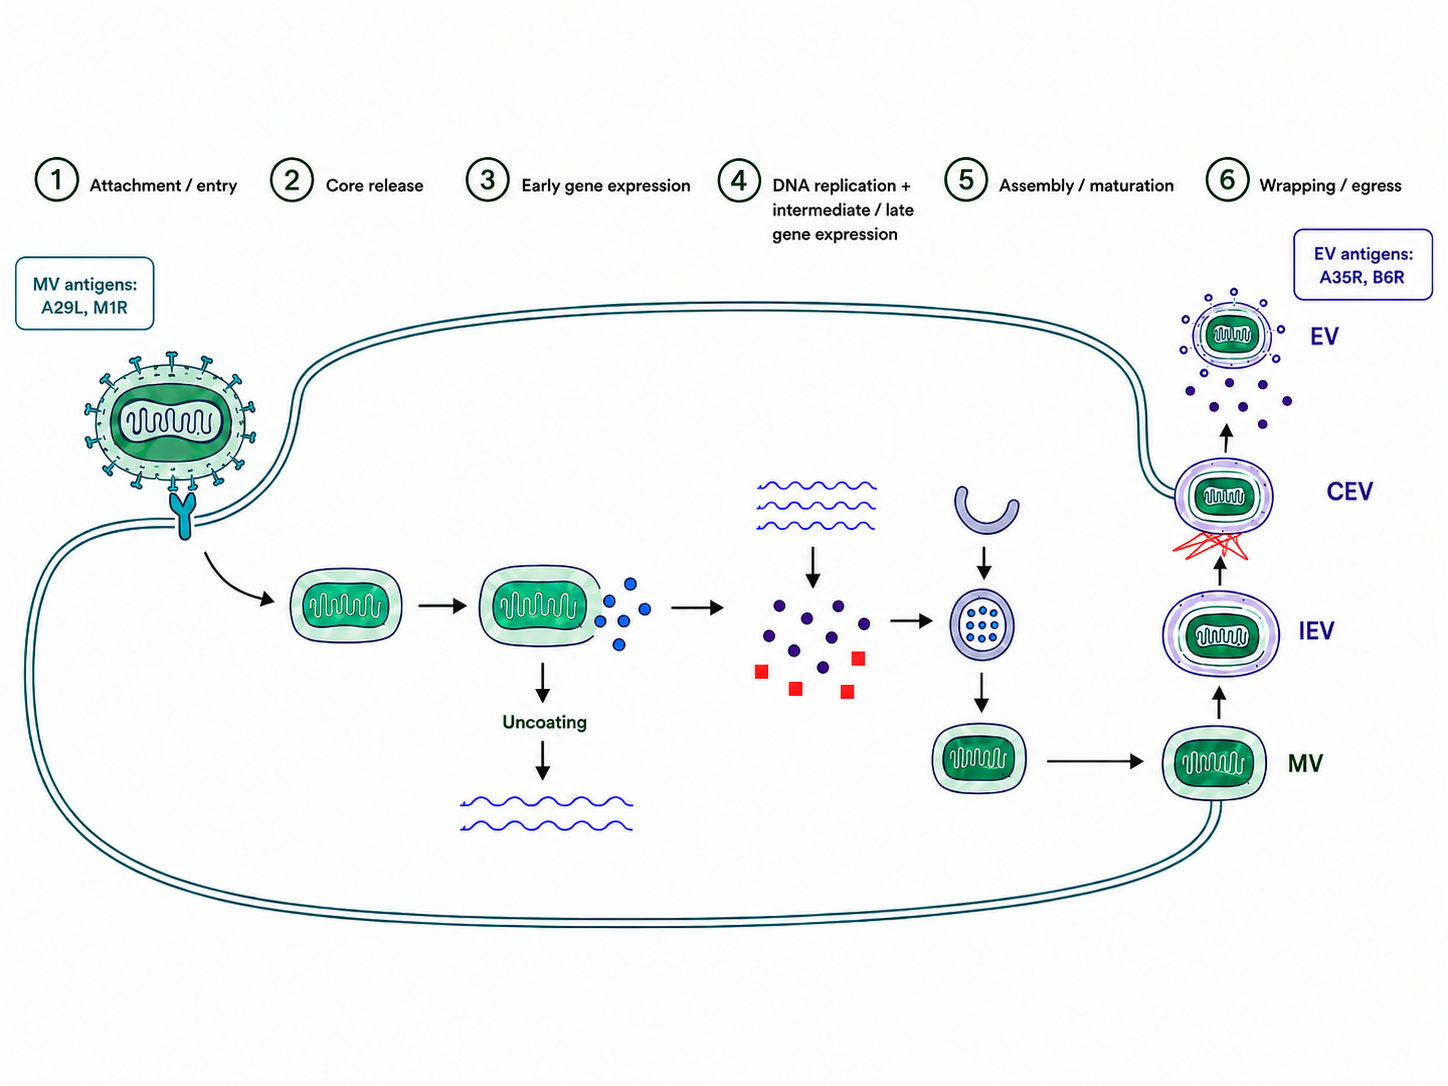
图1 猴痘病毒胞质复制及成熟病毒粒子与包膜病毒粒子的形成过程
2.1 两类感染性病毒粒子
猴痘病毒主要形成成熟病毒粒子(mature virion,MV)和包膜病毒粒子(enveloped virion,EV)两类感染性形式。MV具有较强的环境稳定性,适合在宿主之间传播;EV在MV外侧增加额外膜结构,更有利于病毒在组织内进行细胞间和远距离扩散。
2.2 成熟病毒粒子的形成
病毒复制后,胞质病毒工厂内首先形成新月形膜结构,并逐步包围病毒核心成分形成未成熟病毒粒子。支架蛋白移除、核心蛋白水解和核样结构凝聚后,未成熟粒子转化为具有感染性的MV。MV是病毒裂解释放和环境传播的重要形式。
2.3 包裹病毒粒子的形成
部分MV进一步获得来源于高尔基体或内体系统的附加膜,形成胞内包裹病毒粒子。该过程依赖F13L/VP37及其他膜运输蛋白。包裹粒子随后沿微管向细胞周边运输,并与细胞膜融合,将外层病毒粒子暴露于细胞表面。
2.4 细胞相关与细胞外包膜病毒
到达细胞表面的包膜病毒可停留在细胞膜形成细胞相关包膜病毒,也可释放至胞外形成细胞外包膜病毒。细胞相关病毒可诱导肌动蛋白尾形成,推动病毒向邻近细胞传播;胞外包膜病毒则参与组织内远距离扩散。
2.5 MV与EV传播功能差异
MV的膜结构相对稳定,适合宿主间传播和长期环境存留;EV外膜较脆弱,但能够帮助病毒逃避部分中和抗体,并提高体内扩散效率。针对单一病毒粒子形式的抗体可能无法完全阻断感染,因此疫苗和抗体组合通常需要同时覆盖MV与EV抗原。
比较项目 | 成熟病毒粒子(MV) | 包膜病毒粒子(EV) |
膜结构 | 具有成熟病毒膜 | 在MV外增加包膜结构 |
主要形成位置 | 胞质病毒工厂 | 高尔基体或内体相关膜系统 |
主要传播方式 | 宿主间传播和细胞裂解释放 | 细胞间及组织内远距离传播 |
环境稳定性 | 相对较高 | 外膜较脆弱 |
代表性抗原 | A29L、M1R、H3L、E8L | A35R等包膜抗原 |
抗体研究重点 | 阻断附着和膜融合 | 阻断细胞间传播和体内扩散 |
3 猴痘病毒附着、入侵与膜融合相关蛋白
3.1 病毒附着的多蛋白协同机制
猴痘病毒不依赖单一受体完成附着,而是利用多个表面蛋白与宿主细胞糖胺聚糖、细胞外基质和膜蛋白相互作用。多蛋白冗余能够扩大病毒的细胞嗜性,并降低单一附着蛋白变异对感染能力的影响。
3.2 A29L附着蛋白
A29L是MV表面的重要附着抗原,与痘苗病毒A27同源,可参与病毒与细胞表面分子的结合。A29L具有较好的免疫原性,抗A29L抗体可用于研究病毒粒子识别、附着阻断和抗体介导的免疫反应。
3.3 H3L及糖胺聚糖结合
H3L位于MV表面,可结合细胞表面的硫酸乙酰肝素等糖胺聚糖,促进病毒在宿主细胞膜上的富集。H3L既可作为抗体靶点,也可用于分析病毒附着效率和不同细胞类型的感染易感性。
3.4 E8L与细胞外基质识别
猴痘病毒E8L与痘苗病毒D8同源,可识别硫酸软骨素等细胞表面或细胞外基质成分,并与其他附着蛋白共同稳定病毒—细胞接触。由于不同附着蛋白具有部分功能重叠,单独阻断其中一个蛋白通常只能部分降低病毒附着。
3.5 M1R与病毒膜融合
M1R是MV膜表面高度保守的抗原,与痘苗病毒L1同源。M1R参与病毒进入和膜融合相关过程,其构象依赖二硫键形成和膜定位。靶向M1R的抗体可用于研究病毒进入阻断,是多抗原疫苗和抗体组合的重要组成。
3.6 进入融合复合物
猴痘病毒膜融合由多个高度保守的跨膜蛋白组成的进入融合复合物共同完成。该复合物包括A16、A21、A28、G4、G9、H2、J5、L1、L5、O3和F9等正痘病毒同源成员。任一关键组分缺失均可能导致病毒附着后无法完成膜融合或核心释放。
3.7 不同入侵途径
猴痘病毒可根据细胞类型和病毒粒子形式,通过细胞膜直接融合或内吞途径进入细胞。内吞后,病毒受到酸化、膜重排及宿主因子影响,随后由进入融合复合物介导病毒核心释放至胞质。
4 猴痘病毒复制、组装与释放相关蛋白
4.1 早期转录复合物
病毒核心进入胞质后,粒子内预装的RNA聚合酶和早期转录因子立即启动早期基因表达。早期蛋白负责解除病毒核心、抑制宿主免疫并建立DNA复制环境,为后续基因组扩增和结构蛋白表达提供基础。
4.2 E9L DNA聚合酶
E9L编码病毒DNA聚合酶,是猴痘病毒基因组复制的核心酶。E9L与过程性因子A20R和D4R形成复制复合物,提高DNA合成速度和连续性。核苷酸类似物可通过干扰病毒DNA合成抑制复制,因此E9L及其复合物是抗病毒药物研究的重要靶点。
4.3 D5R解旋酶—引物酶
D5R具有解旋和核苷三磷酸酶相关功能,参与复制起始及复制叉推进。D5R功能受损会阻断病毒DNA扩增,并进一步抑制中期和晚期基因表达,因此适合作为复制机制和新型抑制剂研究靶点。
4.4 病毒膜形成与未成熟粒子组装
A14L和A17L等膜蛋白参与新月形膜的形成与稳定,D13L则在膜外侧形成支架结构,控制未成熟病毒粒子的几何形态。随后病毒基因组、核心蛋白及酶复合物被装入膜结构,完成未成熟病毒粒子的组装。
4.5 核心成熟与蛋白水解
未成熟病毒粒子形成后,病毒蛋白酶对多种核心前体蛋白进行加工,使核心结构凝聚并获得感染能力。A10L、A3L等核心蛋白的正确切割对于成熟病毒粒子形成至关重要,蛋白加工受阻可产生形态存在但缺乏完整感染能力的病毒粒子。
4.6 F13L与病毒包裹
F13L编码的VP37蛋白位于包裹病毒相关膜结构,参与MV获得附加膜和形成包裹病毒粒子。抑制F13L/VP37不会完全阻止胞内MV形成,但会减少包膜病毒产生和释放,从而限制病毒在宿主体内扩散。
4.7 A35R介导的包膜病毒传播
A35R是EV表面的关键抗原,与痘苗病毒A33同源,参与包膜稳定、细胞表面传播和免疫识别。靶向A35R的抗体可用于研究EV扩散阻断,与MV相关抗体组合后能够覆盖病毒生命周期中的不同传播形式。
5 猴痘病毒免疫逃逸与宿主反应调控机制
5.1 干扰素通路抑制
猴痘病毒编码多种胞内拮抗蛋白和分泌型结合蛋白,可抑制I型干扰素产生、阻断干扰素受体信号或中和胞外干扰素。部分病毒蛋白还能抑制PKR、OAS-RNase L和干扰素刺激基因相关反应,使感染细胞能够继续完成病毒蛋白合成。
5.2 cGAS-STING信号逃逸
猴痘病毒DNA进入胞质后可被cGAS识别,促进第二信使cGAMP形成并激活STING、TBK1和IRF3信号,诱导I型干扰素产生。病毒可通过干扰DNA感知、STING复合物形成或IRF3活化降低宿主先天免疫反应,从而延长复制窗口。
5.3 TBK1与IRF3活化
STING激活后可募集并促进TBK1磷酸化,活化的TBK1进一步磷酸化IRF3。IRF3二聚并进入细胞核后启动干扰素及相关抗病毒基因表达。检测TBK1总蛋白和Ser172位点磷酸化有助于区分通路表达变化与实际活化状态。
5.4 JAK-STAT抗病毒信号
I型干扰素与受体结合后可激活JAK1和TYK2,并进一步促进STAT1和STAT2磷酸化。STAT复合物进入细胞核后诱导多种抗病毒基因表达。病毒对干扰素受体、JAK或STAT环节的抑制会降低宿主细胞建立抗病毒状态的能力。
5.5 NF-κB与炎症反应调控
病毒编码的多种免疫调节蛋白可作用于TNF受体、TLR、IKK及NF-κB通路,降低促炎细胞因子表达。部分病毒蛋白还可结合趋化因子或模拟细胞因子受体,限制免疫细胞向感染部位募集。
5.6 补体系统逃逸
部分猴痘病毒编码具有补体调节功能的蛋白,可干扰补体级联和病毒粒子清除。不同病毒分支中相关基因的完整性可能存在差异,使补体逃逸能力和疾病表型出现一定不同。
5.7 细胞凋亡与宿主范围调控
猴痘病毒可表达Bcl-2样蛋白、Caspase调节蛋白及其他凋亡抑制因子,延缓感染细胞死亡。宿主范围蛋白还可调节翻译、泛素化和应激反应,使病毒在不同细胞和物种中维持复制。
5.8 抗体和补体介导的病毒清除
抗体可通过直接阻断病毒附着或进入、促进补体活化、增强吞噬和介导抗体依赖性细胞毒作用限制病毒感染。MV和EV具有不同的表面抗原,单一抗体通常只能覆盖部分感染形式,多抗原免疫反应更有利于形成完整保护。
5.9 T细胞免疫应答
CD8⁺T细胞可识别感染细胞呈递的病毒肽并介导细胞毒性杀伤,CD4⁺T细胞则辅助抗体产生和免疫记忆形成。由于许多正痘病毒核心蛋白高度保守,痘苗病毒诱导的T细胞可与猴痘病毒抗原发生交叉反应。
6 猴痘病毒关键抗原在核酸检测与免疫诊断中的应用
6.1 核酸检测与抗原检测的区别
猴痘病毒核酸检测识别的是病毒基因组序列,而免疫诊断识别的是病毒蛋白抗原或宿主抗体。关键抗原的编码基因可作为核酸检测靶点,但基因阳性不能直接证明相应蛋白处于高表达状态,两类检测结果应根据样本类型和疾病阶段分别解释。
6.2 实时荧光PCR检测
实时荧光PCR是猴痘病毒实验室检测的重要方法,可选择猴痘病毒特异性基因位点,并配合正痘病毒保守位点进行筛查与确认。检测体系设计需要评价不同病毒分支的序列保守性,并避免与其他正痘病毒发生交叉扩增。
6.3 样本类型与病毒载量
皮损表面、疱液、痂皮和皮损拭子通常含有较高水平的病毒DNA,适合核酸检测。血液、唾液或咽拭子中的病毒载量受疾病阶段影响较大,阴性结果不能完全排除局限于皮损的感染。样本采集质量和内源性对照是减少假阴性的关键。
6.4 多重核酸检测
多重PCR可同时检测正痘病毒通用位点、猴痘病毒特异位点及内参基因,并可增加其他皮疹相关病原体靶标。多靶点设计能够降低单一位点突变引起漏检的风险,并提高鉴别诊断效率。
6.5 测序与病毒分支分析
全基因组或靶向测序可用于病毒分支判定、传播链分析、突变监测和抗病毒药物耐受机制研究。测序可对PCR阳性样本进行进一步流行病学和功能分析,但通常不替代快速核酸检测。
6.6 病毒抗原检测
A29L、M1R、A35R、H3L和E8L等结构蛋白可作为抗原捕获检测的候选靶点。抗原检测速度较快,但灵敏度受病毒载量、表位保守性、病毒粒子形式和样本处理方式影响,更适合作为核酸检测的补充。
6.7 抗体检测与交叉反应
感染或接种正痘病毒疫苗后可产生针对多种MV和EV抗原的IgM及IgG。由于正痘病毒抗原具有较高同源性,既往疫苗接种和其他正痘病毒暴露可导致交叉反应,单次血清抗体阳性不能独立确认近期猴痘病毒感染。
6.8 多抗原血清学检测
联合检测MV和EV相关抗原的抗体可提高血清学分析的完整性。A29L、M1R、H3L和E8L主要反映针对MV的抗体反应,A35R则反映针对EV的抗体反应。结合急性期与恢复期配对血清及功能性抗体评价,有助于区分既往免疫与近期感染。
表3 猴痘病毒主要诊断靶点及应用特点
检测类型 | 代表性靶点 | 主要样本 | 主要用途 | 主要限制 |
正痘病毒通用PCR | 保守复制基因 | 皮损拭子、痂皮 | 正痘病毒筛查 | 不能单独确定猴痘病毒 |
猴痘病毒特异PCR | 病毒特异性基因位点 | 皮损拭子、疱液 | 病毒特异性确认 | 需监测靶区变异 |
基因组测序 | 全基因组或多个靶区 | PCR阳性样本 | 分支判定和传播分析 | 成本和分析时间较高 |
抗原检测 | A29L、M1R、A35R、H3L、E8L | 皮损或分泌物 | 快速病毒蛋白检测 | 灵敏度通常低于核酸检测 |
IgM/IgG检测 | 多种MV和EV抗原 | 血清、血浆 | 免疫应答和血清流行病学研究 | 正痘病毒交叉反应明显 |
功能性抗体评价 | MV或EV抗原体系 | 血清、抗体样本 | 评价疫苗及抗体功能 | 实验标准化要求较高 |
7 猴痘病毒疫苗、抗病毒药物与中和抗体研究
7.1 痘苗病毒疫苗的交叉保护
猴痘病毒与痘苗病毒共享大量保守结构抗原和T细胞表位,因此痘苗病毒疫苗可诱导交叉反应性体液和细胞免疫。非复制型或复制受限型痘苗病毒疫苗可通过表达多种MV与EV抗原形成较广的免疫覆盖。
7.2 多抗原亚单位疫苗
A29L、M1R、A35R、H3L和E8L可用于猴痘病毒亚单位疫苗及多抗原免疫研究。MV抗原主要覆盖病毒附着与进入,EV抗原则用于覆盖包膜病毒传播。多抗原组合通常比单一抗原更有利于产生兼顾病毒识别和传播阻断的抗体反应。
7.3 核酸与载体疫苗
DNA、mRNA和病毒载体疫苗可同时表达多个猴痘病毒抗原,并通过细胞内表达诱导抗体和T细胞反应。抗原构象、信号肽、跨膜区保留方式和表达比例会影响免疫原性,膜蛋白抗原尤其需要维持天然构象表位。
7.4 Tecovirimat与F13L/VP37
Tecovirimat靶向F13L编码的VP37蛋白,抑制成熟病毒粒子获得附加膜及包膜病毒形成,从而限制病毒释放和体内传播。其药效评价应同时关注细胞内病毒、胞外包膜病毒和细胞间传播变化。
7.5 Cidofovir与Brincidofovir
Cidofovir及其脂质前药Brincidofovir通过形成核苷酸类似物并干扰病毒DNA聚合酶,抑制猴痘病毒基因组复制。相关研究可评价病毒DNA水平、结构蛋白表达、病毒粒子形成及宿主细胞耐受性。
7.6 抗病毒药物耐受机制评价
F13L/VP37变化可能影响病毒对Tecovirimat的敏感性,DNA聚合酶或复制复合物变化则可能影响核苷酸类似物活性。耐受机制研究需要结合病毒基因变化、药物敏感性和复制适应性综合评价。
7.7 MV相关抗体
靶向A29L、M1R、H3L和E8L等MV膜抗原的抗体可用于研究病毒附着、膜融合和核心释放。不同抗体的作用受到表位可及性、亲和力、抗原构象和病毒粒子成熟状态影响,因此重组蛋白结合结果需要结合细胞或病毒粒子水平实验解释。
7.8 EV传播阻断抗体
靶向A35R等EV表面抗原的抗体可用于研究包膜病毒在细胞之间的传播,并分析补体和Fc受体参与的病毒清除。EV相关抗体与MV相关抗体组合,可覆盖不同病毒粒子形式。
7.9 多克隆抗体与单克隆抗体组合
多克隆免疫球蛋白可识别多个正痘病毒表位,降低单一表位变化导致免疫逃逸的风险;单克隆抗体则具有明确靶点和较高批次一致性。多抗体组合应覆盖不同病毒粒子形式和非重叠表位,并避免抗体之间发生明显空间竞争。
抗体研究可采用病毒粒子结合、细胞附着阻断、病毒进入抑制、空斑减少、报告系统或细胞间传播评价。由于MV和EV对抗体的敏感性不同,实验中应明确所评价的病毒粒子形式,并结合补体依赖性及Fc效应进行分析。
8 产品
8.1 猴痘病毒关键抗原、抗体与标记抗体产品
货号 | 名称 | 级别和纯度 | 主要用途 |
Recombinant MPXV A29L Protein | 无载体,无叠氮钠,His标签,PBS Only,≥95%(SDS-PAGE) | A29L抗体筛选、病毒附着及MV抗原免疫原性研究 | |
A29L Mouse mAb | 无载体,ExactAb™,无叠氮钠,已验证,PBS Only,1.0 mg/mL | A29L蛋白检测、病毒粒子识别和抗原表达分析 | |
A29L Mouse mAb | 无载体,ExactAb™,无叠氮钠,已验证,PBS Only,1.0 mg/mL | A29L抗原检测及不同抗体克隆比较 | |
Mouse IgG2a-kappa, anti-A29L | 无动物源,无载体,ExactAb™,无叠氮钠,已验证,高性能,PBS Only,≥95%(SDS-PAGE),1.0 mg/mL | A29L结合、病毒附着阻断和抗体功能研究 | |
Mouse IgG2a-kappa (Biotin), anti-A29L | ExactAb™,已验证,0.5 mg/mL | 生物素检测、抗原捕获及抗体配对研究 | |
Mouse IgG2a-kappa (AF488), anti-A29L | ExactAb™,已验证,0.5 mg/mL | A29L荧光定位、细胞成像和流式分析 | |
Mouse IgG2a-kappa (AF555), anti-A29L | ExactAb™,已验证,0.5 mg/mL | A29L荧光成像及多重染色研究 | |
Mouse IgG2a-kappa (AF594), anti-A29L | ExactAb™,已验证,0.5 mg/mL | 感染相关抗原定位和共定位分析 | |
Mouse IgG2a-kappa (AF647), anti-A29L | ExactAb™,已验证,0.5 mg/mL | 远红光成像、流式细胞术及多色检测 | |
Mouse IgG2a-kappa (AF700), anti-A29L | ExactAb™,已验证,0.5 mg/mL | 多参数流式细胞术中的A29L检测 | |
Mouse IgG2a-kappa (FITC), anti-A29L | ExactAb™,已验证,0.5 mg/mL | FITC通道流式检测和荧光成像 | |
Mouse IgG2a-kappa (PE), anti-A29L | ExactAb™,已验证,0.5 mg/mL | 高灵敏度流式细胞检测 | |
Mouse IgG2a-kappa (APC), anti-A29L | ExactAb™,已验证,0.5 mg/mL | APC通道流式检测和多色免疫分析 | |
Recombinant MPXV A30L Protein | 无动物源,无载体,无叠氮钠,His标签,PBS Only,≥95%(SDS-PAGE) | A30L抗原制备、抗体筛选及血清学研究 | |
Recombinant MPXV M1R Protein | 无动物源,无载体,无叠氮钠,His标签,PBS Only,≥95%(SDS-PAGE) | M1R抗体筛选、病毒进入和MV抗原研究 | |
Recombinant MPXV H3L Protein | 无动物源,无载体,无叠氮钠,His标签,PBS Only,≥95%(SDS-PAGE) | H3L介导的糖胺聚糖结合、附着和抗体反应研究 | |
Recombinant MPXV E8L Protein | 无动物源,无载体,无叠氮钠,His标签,PBS Only,≥95%(SDS-PAGE) | E8L附着抗原、细胞外基质结合及免疫检测研究 | |
Recombinant MPXV A35R Protein | 无动物源,无载体,无叠氮钠,His标签,PBS Only,≥95%(SDS-PAGE),见COA | EV抗原、包膜病毒传播及多抗原疫苗研究 | |
Recombinant MPXV A35R Protein | 无载体,无叠氮钠,His标签,PBS Only,≥95%(SDS-PAGE) | A35R抗体筛选、血清学检测和包膜抗原研究 | |
A35R Mouse mAb | 无载体,ExactAb™,无叠氮钠,已验证,PBS Only,≥95%(SDS-PAGE&SEC-HPLC),1.0 mg/mL | A35R检测、EV识别和传播相关研究 | |
A35R Mouse mAb | 无载体,ExactAb™,无叠氮钠,已验证,PBS Only,≥95%(SDS-PAGE&SEC-HPLC),1.0 mg/mL | A35R抗原检测及不同抗体克隆比较 |
货号 | 名称 | 级别和纯度 | 作用类型 | 主要用途 |
Tecovirimat(mixture of isomers) | ≥98% | 病毒包膜形成抑制剂 | 研究F13L/VP37相关包膜形成、释放和细胞间传播 | |
Tecovirimat | 10 mM in DMSO | 病毒包膜形成抑制剂溶液 | 细胞水平抗病毒药效和剂量反应研究 | |
Brincidofovir | Moligand™ | 病毒DNA复制抑制剂前药 | 病毒DNA复制及结构蛋白表达研究 | |
西多福韦 | ≥98% | 核苷酸类似物 | 病毒DNA聚合酶抑制和复制阻断研究 | |
西多福韦 | 10 mM in Water | 核苷酸类似物溶液 | 细胞实验中的病毒复制抑制研究 | |
CGAS Human Pre-designed siRNA Set A | — | 人cGAS基因干预 | 敲低cGAS并验证病毒DNA识别的依赖性 | |
Cgas Mouse Pre-designed siRNA Set A | — | 小鼠cGAS基因干预 | 小鼠细胞及动物模型相关机制研究 | |
Cgas Rat Pre-designed siRNA Set A | — | 大鼠cGAS基因干预 | 大鼠来源细胞中的DNA感知研究 | |
cGAS-IN-1 | ≥98% | cGAS抑制剂 | 抑制cGAS并评价干扰素产生和宿主反应 | |
cGAS-IN-1 | Moligand™,10 mM in DMSO | cGAS抑制剂溶液 | cGAS抑制的细胞功能评价 | |
cGAS-IN-2 | ≥99% | cGAS抑制剂 | cGAS抑制剂效力和选择性比较 | |
人含Mab21域蛋白1(MB21D1/CGAS)酶联免疫吸附测定试剂盒 | BioReagent | cGAS检测试剂 | 定量检测人样本中的cGAS水平 | |
小鼠含Mab21域蛋白1(MB21D1/CGAS)酶联免疫吸附测定试剂盒 | BioReagent | cGAS检测试剂 | 定量检测小鼠样本中的cGAS水平 | |
cGAMP钠盐,STING激动剂 | ≥99% | STING激动剂 | 模拟cGAS下游信号并激活STING | |
G10,STING信号激活剂 | Moligand™,≥98% | STING信号激活剂 | 研究STING增强对抗病毒反应的影响 | |
G10, STING signaling activator | Moligand™,10 mM in DMSO | STING信号激活剂溶液 | 细胞水平STING激活研究 | |
H 151,STING拮抗剂 | Moligand™,≥98%(HPLC) | STING拮抗剂 | 阻断STING并验证宿主DNA感知通路 | |
MSA 2,非核苷酸STING激动剂 | Moligand™,≥98%(HPLC) | STING激动剂 | 非核苷酸型STING活化和免疫反应研究 | |
STING Agonist C11 | ≥99% | STING激动剂 | STING通路激活及下游信号评价 | |
STING inhibitor C-178 | ≥98% | STING抑制剂 | STING依赖性干扰素反应验证 | |
STING inhibitor C-178 | 10 mM in DMSO | STING抑制剂溶液 | 细胞实验中的STING抑制研究 | |
Recombinant STING Antibody | 重组,ExactAb™,已验证,0.4 mg/mL | STING检测抗体 | 检测STING表达及病毒相关通路变化 | |
STING1 Human Pre-designed siRNA Set A | — | 人STING1基因干预 | 敲低STING并验证通路依赖性 | |
Sting1 Mouse Pre-designed siRNA Set A | — | 小鼠STING1基因干预 | 小鼠来源细胞中的STING功能研究 | |
Sting1 Rat Pre-designed siRNA Set A | — | 大鼠STING1基因干预 | 大鼠来源细胞中的STING功能研究 | |
人干扰素基因刺激蛋白(STING)酶联免疫吸附测定试剂盒 | BioReagent | STING检测试剂 | 定量检测人样本中的STING水平 | |
Recombinant Human TBK1 Protein | ≥90%(SDS-PAGE) | 重组TBK1蛋白 | TBK1结合、激酶及抑制剂研究 | |
Recombinant NAK/TBK1 Antibody | 重组,ExactAb™,已验证,见COA | TBK1检测抗体 | 检测TBK1总蛋白表达 | |
Recombinant TBK1 (phospho S172) Antibody | 重组,ExactAb™,已验证,见COA | 磷酸化TBK1抗体 | 检测TBK1 Ser172位点活化 | |
Recombinant Phospho-NAK/TBK1 (S172) Antibody | 敲低验证 | 磷酸化TBK1抗体 | p-TBK1特异性检测及敲低验证 | |
TBK1 Human Pre-designed siRNA Set A | — | TBK1基因干预 | 敲低TBK1并评价IRF3和干扰素信号 | |
TBK1-IN-1 | ≥98% | TBK1抑制剂 | 验证TBK1在抗病毒信号中的作用 | |
TBK1PROTAC®3i,TANK结合激酶1降解剂 | Moligand™,≥98%(HPLC) | TBK1降解剂 | 通过蛋白降解研究TBK1功能依赖性 | |
TBK1基因敲除HEK293T细胞RIPA裂解液 | — | 基因敲除对照 | TBK1抗体特异性及蛋白检测验证 | |
TBK1基因敲除HEK293T细胞Trizol裂解液 | — | 基因敲除核酸对照 | TBK1转录检测和基因敲除验证 | |
人TANK结合激酶1(TBK1)酶联免疫吸附测定试剂盒 | BioReagent | TBK1检测试剂 | 定量检测人样本中的TBK1 | |
人磷酸化TANK结合激酶1(P-TBK1)酶联免疫吸附测定试剂盒 | BioReagent | p-TBK1检测试剂 | 定量评价TBK1通路活化状态 | |
小鼠TANK结合激酶1(TBK1)酶联免疫吸附测定试剂盒 | BioReagent | 小鼠TBK1检测试剂 | 小鼠模型中的TBK1水平检测 | |
小鼠磷酸化TANK结合激酶1(p-TBK1)酶联免疫吸附测定试剂盒 | BioReagent | 小鼠p-TBK1检测试剂 | 小鼠模型中的TBK1活化评价 |
猴痘病毒通过MV和EV两种感染性粒子完成宿主间传播与组织内扩散。A29L、M1R、H3L、E8L和A35R分别参与病毒附着、进入和包膜病毒传播,是免疫检测、疫苗及抗体研究的重要抗原;病毒DNA复制和包膜形成则为抗病毒药物研究提供了靶点。
更多相关文章,详见下方:
[1] 尼帕病毒(NiV)的致病机理、病毒特性与实验室检测策略
[2] 痘苗病毒 DNA 提取实验
[3] 赤羽病病毒(AKV)的滴定或纯化
[4] 虫媒病毒预防与治疗
[6] 病毒的分离实验
[7] 病毒的滴定实验


 危险品化学品经营许可证(带存储)