
玻色因的皮肤作用机制:从C-木糖苷引物和CS/DS糖链重塑到真表皮连接
玻色因的皮肤作用机制:从C-木糖苷引物和CS/DS糖链重塑到真表皮连接
1 玻色因的来源与化学结构
1.1 玻色因由D-木糖合成
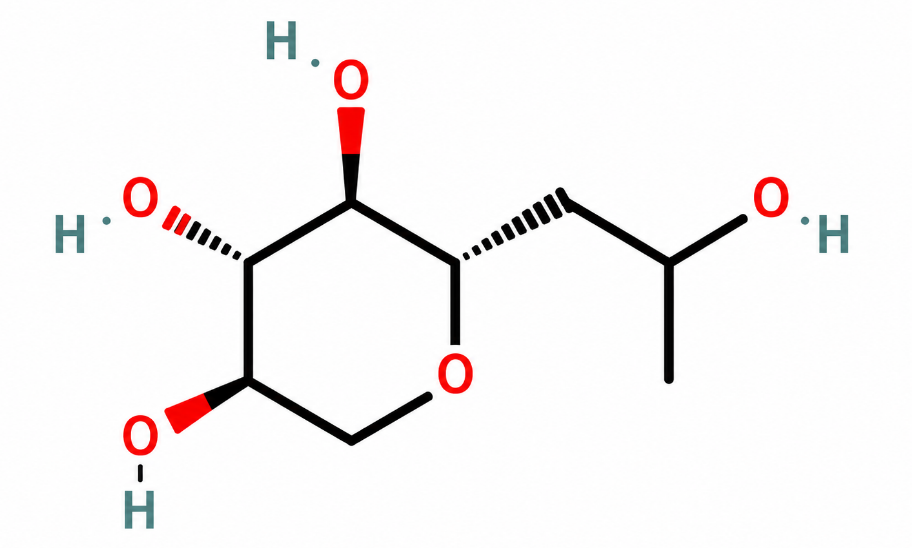
玻色因在研究文献中通常写作C-β-D-xylopyranoside-2-hydroxypropane,也常简称为C-Xyloside。Pro-Xylane™是其商品名或商标名称,羟丙基四氢吡喃三醇则是化妆品成分表中使用的名称。
玻色因的起始原料D-木糖可以由山毛榉等植物木材中的半纤维素获得。木材中的木聚糖经过水解可释放木糖,木糖再通过化学反应转化为玻色因。因此,植物来源描述的是木糖原料的来源,成品玻色因属于经过合成得到的木糖衍生物。[1]
玻色因分子由两部分组成:
①保留D-木糖立体构型的四氢吡喃多羟基环;
②与糖环异头碳直接相连的羟丙基侧链。
糖环与侧链之间通过碳—碳键连接,这是其C-糖苷结构的核心特征。
1.2 玻色因的两步合成
经典合成路线以D-木糖和乙酰丙酮为原料,通过水相C-糖基化和羰基还原两步完成。[1]
反应过程可简化表示为:
第一步:C-糖基化
D-木糖 + 乙酰丙酮
→ 水相、碱性条件下进行Lubineau C-糖基化
→ β-C-木糖苷酮中间体
第二步:羰基还原
β-C-木糖苷酮中间体
→ 侧链羰基还原
→ 羟丙基四氢吡喃三醇
第一步在木糖异头碳与侧链之间建立碳—碳键;第二步将侧链酮基还原为仲醇,形成玻色因的羟丙基结构。侧链羰基还原时会产生新的手性中心,不同还原工艺可以形成不同比例的非对映异构体。[1,2]
1.3 C-糖苷结构提高分子稳定性
普通O-糖苷的糖环异头碳通过氧原子与苷元连接:
O-糖苷:糖环—O—苷元
玻色因则通过碳原子直接连接:
C-糖苷:糖环—C—羟丙基
O-糖苷中的碳—氧糖苷键可能受到相应糖苷酶水解,而玻色因的碳—碳键不属于常见糖苷酶的水解底物。C-糖苷结构由此提高了分子的化学和代谢稳定性,同时保留了β-D-木糖苷作为后续糖基转移反应受体的结构特征。[1,3]
2 木糖连接区与木糖苷引物如何启动糖胺聚糖合成
2.1 糖胺聚糖是皮肤细胞外基质的重要组成
糖胺聚糖(glycosaminoglycan,GAG)是由重复二糖单元构成的线性多糖。皮肤中的主要GAG包括:
①硫酸软骨素(chondroitin sulfate,CS);
②硫酸皮肤素(dermatan sulfate,DS);
③硫酸乙酰肝素(heparan sulfate,HS);
④透明质酸(hyaluronan,HA)。
除HA外,多数皮肤GAG以共价方式连接在核心蛋白上,形成蛋白聚糖(proteoglycan,PG)。
核心蛋白决定蛋白聚糖在组织中的位置,例如分布于细胞表面、基底膜或真皮细胞外基质;GAG侧链则提供水合、空间占据和蛋白结合功能。CS、DS和HS含有羧酸基和硫酸基,在生理条件下带有大量负电荷,可以吸引反离子和水分,并与生长因子、细胞因子及基质蛋白发生相互作用。[3,4]
2.2 蛋白聚糖糖链从木糖连接区开始
蛋白聚糖所携带的硫酸软骨素、硫酸皮肤素和硫酸乙酰肝素糖链,通常从核心蛋白特定丝氨酸残基上的木糖开始合成。
木糖由尿苷二磷酸木糖提供。尿苷二磷酸简称UDP,UDP-木糖是一种活化糖供体,可在木糖基转移酶催化下将木糖转移到核心蛋白上:
核心蛋白—丝氨酸—OH + UDP-木糖
→ 木糖基转移酶催化 →核心蛋白—丝氨酸—O—木糖+UDP
木糖连接后,细胞依次加入两个半乳糖残基和一个葡萄糖醛酸残基,形成共同四糖连接区:
核心蛋白—丝氨酸—木糖—半乳糖—半乳糖—葡萄糖醛酸
在此基础上,糖链可继续延长为硫酸软骨素、硫酸皮肤素或硫酸乙酰肝素。玻色因本身具有稳定的C-木糖苷结构,可以作为外源糖基受体,绕过核心蛋白初始木糖化步骤,启动不与核心蛋白共价连接的硫酸软骨素/硫酸皮肤素糖链合成。
四糖连接区形成后,后续接入的氨基糖决定糖链的合成方向:
①接入N-乙酰半乳糖胺,进入CS/DS合成途径;
②接入N-乙酰葡萄糖胺,进入HS合成途径。[3,4]
CS/DS主链随后继续延长,并经过硫酸化和糖醛酸差向异构化。部分D-葡萄糖醛酸残基转化为L-艾杜糖醛酸残基后,糖链逐渐呈现DS的结构特征。
HA的合成方式不同。它由细胞膜上的透明质酸合酶直接聚合,不连接核心蛋白,也不经过木糖起始的四糖连接区。因此,玻色因作为木糖苷引物所启动的主要是CS/DS类糖链,而不是HA合成途径。
3 玻色因如何成为糖胺聚糖合成引物
3.1 玻色因提供外源性木糖苷受体
正常蛋白聚糖合成需要先将木糖连接到核心蛋白的丝氨酸上。玻色因本身已经具有稳定的β-C-木糖苷结构,其木糖端可以直接接受后续糖单元。
主要过程可表示为:
玻色因〔Xyl—C—羟丙基〕+UDP-半乳糖
→ 半乳糖基转移酶催化
→ Gal—Xyl—C—羟丙基+UDP
连接区随后继续延长:
Xyl—C—羟丙基
→ Gal—Xyl—C—羟丙基
→ Gal—Gal—Xyl—C—羟丙基
→ GlcA—Gal—Gal—Xyl—C—羟丙基
→ CS/DS糖链延长
在这条途径中,玻色因作为糖基受体和糖链引物,不需要与核心蛋白相连。新形成的糖链通常以不与核心蛋白共价连接的形式分泌到细胞外,其还原端仍保留木糖苷引物结构。[3,4]
玻色因并不是完整的糖胺聚糖。后续单糖由细胞内的核苷酸糖供体提供,糖链延长、硫酸化和糖醛酸差向异构化仍由细胞自身的酶系统完成。
3.2 细胞模型验证其引物作用
研究人员使用木糖基转移酶缺陷的CHO-745细胞评价玻色因的作用。该细胞的木糖基转移酶活性不足野生型CHO-K1细胞的5%,难以在核心蛋白上正常完成初始木糖化,但加入玻色因后仍然能够合成并分泌硫酸化GAG。[3]
该结果说明,玻色因可以绕过核心蛋白的初始木糖化步骤,直接为后续糖基转移反应提供受体。
在人正常表皮角质形成细胞中,玻色因处理还显著增加了培养液中的硫酸化GAG,而细胞内部结合型GAG没有出现同等程度的增加。酶解和结构分析显示,分泌增加的糖链主要属于CS/DS,其中DS是重要组成部分。[3]
3.3 玻色因主要启动游离CS/DS链
在三维重建真皮模型中,玻色因处理后培养液中的代谢标记GAG明显增加,新形成的游离糖链被鉴定为CS/DS。研究中未观察到玻色因直接启动游离HS链。[4]
玻色因引物作用的主要特征如下:
作用环节 | 主要表现 |
起始结构 | 稳定的β-C-木糖苷 |
核心蛋白依赖性 | 不依赖核心蛋白初始木糖化 |
主要产物 | 游离CS/DS糖链 |
后续反应 | 由细胞完成链延长、硫酸化和差向异构化 |
HA合成 | 不属于该木糖连接区途径 |
4 玻色因如何重塑糖胺聚糖
玻色因不仅增加游离CS/DS糖链的生成,还会改变糖链长度、硫酸化方式以及艾杜糖醛酸的含量和分布。这些结构参数共同决定糖链的水合能力、空间构象和蛋白结合特征。[4]
4.1 增加糖链数量并改变链长
三维重建真皮研究显示,玻色因处理使培养液中的游离GAG增加约15倍。这一变化发生在特定重建真皮实验条件下,增加的主要是分泌到培养液中的玻色因引发型CS/DS链。[4]
玻色因引发的新生CS/DS平均链长较短。外源木糖苷提供较多起始位点后,糖基转移酶和核苷酸糖供体需要参与更多糖链的延长。新生糖链平均链长缩短,可能与糖链起始数量增加以及合成资源在不同新生链之间的分配有关。
糖链数量增加和平均链长下降会同时影响其扩散速度、水动力体积和蛋白结合特征。
4.2 改变糖链硫酸化方式
CS/DS中的N-乙酰半乳糖胺残基可以在4位或6位羟基上发生O-硫酸化。硫酸基的位置决定糖链局部电荷分布及蛋白识别特征。
玻色因直接启动的游离CS/DS表现出整体O-硫酸化水平升高,主要体现为单硫酸化二糖比例增加、非硫酸化二糖比例下降。[4]
对于仍连接在核心蛋白上的CS/DS,玻色因处理主要改变4-O-硫酸化与6-O-硫酸化的比例:
4-O-硫酸化二糖比例下降
6-O-硫酸化二糖比例上升
这类变化并未明显提高蛋白聚糖相关CS/DS的总电荷,而是重新分配了硫酸基在糖链上的位置。[4]
4.3 改变艾杜糖醛酸分布
CS主链中的部分D-葡萄糖醛酸可以在糖醛酸C5差向异构酶作用下转化为L-艾杜糖醛酸。艾杜糖醛酸具有较高的构象可变性,可以增加糖链局部柔性,并改变糖链与生长因子、细胞因子和基质蛋白的结合方式。
玻色因对艾杜糖醛酸的影响因糖链组分而异。在特定重建真皮实验中,分泌到培养液中的CS/DS,其艾杜糖醛酸比例由约25%增加至约33%,含艾杜糖醛酸二糖沿糖链的分布趋于均匀;组织相关CS/DS中的艾杜糖醛酸比例则由约53%下降至约45%,其沿糖链的分布未出现相同程度的重排。[4]
因此,玻色因引起的糖链结构变化需要分别从分泌型木糖苷引发链和组织相关糖链两个层面理解,包括糖链数量、平均链长、硫酸化位置以及艾杜糖醛酸含量和分布的变化。
5 糖胺聚糖变化如何影响皮肤基质与细胞信号
5.1 维持细胞外基质水合和空间体积
CS/DS含有羧酸基和硫酸基,在生理环境中形成高密度负电荷。负电荷吸引钠离子等反离子,并提高局部渗透吸水倾向,使糖链周围形成水合层。
这一过程可概括为:
带负电荷的CS/DS → 吸引反离子 → 增加局部水分聚集 → 扩大糖链水动力体积 → 维持细胞外间隙和基质黏弹性
真皮细胞外基质并不是由胶原纤维单独构成。胶原主要提供抗拉强度,GAG和PG则形成富含水分的连续基质,并参与胶原纤维间距、基质压缩响应及可溶性分子的扩散。
玻色因引发的CS/DS增加和结构调整,可以影响胶原纤维周围的水合介质与分子环境。该过程发生在细胞外基质的微观尺度,与注射填充材料形成的直接体积支撑不同。
5.2 调节FGF-10依赖的角质形成细胞反应
成纤维细胞生长因子10(fibroblast growth factor 10,FGF-10)参与上皮细胞生长、迁移和组织修复。FGF-10与受体之间的有效结合需要适当的GAG环境。
在人角质形成细胞实验中,玻色因处理促进DS分泌。玻色因与FGF-10共同存在时,角质形成细胞迁移增强;玻色因处理细胞产生的条件培养液,也能够增强FGF-10依赖的细胞增殖。[3]
实验中,玻色因单独作用并未表现出与FGF-10相同的直接促增殖效应。其作用与新生成DS对生长因子反应的调节有关。[3]
5.3 调整生长因子在基质中的结合
GAG通过羧酸基、硫酸基和糖环构象与蛋白质发生相互作用。糖链的硫酸化位置和艾杜糖醛酸分布发生变化后,其蛋白亲和力也会随之改变。
在重建真皮实验中,玻色因处理降低了组织相关CS/DS与肝细胞生长因子(hepatocyte growth factor,HGF)的结合能力,说明糖链精细结构变化能够影响其蛋白亲和力。这一结果可能与4-O-硫酸化下降等结构变化有关。[4]
GAG与生长因子的结合可影响信号分子在细胞外基质中的滞留和可利用性。不过,该研究未直接评价HGF在组织中的扩散或受体信号变化,因此,玻色因是否通过降低结合而促进HGF扩散,目前仍属于机制假设。
6 玻色因如何影响蛋白聚糖与真表皮连接
6.1 调整蛋白聚糖相关糖链
玻色因直接启动的主要是游离CS/DS链,但其作用也涉及细胞原有蛋白聚糖所携带的GAG。
重建真皮研究显示,玻色因处理改变了蛋白聚糖相关CS/DS的4-O/6-O硫酸化比例,同时降低了蛋白聚糖相关HS部分区域的O-硫酸化,变化主要涉及6-O硫酸化。[4]
在糖皮质激素诱导的萎缩性人皮肤模型中,玻色因处理还与多配体蛋白聚糖-1、多配体蛋白聚糖-4和基底膜蛋白聚糖表达恢复有关。[5,8]
蛋白聚糖的功能由核心蛋白和GAG侧链共同决定:
①核心蛋白决定分子所在位置;
②GAG侧链提供水合和蛋白结合能力;
③糖链长度、硫酸化方式和糖醛酸组成调节具体生物学功能。
6.2 支持真表皮连接相关结构形成
真表皮连接(dermal-epidermal junction,DEJ)位于表皮与真皮之间,主要包括:
①层粘连蛋白-332;
②Ⅳ型胶原基底膜网络;
③Ⅶ型胶原锚定纤维;
④基底膜蛋白聚糖;
⑤巢蛋白及细胞黏附受体。
DEJ既承担表皮与真皮之间的机械连接,也参与细胞极性、营养交换和信号传递。
在人三维重建皮肤模型中,玻色因处理增加了Ⅳ型胶原、Ⅶ型胶原和层粘连蛋白-5的沉积,并提高了Ⅶ型胶原基因表达。层粘连蛋白-5是早期名称,目前通常称为层粘连蛋白-332。[6]
糖胺聚糖、蛋白聚糖和基底膜蛋白之间存在相互调节。综合现有研究,玻色因对DEJ的作用可能涉及以下路径:
GAG合成与精细结构调整 → 蛋白聚糖功能和细胞间信号环境变化 → 可能支持基底膜与锚定结构相关蛋白的形成和沉积
6.3 人体组织学研究
一项随机、安慰剂对照的先导研究纳入5名60~75岁的绝经后女性。受试者在两个前臂分别使用安慰剂乳霜和含10% C-Xyloside的乳霜,每日两次,连续3个月。[7]
皮肤活检结果显示,玻色因处理区域的基底膜致密层较为均匀和规则,基底膜重复区域减少;α6整合素和层粘连蛋白-332表达也有所增加。[7]
该研究提供了人体组织学证据,但样本量较小,研究使用浓度、应用部位和具体配方均会影响结果。商业护肤品的实际表现还受到有效物含量、原料异构体组成、配方递送和连续使用时间等因素影响。
7 机制总结与证据边界
7.1 核心作用机制
玻色因是一种稳定的C-木糖苷。其木糖基可以作为外源糖基受体,绕过核心蛋白初始木糖化步骤,启动不与核心蛋白共价连接的硫酸软骨素/硫酸皮肤素糖链合成。
综合现有细胞、重建真皮和重建皮肤研究,其主要作用可概括为:
稳定C-木糖苷
→ 作为外源木糖苷引物
→ 不依赖核心蛋白的CS/DS糖链合成增加
→ 糖链长度、硫酸化方式及艾杜糖醛酸组成发生变化
→ 细胞外基质水合环境和蛋白结合特征改变
→ 蛋白聚糖及真表皮连接相关结构受到影响
玻色因并不是糖胺聚糖或胶原蛋白的直接补充物,也不会直接转化为胶原蛋白。其作用重点在于参与糖胺聚糖合成起始,并调整细胞自身形成的糖链及其相关基质环境。
7.2 主要研究证据与结论范围
研究模型 | 主要观察结果 | 可以支持的结论 |
木糖基转移酶缺陷细胞 | 加入玻色因后仍可合成并分泌硫酸化GAG | 玻色因可绕过核心蛋白初始木糖化,作为外源木糖苷引物 |
人角质形成细胞 | 培养液中硫酸化GAG及CS/DS分泌增加 | 玻色因可启动不与核心蛋白连接的CS/DS糖链合成 |
FGF-10相关实验 | 角质形成细胞迁移和FGF-10依赖的增殖反应增强 | 新生DS可能参与调节特定生长因子反应 |
三维重建真皮 | 分泌型GAG增加,链长、硫酸化及艾杜糖醛酸组成发生变化 | 玻色因不仅增加糖链起始,还可改变GAG精细结构 |
HGF结合实验 | 组织相关CS/DS与HGF的体外结合能力降低 | 糖链结构变化可改变其蛋白亲和力,但其体内功能后果尚未明确 |
三维重建皮肤 | Ⅳ型胶原、Ⅶ型胶原和层粘连蛋白-332相关沉积增加 | 玻色因处理与DEJ相关结构形成增加有关 |
人体先导研究 | 基底膜致密层形态及部分连接标志物有所改善 | 提供小样本人体组织学初步支持 |
现有研究能够支持玻色因参与CS/DS合成、GAG精细结构调节、蛋白聚糖变化及DEJ相关结构形成,但尚不能证明上述环节之间均存在单一、连续的因果关系。部分核心证据来自细胞和重建皮肤模型,人体研究样本量较小,且主要评价组织学和超微结构指标。
因此,玻色因相关的基质和DEJ变化可能与皮肤饱满、平滑或紧实外观改善有关,但具体外观效果仍取决于原料有效含量、立体异构体组成、配方递送、使用部位和持续使用时间,不宜仅依据体外GAG变化直接推定。
8 玻色因合成与糖胺聚糖机制研究相关化学品
表1 玻色因核心原料、关键中间体与合成试剂
分类 | Cas编号 | 阿拉丁货号 | 名称 | 规格或纯度 | 产品特色与应用 |
C-糖基化反应碱 | 144-55-8 | 碳酸氢钠 | 无水级, 试剂级, 高级纯, ≥99.5% | 用于D-木糖与乙酰丙酮水相C-糖基化反应、体系酸碱度调节及反应条件比较。 | |
C-糖基化侧链试剂 | 123-54-6 | 乙酰丙酮 | AR, ≥99% | 用于玻色因羟丙基侧链碳骨架构建、C-糖基化反应及关键酮中间体制备。 | |
羰基还原试剂 | 16940-66-2 | 硼氢化钠(易制爆) | purum p.a., ≥96% | 用于玻色因酮中间体侧链羰基还原、羟丙基结构形成及非对映异构体组成研究。 | |
核心糖原料 | 58-86-6 | D-木糖 | Moligand™, ≥99% | 玻色因木糖样环的起始原料;用于C-木糖苷构建、糖链引物结构及糖胺聚糖起始机制研究。 | |
关键酮中间体 | 439685-73-1 | 2-[2-oxopropyl]tetrahydro-2H-pyran-3,4,5-triol | ≥95% | 用于玻色因羰基还原步骤、酮中间体结构鉴定、还原立体选择性及工艺杂质研究。 | |
玻色因水溶液原料 | 439685-79-7 | 玻色因 | 28%-33% in water | 用于玻色因配方研究、皮肤细胞与重建皮肤模型、糖胺聚糖合成及真表皮连接相关评价。 | |
单一立体构型玻色因 | 868156-46-1 | (S)-Pro-xylane | ≥98% | 用于玻色因侧链立体构型、糖胺聚糖引物活性、细胞反应及结构—活性关系研究。 | |
高纯度玻色因原料 | 439685-79-7 | 玻色因 | ≥90% | 用于玻色因结构鉴定、纯度分析、含量测定、生物活性评价及分析方法建立。 |
表2 糖胺聚糖连接区单糖与活化糖供体
分类 | Cas编号 | 阿拉丁货号 | 名称 | 规格或纯度 | 产品特色与应用 |
四糖连接区单糖对照 | 59-23-4 | D(+)半乳糖 | 高级纯, ≥99% | 用于木糖后续半乳糖连接、蛋白聚糖四糖连接区组成、半乳糖基转移反应及单糖分析。 | |
糖醛酸结构对照 | 6556-12-3 | D-葡萄糖醛酸 | Moligand™, ≥98% | 用于糖胺聚糖连接区、硫酸软骨素、硫酸皮肤素、硫酸乙酰肝素及透明质酸结构研究。 | |
硫酸皮肤素特征糖醛酸 | 2073-35-0 | L-艾杜糖醛酸 | ≥98% | 用于硫酸皮肤素特征结构、葡萄糖醛酸差向异构化、糖链柔性及艾杜糖醛酸分布研究。 | |
硫酸软骨素/硫酸皮肤素氨基糖 | 1811-31-0 | N-乙酰-D-半乳糖胺 | ≥98% | 用于硫酸软骨素和硫酸皮肤素重复二糖组成、糖链延长、硫酸化及单糖定性定量研究。 | |
硫酸乙酰肝素与透明质酸氨基糖 | 7512-17-6 | N-乙酰-D-葡萄糖胺 | ≥98% | 用于硫酸乙酰肝素和透明质酸组成分析、糖胺聚糖类型比较及氨基糖检测。 | |
硫酸软骨素/硫酸皮肤素链延长供体 | 108320-87-2 | UDP-N-乙酰基-D-半乳糖胺二钠盐 | ≥98% | 用于硫酸软骨素和硫酸皮肤素糖基转移酶反应、链起始选择及糖链延长机制研究。 | |
蛋白聚糖木糖化供体 | 108320-89-4 | Uridine 5'-(二磷酸三氢),P'-α-D-吡喃木糖酯二钠盐 | ≥98% | 用于木糖基转移酶活性、核心蛋白丝氨酸木糖化及正常蛋白聚糖起始路径研究。 | |
硫酸乙酰肝素链延长供体 | 91183-98-1 | 尿苷-5′-二磷酸-N-乙酰基-葡糖胺钠盐 | ≥98% | 用于硫酸乙酰肝素糖链起始、链延长、糖基转移酶活性及不同糖胺聚糖路径比较。 | |
葡萄糖醛酸活化供体 | 63700-19-6 | 尿苷二磷酸葡萄糖醛酸三钠 (UDPGA) | ≥98% | 用于四糖连接区构建、硫酸软骨素/硫酸皮肤素链延长及糖醛酸转移酶反应研究。 | |
连接区半乳糖活化供体 | 137868-52-1 | UDP-半乳糖 二钠盐 | ≥95% | 用于玻色因木糖端和核心蛋白木糖残基的半乳糖基化、四糖连接区形成及引物活性评价。 |
表3 糖胺聚糖与细胞外基质结构对照材料
分类 | Cas编号 | 阿拉丁货号 | 名称 | 规格或纯度 | 产品特色与应用 |
非木糖连接区糖胺聚糖对照 | 9067-32-7 | 酶切寡聚透明质酸钠 | 分子量 <10KDa | 用于透明质酸寡聚体、分子量效应、水合性质及其与硫酸化糖胺聚糖合成途径的比较研究。 | |
4-O-硫酸化糖链对照 | 39455-18-0 | 硫酸软骨素A 钠盐 | ≥95% | 用于硫酸软骨素4-O-硫酸化结构、软骨素酶降解、二糖组成及蛋白结合性质研究。 | |
硫酸乙酰肝素糖链对照 | 57459-72-0 | 硫酸乙酰肝素钠 | ≥98%, 效价:50-70 IU/mg | 用于蛋白聚糖相关硫酸乙酰肝素结构、硫酸化、肝素酶降解及生长因子结合研究。 | |
硫酸皮肤素糖链对照 | 54328-33-5 | 低分子硫酸皮肤素 | ≥95%(HPLC), 分子量:8,000-13,000 | 用于艾杜糖醛酸相关结构、低分子糖链、软骨素酶B降解及硫酸皮肤素生物学功能研究。 | |
通用硫酸软骨素对照 | 9082-07-9 | 软骨素硫酸钠盐 | ≥95% | 用于硫酸软骨素总体组成、分子量、硫酸化程度、酶解产物及糖链结构分析。 | |
6-O-硫酸化糖链对照 | 12678-07-8 | 硫酸软骨素C钠盐 | ≥90%, mixture of isomers,From sharks | 用于硫酸软骨素6-O-硫酸化结构、来源差异、软骨素酶降解及4-O/6-O硫酸化比例比较。 |
表4 糖胺聚糖降解酶与软骨素二糖结构分析试剂
分类 | Cas编号 | 阿拉丁货号 | 名称 | 规格或纯度 | 产品特色与应用 |
硫酸软骨素/硫酸皮肤素广谱降解酶 | 9024-13-9 | 软骨素酶ABC II | 生物活性, 重组, ActiBioPure™, 高性能, EnzymoPure™, expressed in E.coli;≥1000 U/mg enzyme powder; ≥2000 U/mg protein | 用于硫酸软骨素和硫酸皮肤素糖链解聚、糖链类型鉴定、二糖组成分析及玻色因引发型CS/DS糖链研究。 | |
硫酸软骨素选择性降解酶 | 9047-57-8 | 软骨素酶AC | 生物活性, 重组, ActiBioPure™, 高性能, EnzymoPure™, ≥95%(SDS-PAGE), ≥100 U/mg enzyme powder; ≥200 U/mg protein | 用于含葡萄糖醛酸的硫酸软骨素区域降解、硫酸软骨素与硫酸皮肤素区分及糖链组成验证。 | |
硫酸皮肤素选择性降解酶 | 52227-83-5 | 重组软骨素酶B | 生物活性, 重组, ActiBioPure™, 高性能, EnzymoPure™, ≥95%(SDS-PAGE), ≥100 U/mg enzyme powder; ≥200 U/mg protein | 用于含艾杜糖醛酸的硫酸皮肤素区域降解、硫酸皮肤素鉴定及艾杜糖醛酸相关链段研究。 | |
硫酸乙酰肝素选择性降解酶 | 37290-86-1 | 肝素酶 III | 生物活性, 重组, ActiBioPure™, 高性能, EnzymoPure™, ≥90%(SDS-PAGE), ≥3000 U/mL for 50U; ≥300 U/mL for 5U and 10U;expressed in E.coli | 用于硫酸乙酰肝素选择性解聚、蛋白聚糖相关糖链分析及其与硫酸软骨素/硫酸皮肤素的区分。 | |
荧光标记6-O-硫酸化软骨素二糖分析试剂 | 136132-72-4 | 荧光标记软骨素二糖 Δdi-6S 钠盐(α-ΔUA-[1→3]-GalNAc-6S) | ≥95% | 用于软骨素酶解产物中6-O-硫酸化二糖的峰位识别、荧光检测方法建立及二糖组成分析。 | |
4-O-硫酸化软骨素二糖分析试剂 | 136144-56-4 | 软骨素二糖 Δdi-4S 钠盐 | ≥95% | 用于4-O-硫酸化二糖的结构鉴定、色谱峰确认及玻色因处理前后4-O/6-O硫酸化组成比较。 | |
非硫酸化软骨素二糖分析试剂 | 136132-69-9 | 软骨素二糖 Δdi-0S 钠盐 | ≥95% | 用于非硫酸化软骨素二糖的结构鉴定、色谱峰确认、糖链硫酸化程度评价及二糖组成比较。 |
注:以上为阿拉丁代表性科研产品,更多产品规格、级别、COA信息可用“品名/CAS/货号”在阿拉丁官网检索。
参考文献
[1] Cavezza A, Boulle C, Guéguiniat A, Pichaud P, Trouille S, Ricard L, Dalko-Csiba M. Synthesis of Pro-Xylane™: A New Biologically Active C-Glycoside in Aqueous Media. Bioorganic & Medicinal Chemistry Letters. 2009;19(3):845-849. doi:10.1016/j.bmcl.2008.12.037.
[2] Zhao Y, Li Y, Shang J, et al. Engineering a Carbonyl Reductase for High-Efficiency Synthesis of Optically Pure (S)-Pro-Xylane: An Alternative Synthetic Route. Journal of Agricultural and Food Chemistry. 2025;73(16):9759-9768. doi:10.1021/acs.jafc.5c00811.
[3] Muto J, Naidu NN, Yamasaki K, Pineau N, Breton L, Gallo RL. Exogenous Addition of a C-Xylopyranoside Derivative Stimulates Keratinocyte Dermatan Sulfate Synthesis and Promotes Migration. PLoS ONE. 2011;6(10):e25480. doi:10.1371/journal.pone.0025480.
[4] Vassal-Stermann E, Duranton A, Black AF, Azadiguian G, Demaude J, Lortat-Jacob H, Breton L, Vivès RR. A New C-Xyloside Induces Modifications of GAG Expression, Structure and Functional Properties. PLoS ONE. 2012;7(10):e47933. doi:10.1371/journal.pone.0047933.
[5] Pineau N, Carrino DA, Caplan AI, Breton L. Biological Evaluation of a New C-Xylopyranoside Derivative (C-Xyloside) and Its Role in Glycosaminoglycan Biosynthesis. European Journal of Dermatology. 2011;21(3):359-370. doi:10.1684/ejd.2011.1340.
[6] Sok J, Pineau N, Dalko-Csiba M, Breton L, Bernerd F. Improvement of the Dermal Epidermal Junction in Human Reconstructed Skin by a New C-Xylopyranoside Derivative. European Journal of Dermatology. 2008;18(3):297-302. doi:10.1684/ejd.2008.0392.
[7] Deloche C, Minondo AM, Bernard BA, Bernerd F, Salas F, Garnier J, Tancrède E. Effect of C-Xyloside on Morphogenesis of the Dermal Epidermal Junction in Aged Female Skin: An Ultrastructural Pilot Study. European Journal of Dermatology. 2011;21(2):191-196. doi:10.1684/ejd.2010.1225.
[8] Pineau N, Bernerd F, Cavezza A, Dalko-Csiba M, Breton L. A New C-Xylopyranoside Derivative Induces Skin Expression of Glycosaminoglycans and Heparan Sulphate Proteoglycans. European Journal of Dermatology. 2008;18(1):36-40. doi:10.1684/ejd.2008.0308.
更多相关文章,详见下方:
海藻糖(Trehalose)的性质特征、制备工艺与应用技术指南
细胞培养包被体系中玻连蛋白、层粘连蛋白与纤连蛋白的适用性比较
谷胱甘肽(GSH)含量检测:方法体系、实验流程与质量控制要点
谷胱甘肽还原酶:维持GSH/GSSG稳态的黄素依赖还原体系及其检测与应用


 危险品化学品经营许可证(带存储)