
番泻苷与金丝桃素的结构—性质关系:双蒽酮连接、氧化成环与萘并二蒽酮共轭
番泻苷与金丝桃素的结构—性质关系:双蒽酮连接、氧化成环与萘并二蒽酮共轭
1 双蒽核类化合物的结构范围
1.1 双蒽核类的基本概念
天然药物化学传统分类通常将蒽类衍生物分为单蒽核类和双蒽核类。双蒽核类包括二蒽酮类、二蒽醌类、去氢二蒽酮类、日照蒽酮类以及高度稠合的萘并二蒽酮类等结构类型[1]。
“双蒽核”中的“蒽核”指蒽系母核单元,并不限定为两个完整的9,10-蒽醌分子。例如,二蒽酮由两个蒽酮单元连接形成;金丝桃素虽然具有双蒽核来源,其骨架已经进一步成环并形成萘并二蒽酮结构。
不同资料中还可见“中位萘并二蒽酮”“中位萘骈二蒽酮”等译名。金丝桃素在现代英文文献中通常归为萘并二蒽酮(naphthodianthrone)类天然产物[5,10]。
1.2 双蒽核结构主要由三个因素决定
双蒽核类虽然包含多个结构亚型,其性质差异主要与三个结构因素有关。
结构因素 | 结构变化 | 主要影响 |
连接位置和连接数目 | 两个蒽系单元由一根或多根C—C键连接 | 立体构型、构象自由度、骨架刚性 |
氧化和脱氢状态 | 蒽酮/蒽醌氧化态以及中央连接区域不饱和度发生变化 | 羰基状态、氧化还原性质、电子分布 |
成环和稠合程度 | 两个单元之间形成新的跨环C—C键 | π电子离域、光谱和激发态性质 |
这三类变化并不是彼此独立的。新的碳—碳键会限制分子的构象,氧化和脱氢会重新分配π电子,进一步成环则可能把两个局部芳香体系连接成更大的共轭体系。
2 二蒽酮:一根C—C键带来的结构变化
2.1 番泻苷A和B的差异来自立体化学
二蒽酮(dianthrone)由两个蒽酮单元连接形成。番泻苷A和番泻苷B属于典型的大黄酸二蒽酮二糖苷,两个蒽酮部分通过C10—C10′碳—碳键相连。
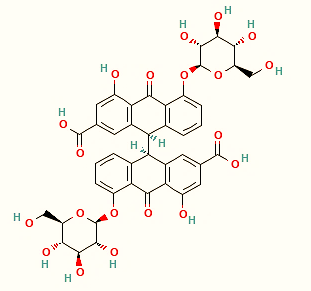
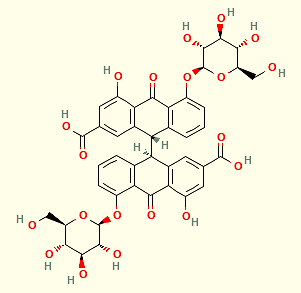
这一连接使C10和C10′形成与立体化学有关的位置。番泻苷A与番泻苷B具有相同的基本组成,但C10/C10′相对构型不同,二者属于非对映异构体。相应番泻苷元中,A型通常对应10R,10′R构型,B型为内消旋的10R,10′S构型[2]。
这种结构说明,二聚并不只是增加分子量。两个蒽酮形成C—C键后,分子同时获得新的立体构型和构象特征。
与高度稠合的萘并二蒽酮相比,二蒽酮的两个芳香部分仍主要依靠中央C—C键连接,彼此保留较大的构象自由度。番泻苷元的理论研究还显示,C10—C10′连接键的性质与单体蒽酮之间的普通C—C键存在明显差别,这与二蒽酮体系能够进一步发生还原裂解和代谢转化相符[2]。
2.2 番泻苷的活性形成依赖肠道代谢
番泻苷A和B带有两个葡萄糖残基,在上消化道不易被人体消化酶水解,也不易吸收,较大比例能够到达大肠[3,4]。
进入结肠后,肠道微生物的β-葡萄糖苷酶和还原酶共同参与其转化。现有研究支持至少两类反应顺序:一类先脱糖基形成番泻苷元,再发生C10–C10′键还原裂解;另一类先还原裂解番泻苷,形成8-葡糖基大黄酸蒽酮,再经水解生成大黄酸蒽酮。两类路径均可汇聚到具有泻下活性的大黄酸蒽酮[3,12]。
2025年,Xu等利用光亲和探针从假链状双歧杆菌(Bifidobacterium pseudocatenulatum)中鉴定出NfrA类番泻苷A还原酶。纯化的重组NfrA在黄素单核苷酸(FMN)和NADPH参与下能够催化番泻苷A还原。实验检测到8-葡糖基大黄酸蒽酮及其易氧化产物大黄酸-8-O-β-D-葡萄糖苷,支持番泻苷A可先发生C10–C10′键还原裂解、再脱糖基的代谢路径[12]
大黄酸蒽酮作用于结肠,可影响结肠运动以及水和电解质转运。番泻苷的药效形成因此与原型化合物在肠道中的结构转化直接相关,而不是由未转化的番泻苷在上消化道大量吸收后产生[3]。
这一过程反映出二蒽酮结构的一类重要性质:中央二聚结构仍具有较高的化学和生物转化可能性。
3 氧化和脱氢改变双蒽核的电子状态
3.1 二蒽醌:两个蒽系单元处于较高氧化态
二蒽醌由两个蒽醌单元通过碳—碳键连接构成。与二蒽酮相比,其两个单元整体处于较高氧化态;但二者并不必然是保留同一连接位置的直接氧化对应物。
天精(skyrin)是天然二蒽醌的代表之一。近年的金丝桃属植物代谢研究使这一化合物受到较多关注。研究者在多种金丝桃属植物中检测到天精及其相关糖苷,并观察到其与金丝桃素及相关代谢物之间的分布关联。基质辅助激光解吸电离高分辨质谱成像(matrix-assisted laser desorption/ionization high-resolution mass spectrometry imaging,MALDI-HRMS imaging)还显示,天精与部分金丝桃素相关代谢物可在特定组织中呈现空间共定位[6]。
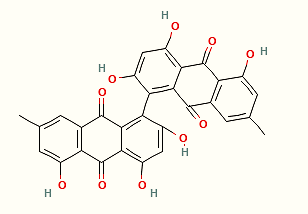
这些结果使天精成为研究金丝桃素生物合成的重要候选中间体。不过,空间共定位和代谢相关性本身不能确定完整的前体—产物关系。现有综述仍将金丝桃素在植物中的后续生物合成步骤列为尚待进一步解析的问题[5]。
3.2 去氢二蒽酮:中央连接区域的不饱和度升高
二蒽酮进一步脱氢可形成去氢二蒽酮(dehydrodianthrone)型结构。
相对于二蒽酮,去氢过程提高了中央连接区域的不饱和度,使两个蒽系单元之间的π电子相互作用发生改变。其影响不局限于分子式中减少两个氢原子,还涉及键级、构象以及电子分布的重新调整。
氧化或脱氢产生的影响可以区分为两个层面:
①氧化状态变化改变羰基及相关氧化还原性质;
②不饱和度变化改变两个蒽系部分之间的电子耦合。
具体共轭程度仍取决于连接位置、分子扭转角和取代基,不能简单以氧化程度高低直接判断共轭强弱。
4 进一步成环:日照蒽酮与萘并二蒽酮
4.1 新增跨环C—C键限制分子构象
当两个蒽系单元之间形成新的跨环C—C键时,分子的连接方式发生明显改变。
日照蒽酮(helianthrone)类正体现了这种结构特征。与主要通过中央连接形成的二蒽酮相比,日照蒽酮骨架中增加了跨越两个芳香部分的共价连接,使原来具有较大相对运动空间的两个单元被进一步固定。
这种变化首先影响的是构象自由度和骨架刚性。新的环系形成后,芳香环之间能够采用的相对取向减少,同时改变π轨道之间的空间关系。
原金丝桃素(protohypericin)属于取代的日照蒽酮型化合物,是研究这一结构变化的重要实例。已有化学合成研究证明,原金丝桃素能够在可见光照射下发生进一步成环,生成金丝桃素[7]。
4.2 原金丝桃素的光环化形成金丝桃素
原金丝桃素与金丝桃素之间存在明确的光化学转化关系:
原金丝桃素 ──hν(可见光)──→ 金丝桃素
其中,hν表示光子能量。
2018年的合成研究以大黄素蒽酮为原料制得原金丝桃素,再使用峰值约575 nm的单色可见光照射,使原金丝桃素高效光环化为金丝桃素[7]。
这一步增加了新的跨环连接,使分子形成更加完整的萘并二蒽酮多环体系。两个蒽系来源单元至此已经被多个共价键固定,不再具有二蒽酮中较明显的独立构象特征。
需要区分的是,原金丝桃素光环化为金丝桃素属于实验和天然体系中具有证据支持的具体转化,而“二蒽酮→二蒽醌→去氢二蒽酮→日照蒽酮→萘并二蒽酮”并不是已经证实的统一植物生物合成顺序。金丝桃素在植物体内的确切前体和相关酶体系仍在研究中[5,6]。
5 金丝桃素为何具有显著的光化学性质
5.1 高度共轭改变电子能级结构
金丝桃素(hypericin)属于萘并二蒽酮类天然色素,分子式为C₃₀H₁₆O₈。其结构包含高度稠合的多环醌体系和多个酚羟基。
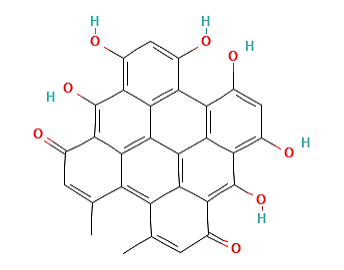
与番泻苷的二蒽酮结构相比,金丝桃素具有更大的连续π电子体系和明显增加的骨架刚性。较大范围的π电子离域改变了分子的电子能级,使其在可见光区产生强吸收。金丝桃素在不同溶剂和聚集状态下的吸收位置会有所变化,常见的长波吸收位于约590 nm附近[10]。
金丝桃素也并非完全平面的刚性分子。分子边缘区域存在空间拥挤,可形成一定程度的扭曲构象;同时,酚羟基、羰基之间的质子转移以及分子聚集状态都会影响其光谱和激发态行为[8]。
金丝桃素的光学性质来自稠合多环骨架、扩展π共轭、醌式电子结构及羟基/羰基体系的共同作用。
5.2 光激发后形成三线态并参与活性氧生成
金丝桃素吸收适宜波长的光后,由基态进入单线态激发态,部分激发态分子随后通过系间窜越(intersystem crossing,ISC)进入寿命较长的三线态。
过程可简化表示为:
Hyp + hν → ¹Hyp* → ³Hyp*
其中Hyp表示金丝桃素,¹Hyp*和³Hyp*分别表示单线态和三线态激发金丝桃素。
三线态金丝桃素可以进一步通过两类光敏化途径参与反应。
5.2.1 Ⅰ型光敏反应
激发态金丝桃素与周围底物发生电子转移或氢转移,形成自由基或自由基离子,随后可与氧继续反应,生成超氧阴离子自由基等活性氧物种。
5.2.2 Ⅱ型光敏反应
三线态金丝桃素向基态三线态氧传递能量,使氧转化为单线态氧:
³Hyp* + ³O₂ → Hyp + ¹O₂
电子顺磁共振及自旋捕获研究检测到与半醌自由基、单线态氧和超氧阴离子自由基形成相符的信号[9]。现代光物理研究也支持金丝桃素三线态形成及其参与单线态氧生成的过程[8]。
Ⅰ型和Ⅱ型反应的相对贡献会随溶剂、氧浓度、底物环境、光照条件、金丝桃素浓度以及聚集状态改变。
这些性质构成了金丝桃素用于光动力治疗(photodynamic therapy,PDT)研究的化学基础[10]。
6 番泻苷与金丝桃素的结构—性质差异
番泻苷和金丝桃素分别代表双蒽核结构的两种不同状态。
比较项目 | 番泻苷A、B | 金丝桃素 |
结构类别 | 二蒽酮二糖苷 | 萘并二蒽酮 |
蒽系单元之间的连接 | 以C10—C10′连接为核心 | 多个C—C键构成稠合环系 |
构象特点 | 保留较大的相对构象自由度 | 骨架刚性明显增加 |
电子结构 | 两个蒽系部分仍保持较强的局部结构特征 | 形成更大范围的连续π共轭体系 |
关键结构反应 | 糖苷水解、还原和二聚体系转化 | 光激发、电子转移和能量转移 |
主要外部影响因素 | 肠道微生物酶系 | 光、氧、溶剂和聚集状态 |
典型活性过程 | 生成大黄酸蒽酮后产生泻下效应 | 光敏化并形成活性氧 |
代表研究方向 | 肠道菌群与天然产物代谢 | 光物理、光化学和光动力研究 |
两类化合物的差异体现了双蒽核结构变化的核心规律:
二蒽酮保留较明显的可转化二聚结构;萘并二蒽酮则通过进一步成环和π电子离域形成具有特殊光物理性质的共轭体系。
番泻苷保留可经肠道微生物转化的二蒽酮糖苷结构;金丝桃素则以刚性稠合骨架和扩展π共轭为基础,表现出可见光吸收、三线态形成及活性氧生成等光敏化性质。
7 双蒽核天然产物中的可验证科研问题
7.1 如何证明候选生物合成中间体,而不仅是发现代谢相关性
天精与金丝桃素在金丝桃属植物中表现出含量相关性和组织共定位,但这些证据还不足以建立确定的前体—产物关系。
进一步验证可结合:
①稳定同位素示踪:检测标记前体中的碳是否进入金丝桃素骨架;
②候选酶功能验证:重组表达相关氧化酶或偶联酶,观察能否催化预测的成键步骤;
③体外酶级联重构:逐步验证二聚、氧化和成环过程;
④基因功能扰动与代谢组联用:比较候选基因表达变化与中间体积累之间的关系。
这类研究能够把“共定位和相关性”进一步推进到具体化学转化的因果证据。
7.2 番泻苷代谢差异能否追溯到具体肠道菌和还原酶
番泻苷的药效形成依赖肠道微生物参与C10—C10′键还原裂解及后续代谢,因此不同菌群组成可能影响活性代谢物的生成效率。
值得进一步研究的变量包括:
①不同肠道菌株对番泻苷A、B的还原能力;
②NfrA类还原酶的底物选择性和动力学差异;
③菌群组成与大黄酸蒽酮生成速率之间的关系;
④抗生素、饮食或其他药物改变菌群后,对番泻苷代谢的影响。
这一方向把双蒽核的特定化学键反应性与肠道菌群功能联系起来,可用于解释不同个体之间的天然药物代谢差异。
7.3 光敏前体如何影响天然产物的定量结果
原金丝桃素可在光照下转化为金丝桃素,原伪金丝桃素也存在相应光转化,因此样品处理条件会直接影响测得的组分比例[11]。
分析方法中应重点控制:
①采样和提取过程的光照条件;
②储存时间和温度;
③自动进样器中的暴露时间;
④不同光照剂量下原型物与产物的质量平衡。
可采用避光样品与受控光照样品平行分析,同时测定原金丝桃素、金丝桃素、原伪金丝桃素和伪金丝桃素,以判断观察到的成分变化来自植物本身还是样品处理过程。
8 番泻苷—金丝桃素双蒽核结构、代谢转化与共轭性质研究相关代表化学品分类表
表1 二蒽酮糖苷及其脱糖基苷元
分类 | Cas编号 | 阿拉丁货号 | 名称 | 规格或纯度 | 产品特色与应用 |
大黄酸蒽酮同二聚型二葡萄糖苷A型 | 81-27-6 | 番泻叶苷A | 分析标准品, ≥96% | 用于番泻苷A/B立体构型、二蒽酮碳—碳连接及肠道菌群脱糖基化和还原转化研究,也用于番泻叶与大黄相关样品的成分分析。 | |
大黄酸蒽酮同二聚型二葡萄糖苷B型 | 128-57-4 | 番泻苷B | 分析标准品, ≥97%(HPLC) | 用于与番泻叶苷A比较二蒽酮连接键构型、色谱行为和肠道代谢差异,并用于大黄酸蒽酮生成过程研究。 | |
大黄酸蒽酮—芦荟大黄素蒽酮异二聚型二葡萄糖苷C型 | 37271-16-2 | 番泻苷C | ≥98% | 用于异二蒽酮结构、糖基化及肠道代谢研究,并用于大黄酸蒽酮与芦荟大黄素蒽酮相关作用评价。 | |
大黄酸蒽酮—芦荟大黄素蒽酮异二聚型二葡萄糖苷D型 | 37271-17-3 | 番泻苷D | Moligand™, ≥98% | 用于与番泻苷C比较异二蒽酮立体构型、色谱行为和代谢转化,并用于番泻叶与大黄中二蒽酮糖苷的成分分析。 | |
番泻苷A脱糖基二蒽酮苷元 | 641-12-3 | 番泻苷元A | Moligand™, ≥98% | 用于研究番泻苷A脱糖基化、番泻苷元A/B的立体化学差异及进一步还原生成大黄酸蒽酮的过程。 | |
番泻苷B脱糖基二蒽酮苷元 | 517-44-2 | 番泻苷元B | Moligand™, ≥98% | 用于研究番泻苷B脱糖基化、二蒽酮苷元立体化学及其向大黄酸蒽酮转化的肠道代谢过程。 |
表2 单蒽核代谢物与蒽酮—蒽醌氧化态对照物
分类 | Cas编号 | 阿拉丁货号 | 名称 | 规格或纯度 | 产品特色与应用 |
大黄酸蒽酮型肠道活性代谢物 | 480-09-1 | Rhein-9-anthrone | ≥95% | 用于番泻苷经肠道菌群转化后的活性代谢物研究,并用于蒽酮—蒽醌氧化还原、结肠推进和水分转运评价。 | |
大黄酸蒽醌型氧化态对照物 | 478-43-3 | 大黄酸 | Moligand™, ≥98% | 用于与大黄酸蒽酮构建蒽醌—蒽酮氧化态对照,研究番泻苷代谢物的氧化转化及大黄酸类成分分析。 | |
芦荟大黄素蒽醌型异二聚单元对照物 | 481-72-1 | 芦荟大黄素 | ≥95% | 用于番泻苷C/D异二蒽酮来源单元、羟甲基取代效应及其与大黄酸类结构差异研究。 | |
大黄素蒽酮型还原态对照物 | 491-60-1 | 大黄素蒽酮 | Moligand™, ≥98% | 用于研究蒽酮还原态、酮—烯醇互变、氧化生成大黄素及蒽酮结构的化学反应性。 | |
大黄素蒽醌型氧化态对照物 | 518-82-1 | 大黄素 | 分析标准品, ≥96%(HPLC) | 用于与大黄素蒽酮比较蒽醌—蒽酮氧化态差异,并研究羟基和甲基取代对电子性质与氧化还原行为的影响。 |
表3 二聚、去氢及稠合共轭结构参照物
分类 | Cas编号 | 阿拉丁货号 | 名称 | 规格或纯度 | 产品特色与应用 |
碳—碳单键连接的二蒽酮结构对照物 | 434-84-4 | 二蒽酮基 | ≥97% | 用于研究两个蒽酮单元经中央碳—碳单键二聚后的键长、扭转构象和构象自由度,并与去氢二蒽酮及稠合骨架比较。 | |
去氢二蒽酮共轭结构对照物 | 434-85-5 | 二蒽酮 | ≥95%(HPLC) | 用于研究二蒽酮去氢后的共轭结构、骨架构象变化及光致变色行为,并作为二聚结构向稠合共轭结构过渡的参照物。 | |
非稠合碳—碳连接双蒽醌天然产物 | 602-06-2 | Skyrin,胰高血糖素受体拮抗剂 | ≥97% | 用于非稠合双蒽醌碳—碳连接、酚羟基取代和二聚骨架生物合成研究,并用于胰高血糖素受体拮抗及肝细胞代谢评价。 | |
金丝桃素光转化前体 | 548-03-8 | Protohypericin | ≥95% | 用于金丝桃素形成过程中的光诱导环化与脱氢转化研究,并用于比较转化前后的可见光吸收和光敏化性质。 | |
稠合萘并二蒽酮光敏成分 | 548-04-9 | 金丝桃素 | Moligand™, ≥96% | 用于高度稠合萘并二蒽酮共轭骨架、可见光吸收、荧光、活性氧生成和光敏化作用研究。 |
注:以上为阿拉丁代表性科研相关产品,具体用途应结合产品规格、批次COA及目标反应或评价体系确定。更多产品规格、级别和COA信息可用“品名/CAS/货号”在阿拉丁官网检索。
参考文献
[1] 华会明, 娄红祥. 天然药物化学. 第8版. 北京: 人民卫生出版社, 2022.
[2] Szymanski S, Majerz I. In Silico Studies on Sennidines—Natural Dianthrones from Senna. Biology. 2021;10(6):468. doi:10.3390/biology10060468.
[3] Le J, Ji H, Zhou X, et al. Pharmacology, Toxicology, and Metabolism of Sennoside A, A Medicinal Plant-Derived Natural Compound. Frontiers in Pharmacology. 2021;12:714586. doi:10.3389/fphar.2021.714586.
[4] European Medicines Agency. European Union Herbal Monograph on Senna alexandrina Mill. (Cassia senna L.; Cassia angustifolia Vahl), folium—Revision 1. EMA/HMPC/625849/2015. 25 September 2018.
[5] Rizzo P, Altschmied L, Ravindran BM, Rutten T, D’Auria JC. The Biochemical and Genetic Basis for the Biosynthesis of Bioactive Compounds in Hypericum perforatum L., One of the Largest Medicinal Crops in Europe. Genes. 2020;11(10):1210. doi:10.3390/genes11101210.
[6] Revuru B, Bálintová M, Henzelyová J, et al. MALDI-HRMS Imaging Maps the Localization of Skyrin, the Precursor of Hypericin, and Pathway Intermediates in Leaves of Hypericum Species. Molecules. 2020;25(17):3964. doi:10.3390/molecules25173964.
[7] Zhang Y, Shang K, Wu X, et al. Highly Efficient Green Synthesis and Photodynamic Therapeutic Study of Hypericin and Its Derivatives. RSC Advances. 2018;8:21786–21792. doi:10.1039/C8RA03732A.
[8] Gattuso H, Marazzi M, Dehez F, Monari A. Deciphering the Photosensitization Mechanisms of Hypericin towards Biological Membranes. Physical Chemistry Chemical Physics. 2017;19:23187–23193. doi:10.1039/C7CP03723F.
[9] Diwu Z, Lown JW. EPR Studies of Photodynamic Action of Hypericin: Formation of Semiquinone Radical and Activated Oxygen Species on Illumination. Free Radical Biology and Medicine. 1993;14(2):209–215. doi:10.1016/0891-5849(93)90012-J.
[10] de Andrade GP, de Souza TFM, Cerchiaro G, et al. Hypericin in Photobiological Assays: An Overview. Photodiagnosis and Photodynamic Therapy. 2021;35:102343. doi:10.1016/j.pdpdt.2021.102343.
[11] Baugh SF. Simultaneous Determination of Protopseudohypericin, Pseudohypericin, Protohypericin, and Hypericin Without Light Exposure. Journal of AOAC International. 2005;88(6):1607–1612. doi:10.1093/jaoac/88.6.1607.
[12] Xu Y, Lv S, Li X, et al. Photoaffinity Probe-Enabled Discovery of Sennoside A Reductase in Bifidobacterium pseudocatenulatum. Journal of Pharmaceutical Analysis. 2025;15:101108. doi:10.1016/j.jpha.2024.101108.
更多相关文章,详见下方:
喹唑啉(Quinazoline,1,3-二氮杂萘)科研选型指南:结构特征、应用场景与关键试剂导航(表1–表4)
如何区分灰黄霉素(Griseofulvin)与特比萘芬(Terbinafine):理化属性、作用机制与实验选型要点
葡萄糖苷酶(Glucosidase):分类框架、催化机理与应用要点
n-十二烷基-β-D-麦芽糖苷(DDM):结构、性质及其作为非离子表面活性剂的应用
研究用碳水化合物(Carbohydrates)入门:读懂“糖链语言”与产品选型导航(附表1–3)


 危险品化学品经营许可证(带存储)