
胶原蛋白的功能由什么决定:从三股螺旋形成到层级组装、交联成熟与动态重塑
胶原蛋白的功能由什么决定:从三股螺旋形成到层级组装、交联成熟与动态重塑
引言
胶原蛋白常被概括为皮肤、骨、软骨和肌腱中的“支撑成分”。这一说法说明了胶原的结构作用,但容易使人产生一种简单认识:胶原含量越高,组织状态越好。
实际上,胶原含量只能说明组织中存在多少胶原,不能单独说明这些胶原是否形成了具有正常功能的结构。胶原类型不合适、三股螺旋折叠异常、原纤维组装受阻、纤维排列紊乱、交联程度异常以及合成与降解失衡,都可能削弱组织功能。瘢痕和器官纤维化中,胶原沉积量可能明显增加,但正常组织结构和力学性质仍会受到破坏。[12,13]
胶原功能的形成具有连续的结构层级:
氨基酸序列与翻译后修饰 → 三条α链形成三股螺旋 → 前胶原加工与胞外组装 → 原纤维、纤维或网状结构形成 → 空间排列与分子间交联 → 组织力学与细胞调节 → 合成、降解和持续重塑
胶原蛋白的功能由多个结构层级共同形成。Gly–X–Y重复序列、羟化及α链配对构成稳定的前胶原三股螺旋;前肽切除后,不同类型胶原进一步形成原纤维、基底膜网络或锚定原纤维。胶原类型、空间排列、交联状态、其他基质成分以及合成—降解—重塑平衡,共同决定组织力学性能和细胞微环境。胶原蛋白从三股螺旋形成、胞外层级组装到组织功能与动态重塑的示意图如下
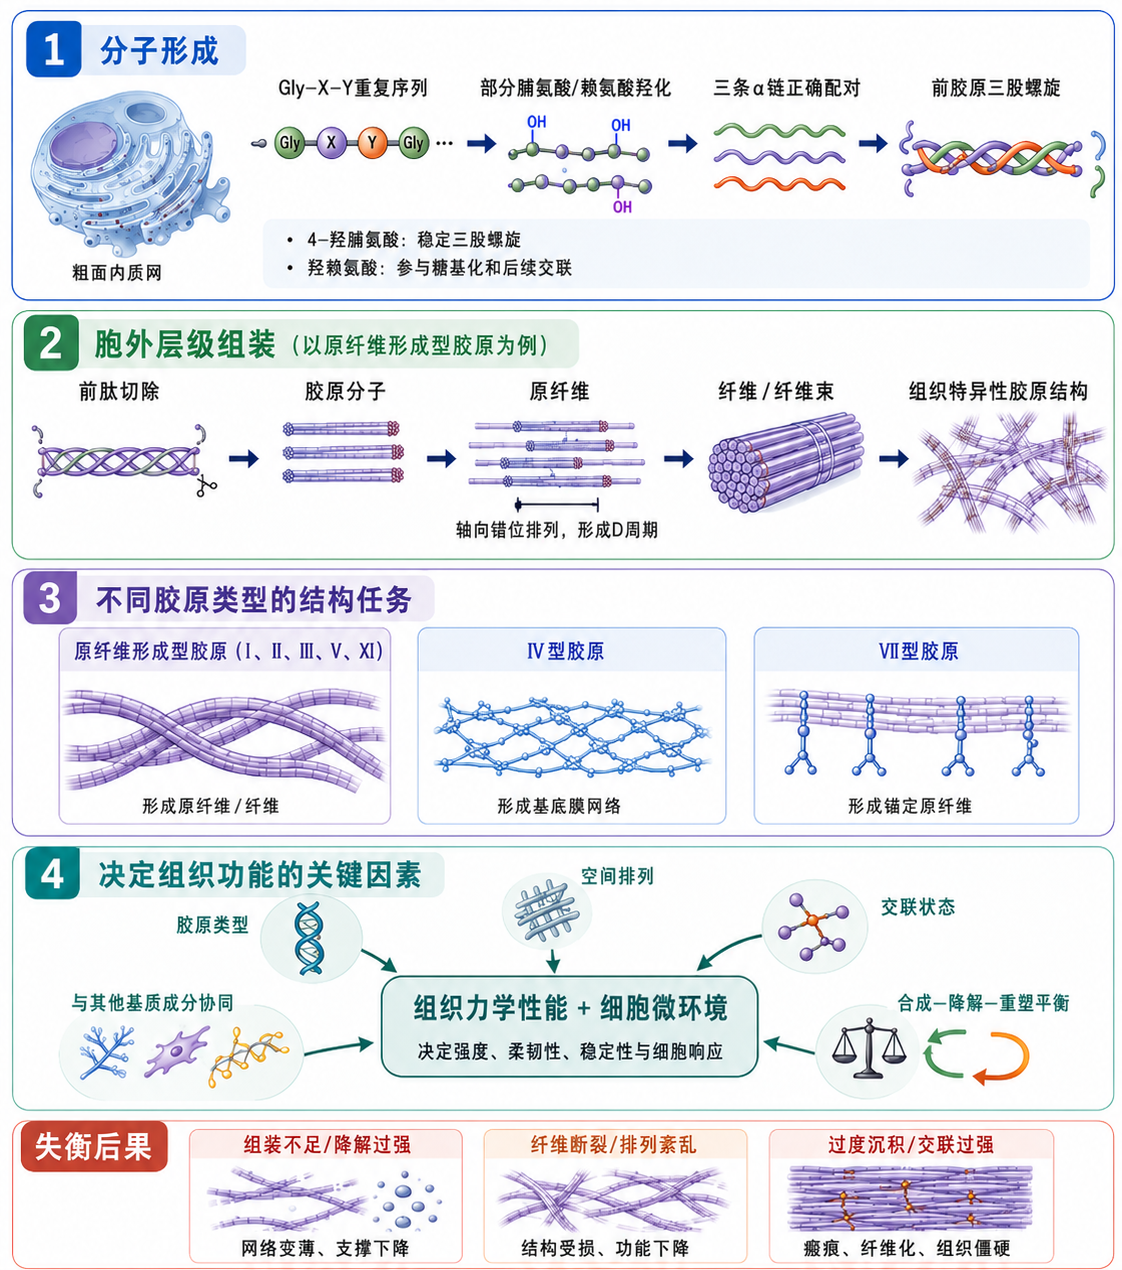
1 什么是胶原蛋白
1.1 胶原蛋白是一个蛋白质家族
胶原蛋白是一组具有胶原三股螺旋结构域的细胞外基质蛋白。不同胶原由不同基因编码,其α链组成、非胶原结构域、组织分布和高级组装形式并不相同。[1]
按照高级组装方式,胶原可概括为以下几类:
结构类别 | 代表类型 | 主要高级结构 | 代表性功能 |
原纤维形成型胶原 | Ⅰ、Ⅱ、Ⅲ、Ⅴ、Ⅺ型 | 原纤维、纤维及纤维束 | 构建皮肤、肌腱、骨和软骨等组织的承力框架 |
网络形成型胶原 | Ⅳ型 | 基底膜胶原网络 | 构成基底膜的主要结构骨架 |
锚定胶原 | Ⅶ型 | 锚定原纤维 | 连接基底膜与下方结缔组织 |
纤维相关胶原 | Ⅸ、Ⅻ、ⅩⅣ型等 | 附着于胶原纤维表面 | 调节纤维与周围基质成分的相互作用 |
跨膜胶原 | ⅩⅢ、ⅩⅦ型等 | 跨膜结构 | 参与细胞与细胞外基质的连接 |
这种分类反映的是不同胶原的结构任务。Ⅰ型胶原适合形成承力原纤维,Ⅳ型胶原主要形成基底膜网络,Ⅶ型胶原则形成锚定原纤维。它们虽然都含有三股螺旋结构域,但不能相互替代。[1,6–8]
1.2 胶原是细胞外基质的重要组成部分
细胞外基质(extracellular matrix,ECM)是由胶原、弹性蛋白、纤连蛋白、层粘连蛋白、蛋白聚糖和糖胺聚糖等共同组成的细胞外网络。
胶原在其中主要承担抗拉和结构组织作用,但组织的整体性质还取决于其他成分。在皮肤中,胶原纤维与弹性纤维、蛋白聚糖和水分共同影响真皮的强度与柔韧性;在软骨中,Ⅱ型胶原网络限制富含水分的蛋白聚糖体系过度膨胀,并与其共同承担复杂负荷;在骨中,Ⅰ型胶原形成有机基质框架,矿物相则提供较高的刚度和抗压能力。
胶原含量相近的组织,也可能因胶原类型、纤维方向、交联状态以及其他基质成分不同而具有完全不同的力学性质。
1.3 胶原也是细胞所处微环境的一部分
细胞能够通过胶原结合受体识别胶原结构,并感知胶原纤维的密度、取向、配体可及性和局部力学状态。胶原环境的变化可影响细胞黏附、形态、细胞骨架组织、迁移和基质合成。
细胞也会反向改变胶原网络。成纤维细胞等细胞能够分泌胶原、牵拉纤维、调整纤维方向,并通过蛋白酶切割周围基质。因此,胶原并不是形成后保持不变的被动材料,而是细胞持续构建和重塑的组织环境。[11,14]
2 三股螺旋如何形成
2.1 Gly–X–Y重复序列是胶原结构的基础
胶原三股螺旋结构域通常由连续的Gly–X–Y三肽重复序列组成。Gly代表甘氨酸,X和Y位可以是多种氨基酸,其中脯氨酸和4-羟脯氨酸较为常见。
甘氨酸侧链只有一个氢原子,空间体积很小,能够排列在三股螺旋紧密结合的中心。若这一位置被体积较大的氨基酸替代,三条链的紧密堆积可能受到干扰。脯氨酸能够限制多肽主链构象,4-羟脯氨酸则有助于预组织链构象,并通过立体电子效应等提高三股螺旋的热稳定性。[2,17]
不同Gly–X–Y三肽的稳定能力并不完全相同,因此胶原三股螺旋沿分子长度方向可能存在局部稳定性差异。非原纤维形成型胶原的三股螺旋结构域中还可能存在Gly–X–Y重复中断,这些中断会改变局部柔性,并参与高级结构和功能的形成。
胶原“α链”中的“α”是胶原多肽链的命名,不表示普通蛋白质二级结构中的α-螺旋。单条胶原链主要呈延伸构象,三条链再缠绕形成胶原特有的右手三股螺旋。
2.2 羟化有助于胶原折叠和成熟
前胶原α链进入内质网后,部分脯氨酸和赖氨酸残基会发生羟化。前胶原α链进入内质网后,部分脯氨酸和赖氨酸残基会发生羟化。胶原脯氨酰羟化酶,尤其是胶原脯氨酰4-羟化酶,以及赖氨酰羟化酶,均属于Fe²⁺和2-氧代戊二酸依赖性双加氧酶。[3]
脯氨酸羟化主要形成羟脯氨酸,赖氨酸羟化主要形成羟赖氨酸。反应需要Fe²⁺参与;抗坏血酸有助于维持羟化酶活性中心铁离子的还原状态,使酶能够持续进行有效催化。[3]
4-羟脯氨酸对三股螺旋在人体温度下的稳定具有重要作用。羟赖氨酸的作用则有所不同:部分羟赖氨酸可以进一步糖基化,部分位点还参与胶原分子间交联。羟化既影响胶原分子折叠,也影响胞外纤维成熟。
2.3 三条α链需要正确选择和配对
典型成纤维胶原以前胶原形式合成。前胶原包含中间的三股螺旋结构域,以及两端的N端和C端前肽。
C端前肽参与α链识别和三聚体形成。三条适合的α链完成配对后,三股螺旋通常由C端向N端逐渐折叠。例如,常见Ⅰ型胶原分子由两条α1(I)链和一条α2(I)链组成。
α链能够被合成,并不等于一定能够形成正常胶原。链选择错误、羟化不足、分子伴侣异常或折叠速度改变,都可能影响三股螺旋稳定、分泌效率和后续组装。[3]
N端和C端前肽还可提高前胶原的可溶性,限制其在细胞内过早形成纤维。因此,前胶原在细胞内已经形成三股螺旋,却尚未进入成熟原纤维状态。
3 胶原分子如何组装成高级结构
3.1 前肽加工启动原纤维形成型胶原组装
前胶原分泌后,N端和C端前肽通常由相应蛋白酶切除。前肽被去除后,胶原分子的溶解性下降,并能够按照特定轴向错位关系排列,形成具有间隙区和重叠区的周期性原纤维结构。
原纤维形成并不是单纯依靠胶原分子在细胞外随机沉淀。在腱成纤维细胞原位研究中,Ⅰ型前胶原的部分加工可在分泌途径后段开始,说明前胶原加工、分泌和胞外组装之间可能存在空间和时间上的协调。[4]
3.2 少量Ⅴ型胶原可以调节Ⅰ型胶原原纤维形成
皮肤、肌腱和角膜等组织中的胶原原纤维通常不是由单一胶原类型构成。Ⅰ型胶原往往是主要定量成分,Ⅴ型胶原则作为含量较低的调节性成分参与异型原纤维形成。
小鼠遗传研究显示,Col5a1缺失会严重影响Ⅰ型胶原原纤维的起始组装,说明Ⅴ型胶原参与原纤维成核和直径调节。Ⅴ型胶原含量较少,并不意味着其结构作用较弱。[5]
软骨中的原纤维也由多种胶原共同构成。Ⅱ型胶原是主要成分,Ⅸ型和Ⅺ型胶原则参与纤维表面连接和原纤维直径调节。
3.3 Ⅳ型胶原形成基底膜网络
Ⅳ型胶原与典型原纤维形成型胶原不同。其三股螺旋结构域含有多处Gly–X–Y重复中断,使分子具有较高柔性;分子两端的结构域则参与特异性连接。
Ⅳ型胶原分子的N端7S区域可以形成多分子连接,C端非胶原结构域1(non-collagenous domain 1,NC1)则参与α链选择,并连接两个Ⅳ型胶原原聚体。两端连接共同构建基底膜中的Ⅳ型胶原网络。[6,7]
Ⅳ型胶原网络与层粘连蛋白、巢蛋白和基底膜蛋白聚糖等共同维持基底膜结构。其主要作用不是形成具有典型周期条纹的粗大纤维束,而是建立连续、具有一定柔性的组织界面。
3.4 Ⅶ型胶原形成锚定原纤维
Ⅶ型胶原分子可形成由二硫键稳定的反向平行二聚体,并进一步侧向聚集为锚定原纤维。锚定原纤维位于基底膜下方,将基底膜与乳头层结缔组织连接,有助于维持表皮与真皮之间的机械连续性。[8]
Ⅶ型胶原结构或组装异常时,即使基底膜中的其他成分仍然存在,表皮与下方结缔组织之间的连接也可能变得脆弱。
4 空间排列和交联如何形成组织功能
4.1 纤维排列决定载荷如何传递
单根胶原纤维的力学性质不能完全代表整个组织。纤维的方向、直径、密度、弯曲程度、分支和层间连接共同决定载荷如何传递。
肌腱中的胶原纤维主要沿受力方向排列,有利于传递肌肉产生的定向拉力。皮肤真皮中的胶原纤维呈多方向交织,可适应来自不同方向的牵拉和形变。关节软骨中的胶原纤维在不同深度具有不同取向,并与蛋白聚糖和水分共同形成分层承力结构。
胶原网络受到拉伸时,原本弯曲或波浪状的纤维可先发生转动和伸直,随后越来越多的纤维进入承力状态。由此形成的力学响应通常不是固定不变的线性关系。体外重建的Ⅰ型胶原网络可在一定应变范围内出现应变硬化,即随着形变增加,网络继续变形所需的力逐渐增大。[9]
这类力学行为来自多个层级的共同作用:三股螺旋提供稳定的分子单元,原纤维连接传递分子尺度载荷,纤维排列和三维网络则决定载荷在组织尺度上的分配。
4.2 赖氨酰氧化酶相关交联稳定原纤维
胶原原纤维形成后,赖氨酰氧化酶(lysyl oxidase,LOX)家族可催化端肽区特定赖氨酸或羟赖氨酸残基发生氧化脱氨,分别形成具有反应活性的赖氨酸醛(allysine)或羟赖氨酸醛(hydroxyallysine)。这些醛基随后与邻近胶原分子中的醛基或氨基发生非酶促缩合,逐步形成二价和多价分子间交联。[10]。
适度酶促交联能够提高原纤维的连续性、抗拉强度和长期稳定性。不同组织的赖氨酸羟化程度和交联途径不同,胶原成熟后的力学性质也会有所差异。
4.3 交联程度需要与组织更新相适应
胶原交联不足时,原纤维可能缺乏足够稳定性;交联程度过高时,胶原纤维则可能变得僵硬,并降低对蛋白酶切割的敏感性。
除了LOX相关酶促交联,寿命较长的胶原还可能发生非酶促糖化。还原糖及其衍生物与胶原中的氨基发生反应,经过多步重排和氧化后,可形 成晚期糖基化终产物(advanced glycation end products,AGEs)。部分AGEs能够在胶原分子之间形成额外连接。
年龄相关修饰可以改变胶原纤维的刚度、热稳定性和蛋白水解敏感性,但不同组织和交联类型产生的影响并不完全一致。胶原硬度增加不一定代表组织功能增强,也可能伴随柔顺性下降和更新受限。[10]
4.4 胶原功能取决于整个细胞外基质体系
胶原纤维周围还存在纤连蛋白、蛋白聚糖、糖胺聚糖、弹性蛋白和水分。纤连蛋白可参与胶原沉积和网络组织;蛋白聚糖可调节原纤维间距、直径和水合环境;细胞牵引力则能够拉直、移动和重新排列胶原纤维。
同一种胶原进入不同基质环境后,可能形成不同的纤维结构和力学表现。胶原类型提供基本组装能力,组织功能则由胶原比例、空间排列、交联状态、其他基质成分和细胞活动共同形成。
5 胶原网络如何持续更新
5.1 胶原合成增加不等于功能性网络增加
从胶原基因表达增加到组织功能改善之间,还需要经过多个步骤:
基因转录 → α链翻译 → 羟化与糖基化 → 三股螺旋形成 → 前胶原分泌 → 前肽加工 → 原纤维组装 → 空间排列 → 交联成熟
某种处理提高COL1A1等胶原基因表达,只能说明合成过程中的一个环节发生变化。新生胶原是否形成稳定三股螺旋、能否被正常分泌、是否组装成原纤维以及能否与既有网络正确连接,还需要通过蛋白质分析、结构成像和力学检测加以评价。[3,4]
5.2 胶原降解是正常重塑的一部分
基质金属蛋白酶(matrix metalloproteinase,MMP)参与胶原和其他细胞外基质成分的降解。MMP1、MMP8和MMP13等可在特定位点切割原纤维形成型胶原,切割后的片段再由其他蛋白酶进一步降解或被细胞摄取清除。
正常胶原降解具有多项作用:
1. 清除发生损伤或结构异常的胶原;
2. 为新生胶原提供组装空间;
3. 调整纤维方向和网络孔隙;
4. 配合组织生长和创伤修复;
5. 防止胶原持续无序积累。
2024年的小鼠皮肤研究显示,真皮成纤维细胞在沉积Ⅰ型胶原的同时,可利用膜型基质金属蛋白酶14(matrix metalloproteinase 14,MMP14)重塑细胞周围的胶原原纤维。Mmp14缺失导致细胞周围胶原重塑受阻,并影响成纤维细胞存活,说明局部蛋白水解并不只是组织破坏,也参与正常基质形成。[11]
5.3 胶原纤维在细胞活动下持续生长和重排
2025年的活细胞成像研究利用荧光融合标记的Ⅰ型胶原α2链,观察到胶原在细胞内运输、分泌和胞外纤维形成的过程。新生纤维可沿既有纤维方向延伸,并出现分叉、成束、成环和相互缠绕等行为。[14]
这些观察说明,胶原网络并非由分子在细胞外随机沉淀形成。细胞分泌位置、既有纤维方向、局部牵引力和纤维间相互作用都会影响网络生长。
该研究采用细胞培养和荧光融合胶原体系,能够显示细胞水平的动态过程,但其观察结果仍需与天然人体组织中的原位结构相互验证。
5.4 胶原稳态需要稳定性与可更新性并存
胶原状态 | 主要变化 | 可能结果 |
正常更新 | 合成、组装、交联和降解相互协调 | 网络稳定并保持可重塑性 |
合成不足 | 新生胶原不能补偿损失 | 网络变薄,纤维连续性下降 |
降解过强 | 成熟纤维持续断裂 | 组织支撑和细胞黏附环境受损 |
降解不足 | 损伤或多余胶原难以清除 | 基质异常积累 |
交联过度 | 胶原刚度增加,蛋白水解受限 | 组织僵硬,更新能力下降 |
组装异常 | 胶原存在但未形成正常网络 | 胶原含量与组织功能不一致 |
胶原网络需要具备足够的结构稳定性,也需要能够清除受损成分并补充新生胶原。稳定性不足会使纤维易于损伤,稳定性过高则可能限制正常重塑。
6 胶原失衡如何影响组织
6.1 胶原减少可能发生在多个环节
组织中的胶原减少不一定只由胶原基因表达下降引起,还可能来自:
1. 产生胶原的细胞数量或活性下降;
2. α链羟化和三股螺旋折叠异常;
3. 前胶原分泌或前肽加工受阻;
4. 原纤维组装效率下降;
5. 胶原降解速度增加。
胶原染色减弱或胶原含量下降只能显示最终结果,不能直接判断具体受损步骤。区分合成不足、组装失败和降解增强,有助于准确理解组织变化。
6.2 胶原纤维断裂会反向影响成纤维细胞
老化皮肤中的胶原变化不只是含量下降,还包括Ⅰ型胶原纤维碎裂、连续性降低和空间结构改变。胶原纤维碎裂后,成纤维细胞与完整基质之间的机械连接减少,细胞伸展和张力状态发生改变,并可能进一步增加基质金属蛋白酶1(MMP1)的表达。[12]
人皮肤组织和三维胶原模型研究支持“胶原碎裂—细胞张力下降—胶原降解增加”的相互促进关系。但皮肤老化还受到紫外线、氧化应激、炎症、细胞衰老以及其他细胞外基质变化的共同影响,不能归因于单一胶原通路。
6.3 胶原过度沉积也会破坏组织功能
创伤修复早期增加胶原沉积,有助于恢复组织连续性。若促纤维化信号长期存在,胶原合成持续高于降解,纤维不断积累并发生较强交联,正常组织结构可能逐渐被致密基质取代。
肾纤维化研究显示,LOX表达升高和胶原交联增强可促进基质硬化;在相应实验模型中抑制LOX,可减少胶原交联并减轻部分纤维化表现。[13]
瘢痕和纤维化不能只用胶原总量评价,还需要考察胶原类型比例、纤维取向、束化程度、交联状态、基质刚度以及胶原清除能力。胶原沉积增加不等同于正常组织结构恢复。
7 胶原研究正在从含量评价转向结构和动态评价
7.1 二次谐波成像可以观察胶原空间结构
常规羟脯氨酸测定、组织染色和免疫检测可以评价胶原总量或特定胶原类型,但对纤维方向、层级结构和分子排列提供的信息有限。
二次谐波生成(second harmonic generation,SHG)显微成像无需外源荧光标记,适合观察具有较高有序度的原纤维形成型胶原。偏振分辨SHG还可以分析纤维方向和部分分子排列参数。
2025年的研究使用偏振分辨SHG比较了不同Ⅰ型/Ⅲ型胶原比例的人工胶原基质,以及健康皮肤和瘢痕皮肤中的胶原结构,结果显示胶原类型比例和组织状态与成像参数及纤维取向差异相关。[15]
SHG信号主要反映有序胶原结构的非线性光学性质,不能单独替代胶原类型定量、交联分析和组织力学测量。
7.2 动态成像补充了静态结构研究
活细胞胶原成像可以观察胶原分泌、纤维延长和网络重排,弥补传统固定切片只能显示最终结构的不足。[14]
2026年的一项研究还使用时间分辨冷冻电子显微镜(cryo-electron microscopy,cryo-EM),观察简化重组胶原模型CF-1552从三股螺旋向高级结构组装的过程,并捕获了纺锤状和轴向组装中间体。研究提出,胶原组装可能经历由较易重排的中间状态逐渐转变为稳定纤维的过程。[16]
该研究使用的是无翻译后修饰、经过设计且组装速度较慢的重组胶原模型,并非天然组织中的全长人体胶原。CF-1552中间体的轴向错位和侧向堆积方式与天然胶原仍存在差异,CF-1552模型本身也未重现天然原纤维形成型胶原典型的D周期条纹。因此,该模型为研究胶原早期层级组装提供了可控实验体系,但其提出的中间体和组装路径是否普遍适用于天然胶原,仍需通过全长胶原、原位组织和其他模型进一步验证。[16]
7.3 胶原功能需要进行多层级评价
评价层级 | 主要指标 |
合成层级 | 胶原基因表达、前胶原及成熟胶原含量 |
分子层级 | α链组成、羟化、糖基化和三股螺旋稳定性 |
组装层级 | 前肽加工、原纤维形成和纤维直径 |
空间层级 | 纤维方向、密度、分支、连续性和三维结构 |
化学成熟层级 | 酶促交联、非酶促糖化及交联类型 |
动态层级 | 合成速率、降解速率和细胞介导的重塑 |
功能层级 | 组织刚度、强度、韧性和细胞反应 |
8 胶原蛋白结构形成、羟化成熟、交联糖化、动态重塑与分析相关代表化学品分类及科研应用
表1 胶原核心材料、结构对照与样品制备相关产品
分类 | Cas编号 | 阿拉丁货号 | 名称 | 规格或纯度 | 产品特色与应用 |
胶原变性结构对照 | 9000-70-8 | 明胶 | 照相级, gel strength ~250 g Bloom | 用于胶原三股螺旋变性、凝胶形成、热响应及天然胶原与变性胶原结构差异研究。 | |
胶原提取与分散介质 | 64-19-7 | 冰乙酸 | 优级试剂, ≥99.5% | 用于酸溶性胶原提取、胶原酸性溶液配制、中和诱导原纤维形成前的样品制备及胶原材料研究。 | |
胶原体系中和试剂 | 1310-73-2 | 氢氧化钠 | BP, 低内毒素, 欧洲药典(Ph.Eur), NF, ≥98%, pellets | 用于酸性胶原溶液中和、pH调节、胶原原纤维形成与凝胶化条件研究及细胞培养基质制备。 | |
胶原酸性有限酶解与肽段制备酶 | 9001-75-6 | 重组胃蛋白酶(质谱级) | 无动物源, 无载体, 生物活性, 质谱级 (MS), ActiBioPure™, EnzymoPure™, 用于蛋白测序, ≥10000U/g enzyme powder; ≥20000U/g protein | 用于酸性条件下胶原有限酶解、胶原肽段制备、质谱分析及胶原结构域鉴定。 | |
重组Ⅲ型胶原材料 | 9007-34-5 | 重组人源化III型胶原蛋白 | 无动物源, 无载体, 重组, ≥90%(SDS-PAGE), expressed in Nicotiana benthamiana | 用于重组Ⅲ型胶原材料的结构表征、细胞黏附、细胞相容性、细胞外基质构建及组织修复相关研究。 | |
牛源Ⅰ型胶原材料 | 9007-34-5 | 牛胶原I | Moligand™ | 用于Ⅰ型胶原三股螺旋、原纤维形成、凝胶构建、细胞培养基质及胶原力学研究。 | |
牛源Ⅰ型胶原溶液 | 9007-34-5 | 牛胶原蛋白溶液 | Moligand™, ≥95%, Type I,sterile filtered, BSE-Free, suitable for biomedical research | 用于Ⅰ型胶原包被、三维凝胶、原纤维组装、细胞外基质模拟及生物材料研究。 | |
猪源Ⅰ型胶原材料 | 9007-34-5 | 猪源I型胶原(ColI) | Moligand™, 研发级 | 用于不同动物来源Ⅰ型胶原的结构、成纤性能、材料相容性及组织工程研究。 |
表2 胶原特征氨基酸、羟化与三股螺旋形成相关产品
分类 | Cas编号 | 阿拉丁货号 | 名称 | 规格或纯度 | 产品特色与应用 |
三股螺旋核心氨基酸 | 56-40-6 | 甘氨酸 | UltraBio™, 分子生物学级, 超纯级, ≥99%(NT) | 用于胶原Gly–X–Y重复序列、三股螺旋中心排列、胶原模拟肽及结构稳定性研究。 | |
胶原富集氨基酸 | 147-85-3 | L-脯氨酸 | 无动物源, USP, 欧洲药典(Ph.Eur), 用于细胞培养, ≥99% | 用于胶原序列组成、脯氨酸羟化、三股螺旋构象及胶原合成培养体系研究。 | |
羟脯氨酸对照与培养成分 | 51-35-4 | 反式-4-羟基-L-脯氨酸 | Moligand™, 用于细胞培养, ≥98.5% | 用于胶原羟脯氨酸定量、三股螺旋稳定性、胶原代谢及细胞培养研究。 | |
胶原交联前体氨基酸 | 56-87-1 | L-赖氨酸 | Moligand™, ≥98%, Metal<500ppm | 用于胶原赖氨酸羟化、赖氨酰氧化、分子间交联及胶原模拟体系研究。 | |
羟赖氨酸方法开发对照 | 13204-98-3 | 5-羟基-DL-赖氨酸 盐酸盐 | ≥97% | 用于羟赖氨酸色谱和质谱方法建立、峰位确认及胶原交联前体研究。 | |
羟化酶辅助因子 | 50-81-7 | L -抗坏血酸 | 无水级, Moligand™, ACS, ≥99% | 用于支持前胶原脯氨酸和赖氨酸羟化、成纤维细胞胶原合成及细胞外基质沉积研究。 | |
双加氧酶共底物 | 328-50-7 | α-酮戊二酸 | Moligand™, 用于细胞培养, ≥99%, 内毒素≤10EU/g,微生物总菌落≤100cfu/g | 用于前胶原羟化酶反应、二价铁及α-酮戊二酸依赖性双加氧酶研究。 | |
羟化反应二价铁来源 | 7782-63-0 | 硫酸亚铁七水合物 | 适用于植物细胞培养, ≥99% | 用于胶原羟化酶辅助因子体系、二价铁依赖性酶反应及胶原成熟条件研究。 | |
羟化反应产物对照 | 110-15-6 | 丁二酸 | AR, ≥99.5% | 用于α-酮戊二酸依赖性羟化反应产物分析、代谢对照及酶反应体系研究。 | |
双加氧酶通路抑制剂 | 89464-63-1 | 二甲基草酰甘氨酸 | ≥98%(HPLC) | 用于2-氧代戊二酸依赖性双加氧酶抑制、HIF相关羟化通路、胶原羟化相关机制及胶原合成调控研究。 | |
前胶原羟化研究抑制剂 | 3943-89-3 | 3,4-二羟基苯甲酸乙酯 | ≥98% | 用于抑制胶原脯氨酰4-羟化,研究羟脯氨酸形成、前胶原合成与分泌及三股螺旋稳定性。 |
表3 胶原酶促交联、材料交联与非酶促糖化相关产品
分类 | Cas编号 | 阿拉丁货号 | 名称 | 规格或纯度 | 产品特色与应用 |
醛类材料交联剂 | 111-30-8 | 戊二醛(50%) | 照相级, 50% in H2O | 用于胶原膜、水凝胶和支架的体外交联、固定、耐酶解性及力学性能研究。 | |
赖氨酰氧化酶通路抑制剂 | 151-18-8 | 3-氨基丙腈(BAPN) | Moligand™, ≥98%, 含0.1%碳酸钾稳定剂 | 用于抑制赖氨酰氧化酶相关胶原交联,研究原纤维成熟、组织刚度及纤维化过程。 | |
天然来源材料交联剂 | 6902-77-8 | 京尼平 | Moligand™, ≥98% | 用于胶原水凝胶、膜和组织工程支架交联,以及材料稳定性、力学和降解性能研究。 | |
碳二亚胺偶联剂 | 25952-53-8 | 1-乙基-(3-二甲基氨基丙基)碳二亚胺盐酸盐 | ≥98% | 用于胶原羧基与氨基的体外偶联、胶原支架交联及生物活性分子固定。 | |
碳二亚胺活化添加剂 | 6066-82-6 | N-羟基琥珀酰亚胺 (NHS) | ≥98% | 与碳二亚胺配合用于胶原羧基活化、酰胺键构建、材料交联及表面功能化。 | |
快速糖化模型糖 | 50-69-1 | D-(-)-核糖 | 用于细胞培养, ≥99%(HPLC) | 用于胶原非酶促糖化、晚期糖基化终产物形成、纤维硬化及降解敏感性研究。 | |
生理糖化条件对照 | 50-99-7 | D -(+)-葡萄糖 | 无水级, UltraBio™, ≥99.5%(HPLC), sum of enantiomers | 用于胶原缓慢非酶促糖化、糖浓度响应、交联积累及细胞外基质老化研究。 | |
活性二羰基糖化剂 | 107-22-2 | 乙二醛溶液 | 分子生物学级, 40% in H2O(8.8 M) | 用于胶原羰基应激、晚期糖基化终产物形成、分子间交联及材料性质变化研究。 | |
活性二羰基糖化剂 | 78-98-8 | 丙酮醛 | Moligand™, 40%溶液 | 用于胶原非酶促糖化、二羰基应激、交联形成及细胞外基质损伤研究。 | |
成熟胶原交联分析对照 | 63800-01-1 | Pyridinoline | ≥99% | 用于成熟胶原吡啶啉交联的定性定量方法建立、骨与软骨胶原代谢及色谱质谱分析。 |
表4 胶原降解、基质重塑与含量分析相关产品
分类 | Cas编号 | 阿拉丁货号 | 名称 | 规格或纯度 | 产品特色与应用 |
胶原降解与组织消化酶 | 9001-12-1 | 胶原酶 来源于溶组织梭菌 | 无菌过滤, 用于细胞培养, lyophilized powder, 0.5-5.0 FALGPA units/mg solid | 用于胶原纤维降解、组织解离、细胞分离、胶原材料耐酶解性及基质重塑研究。 | |
广谱基质金属蛋白酶抑制剂 | 142880-36-2 | GM 6001,广谱MMP抑制剂 | Moligand™, ≥98% | 用于抑制多种基质金属蛋白酶,研究胶原降解、细胞外基质重塑及纤维保护机制。 | |
金属蛋白酶抑制剂 | 66-71-7 | 1,10-菲罗啉(无水) | Moligand™, ≥99% | 通过螯合金属离子用于金属蛋白酶活性抑制、胶原降解及酶依赖性验证。 | |
金属离子螯合剂 | 60-00-4 | 乙二胺四乙酸(EDTA) | 用于细胞培养, ≥99% | 用于螯合二价金属离子、抑制金属依赖性蛋白酶、终止酶反应及样品处理。 | |
前体金属蛋白酶活化剂 | 6283-24-5 | 对氨基苯汞乙酸盐(APMA) | Moligand™, ≥98% | 用于部分前体基质金属蛋白酶的体外活化、酶活检测及胶原降解体系研究。 | |
胶原酸水解试剂 | 7647-01-0 | 盐酸发烟 37%(易制毒) | 优级试剂, 适用于分析, max. 0.001 ppm Hg | 用于胶原样品酸水解、羟脯氨酸释放、氨基酸组成及胶原含量分析。 | |
胶原组织学染料 | 2610-10-8 | 直接红80 | Dye content 25 % | 用于胶原纤维组织学染色、纤维分布观察、偏振分析及瘢痕和纤维化评价。 | |
羟脯氨酸氧化试剂 | 7080-50-4 | 氯胺T 三水合物 | AR, ≥98%(T) | 用于羟脯氨酸比色测定中的氧化步骤,以及组织和胶原材料总胶原含量分析。 | |
羟脯氨酸比色显色试剂 | 100-10-7 | 对二甲氨基苯甲醛 | ≥98% | 用于氯胺T氧化后的羟脯氨酸显色,以及组织和胶原材料中羟脯氨酸含量的比色测定与总胶原含量的间接估算。 |
注:以上为阿拉丁代表性科研产品,更多产品规格、级别、COA信息可用“品名/CAS/货号”在阿拉丁官网检索。
参考文献
[1] Reactome. Collagen formation. Homo sapiens. Stable identifier: R-HSA-1474290. Accessed July 28, 2026.
[2] Ramshaw JAM, Shah NK, Brodsky B. Gly-X-Y tripeptide frequencies in collagen: a context for host–guest triple-helical peptides. Journal of Structural Biology. 1998;122(1–2):86–91.
[3] Reactome. Collagen biosynthesis and modifying enzymes. Homo sapiens. Stable identifier: R-HSA-1650814. Accessed July 28, 2026.
[4] Canty-Laird EG, Lu Y, Kadler KE. Stepwise proteolytic activation of type I procollagen to collagen within the secretory pathway of tendon fibroblasts in situ. Biochemical Journal. 2012;441(2):707–717.
[5] Wenstrup RJ, Florer JB, Brunskill EW, Bell SM, Chervoneva I, Birk DE. Type V collagen controls the initiation of collagen fibril assembly. Journal of Biological Chemistry. 2004;279(51):53331–53337.
[6] Timpl R, Wiedemann H, van Delden V, Furthmayr H, Kühn K. A network model for the organization of type IV collagen molecules in basement membranes. European Journal of Biochemistry. 1981;120:203–211.
[7] Sundaramoorthy M, Meiyappan M, Todd P, Hudson BG. Crystal structure of NC1 domains: structural basis for type IV collagen assembly in basement membranes. Journal of Biological Chemistry. 2002;277(34):31142–31153.
[8] Sakai LY, Keene DR, Morris NP, Burgeson RE. Type VII collagen is a major structural component of anchoring fibrils. Journal of Cell Biology. 1986;103(4):1577–1586.
[9] Bakshi S, Vaisakh VM, Sarkar R, Majumdar S. Strain localization and yielding dynamics in disordered collagen networks. Soft Matter. 2021;17(26):6435–6444.
[10] Panwar P, Lamour G, Mackenzie NCW, et al. Changes in structural-mechanical properties and degradability of collagen during aging-associated modifications. Journal of Biological Chemistry. 2015;290(38):23291–23306.
[11] Sabeh F, Li XY, Olson AW, et al. Mmp14-dependent remodeling of the pericellular–dermal collagen interface governs fibroblast survival. Journal of Cell Biology. 2024;223(9):e202312091.
[12] Fisher GJ, Quan T, Purohit T, et al. Collagen fragmentation promotes oxidative stress and elevates matrix metalloproteinase-1 in fibroblasts in aged human skin. American Journal of Pathology. 2009;174(1):101–114.
[13] Zhang X, Zhou W, Niu Y, et al. Lysyl oxidase promotes renal fibrosis via accelerating collagen cross-link driving by β-arrestin/ERK/STAT3 pathway. FASEB Journal. 2022;36(8):e22427.
[14] Kent O, Casey ER, Brown M, et al. New imaging tools reveal live cellular collagen secretion, fibril dynamics and network organisation. Scientific Reports. 2025;15:13764.
[15] Zhou M, Gomes MP, Elgersma A, et al. Multiscale investigation of collagen structure in human skin and gel matrices using polarization resolved second harmonic generation microscopy. Scientific Reports. 2025;15:20025.
[16] Fang B, Zeng D, Duan Z, et al. Real-time visualization of collagen assembly uncovers metastable properties in hierarchical organization. Nature Communications. 2026;17:6382.
[17] Shoulders MD, Raines RT. Collagen structure and stability. Annual Review of Biochemistry. 2009;78:929–958.
更多相关文章,详见下方:
细胞培养包被体系中玻连蛋白、层粘连蛋白与纤连蛋白的适用性比较


 危险品化学品经营许可证(带存储)