
护肤寡肽为何作用不同?——分子结构、皮肤递送与作用机制
护肤寡肽为何作用不同?——分子结构、皮肤递送与作用机制
引言
寡肽是由少数氨基酸残基通过肽键连接形成的短链肽。国际纯粹与应用化学联合会(International Union of Pure and Applied Chemistry,IUPAC)的生化命名资料指出,少于约10~20个氨基酸残基的肽可称为寡肽(oligopeptide);这一范围属于约定性命名,并不是严格的分子量分界。[1]
护肤原料中的寡肽并不是一种具有统一作用的活性成分。氨基酸序列决定分子的基本化学特征和潜在生物识别能力;脂化、乙酰化、酰胺化和金属配位进一步改变电荷、亲疏水性、稳定性和皮肤分配;外用后的实际作用还受到配方释放、角质层屏障、皮肤内降解以及靶点位置的影响。
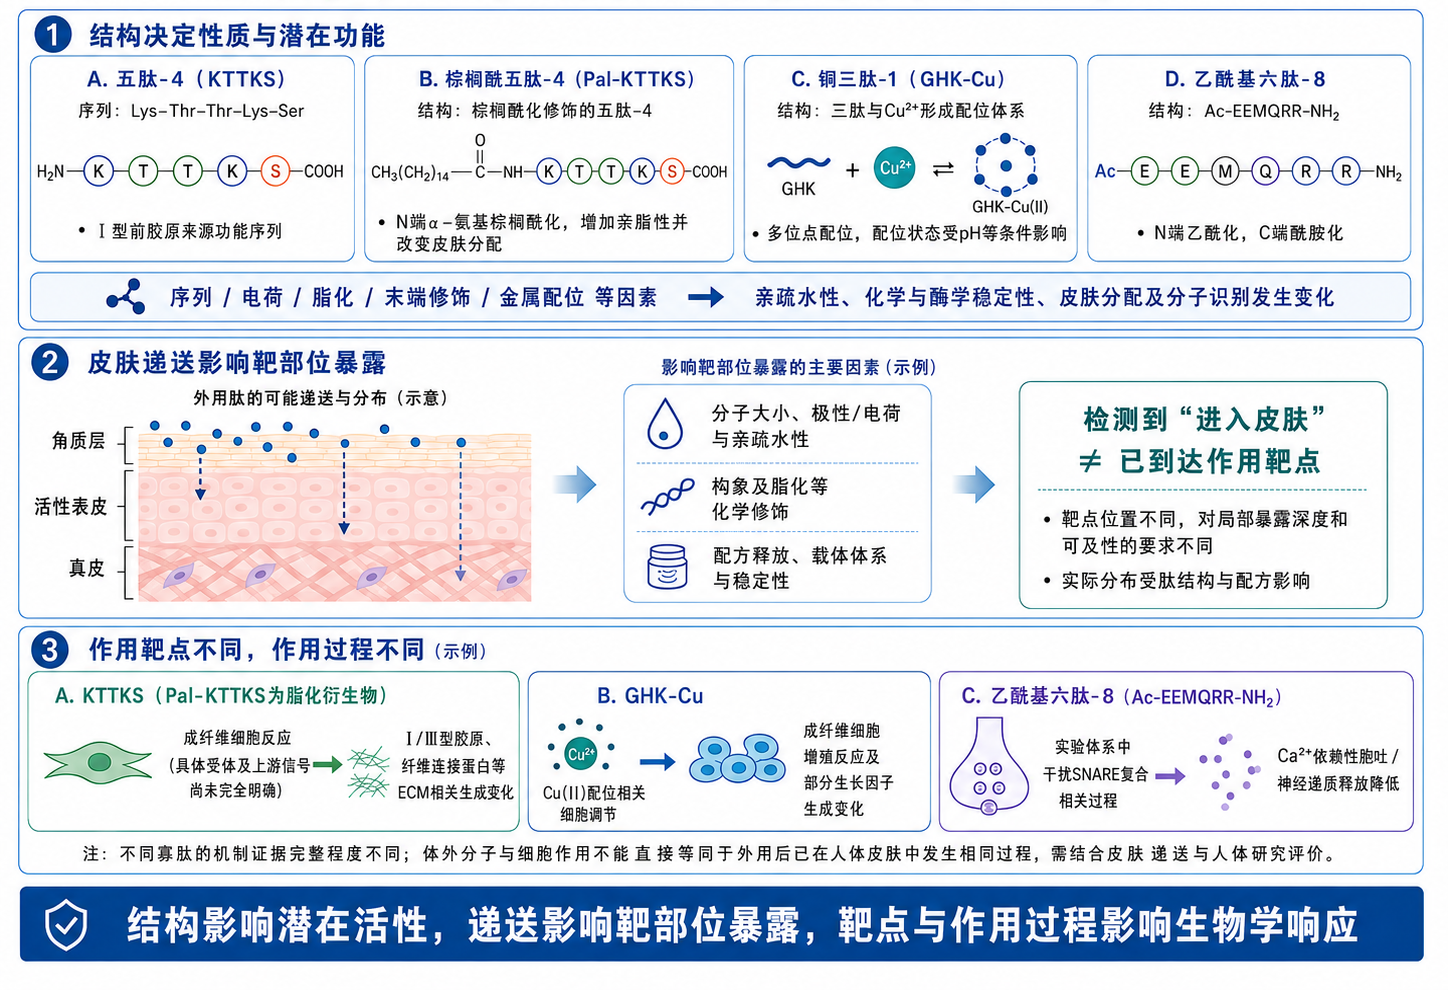
同样属于寡肽,不同序列和化学修饰会形成不同的理化性质与潜在生物活性;同一种寡肽在不同配方中,其稳定性、皮肤分布和靶部位暴露也可能不同。寡肽能否产生相应生物学作用,还与作用靶点及其所在位置有关。因此,结构、皮肤递送与靶点匹配共同影响寡肽的实际作用。下图概括了三者之间的关系及代表性寡肽的作用差异。
1. 寡肽的结构决定了什么
1.1 肽链短,并不代表生物作用相同
典型肽链由氨基酸残基通过肽键连接。相邻残基之间形成的 —CO—NH— 酰胺结构称为肽键,其基本骨架可写为:
—NH—CHR¹—CO—NH—CHR²—CO—
R¹、R²代表不同氨基酸的侧链。侧链的结构决定残基的电荷、极性、疏水性、空间体积以及形成氢键或参与金属配位的能力。
因此,两条长度相同的五肽或六肽,只要氨基酸种类或排列顺序不同,整个分子的化学性质和生物识别特征就可能发生明显变化。
护肤研究中几个具有代表性的短肽已经显示出不同的作用类型:
代表性寡肽 | 主要结构特点 | 研究涉及的主要过程 |
KTTKS五肽 | 特定前胶原来源序列 | 细胞外基质相关蛋白生成 |
棕榈酰KTTKS | KTTKS连接棕榈酰基 | 皮肤分配和稳定性发生改变 |
GHK-Cu | GHK三肽与Cu(II)形成配位体系 | 金属配位及成纤维细胞调节 |
乙酰基六肽-8 | N端乙酰化、C端酰胺化六肽 | SNARE相关胞吐过程 |
2. 从序列到功能:不同寡肽为什么作用不同
2.1 KTTKS:特定短序列具有细胞外基质调节活性
KTTKS由赖氨酸-苏氨酸-苏氨酸-赖氨酸-丝氨酸(Lys-Thr-Thr-Lys-Ser,KTTKS)组成,是Ⅰ型前胶原羧基端前肽中的一段短序列。
Katayama等从Ⅰ型前胶原相关片段出发,通过逐步缩短序列发现,KTTKS仍可保持较明显的生物活性。培养的间充质细胞接触KTTKS后,Ⅰ型胶原、Ⅲ型胶原和纤维连接蛋白生成增加,并呈浓度和时间相关性,而总蛋白质合成没有同步升高。[2]
这一结果说明,KTTKS的主要生物学意义来自特定氨基酸排列形成的功能序列。
细胞外基质(extracellular matrix,ECM)由胶原、纤维连接蛋白及其他大分子组成,对真皮组织结构具有重要作用。现有经典研究较充分地支持KTTKS与ECM生成变化之间的关系,但其直接受体及完整上游信号转导过程尚未获得同等完整的因果验证。[2]
2.2 脂化:在功能序列之外改变分子的理化性质
KTTKS含有多个极性和可电离基团,整体亲水性较强。将其N端连接棕榈酰基后,可形成棕榈酰KTTKS(palmitoyl-KTTKS,Pal-KTTKS)。
其结构具有两个功能不同的部分:
棕榈酰疏水基团—KTTKS肽序列
KTTKS部分保留原来的五肽排列,棕榈酰基则增加整个分子的疏水特征,使分子的脂水分配发生改变。
脂化主要影响以下性质:
结构变化 | 相关性能变化 |
引入长链脂肪酰基 | 分子疏水性增加 |
脂水分配改变 | 与角质层脂质的相互作用发生变化 |
N端被修饰 | 对部分肽酶的敏感性可能改变 |
整体两亲性改变 | 溶解、聚集、释放及皮肤滞留行为可能随之改变 |
棕榈酰KTTKS与未修饰KTTKS的皮肤分布和稳定性差异,在后续皮肤递送研究中得到进一步验证。[3]
2.3 GHK-Cu:金属配位改变了寡肽的化学状态
GHK由甘氨酸-组氨酸-赖氨酸(Gly-His-Lys,GHK)组成。GHK中的配位基团能够与二价铜离子Cu(II)形成配合物。
基本配位关系可表示为:
GHK + Cu²⁺ ⇌ GHK-Cu(II)
这一式子表示GHK与Cu(II)之间存在配位平衡。实际溶液中的配位物种受到pH、浓度以及其他配体影响,并不是在所有条件下都保持单一结构。
Lau和Sarkar通过电位滴定和可见吸收光谱研究证实,GHK与Cu(II)在溶液中能够形成多种配位物种。[4] 后续核磁共振和电子顺磁共振研究显示,在一定pH范围内,Cu(II)可与GHK中的三个氮原子和一个氧原子参与配位。[5]
GHK-Cu因此属于肽—金属配位体系。铜离子并非简单与肽同时存在,而是参与形成新的化学状态。
在人真皮成纤维细胞实验中,Pollard等发现,GHK-Cu处理可缩短正常和放射损伤成纤维细胞的群体倍增时间;在受照射的成纤维细胞中,还观察到碱性成纤维细胞生长因子(basic fibroblast growth factor,bFGF,也称FGF2)和血管内皮生长因子(vascular endothelial growth factor,VEGF)早期生成增加。[6]
这些结果支持GHK-Cu能够影响成纤维细胞增殖和部分生长因子生成。
2.4 乙酰基六肽-8:作用研究集中在SNARE相关胞吐过程
乙酰基六肽-8(Acetyl Hexapeptide-8)是一条经过末端修饰的六肽。其氨基酸部分由谷氨酸-谷氨酸-甲硫氨酸-谷氨酰胺-精氨酸-精氨酸组成,结构常写作 Ac-EEMQRR-NH₂,其中Ac表示N端乙酰化,NH₂表示C端酰胺化。
这条肽的研究思路与KTTKS不同,主要涉及囊泡胞吐相关蛋白。
25 kDa突触体相关蛋白(synaptosomal-associated protein of 25 kDa,SNAP-25)参与可溶性N-乙基马来酰亚胺敏感因子附着蛋白受体复合体(soluble N-ethylmaleimide-sensitive factor attachment protein receptor,SNARE)的形成。SNARE复合体参与囊泡膜与细胞膜融合,是Ca²⁺依赖性神经递质胞吐的重要分子装置。
Blanes-Mira等的研究显示,乙酰基六肽-8能够干扰SNARE复合体的形成和/或稳定性,并降低实验体系中的神经递质释放。[7]
其研究所支持的作用过程为:
乙酰基六肽-8 → 干扰SNARE复合相关过程 → Ca²⁺依赖性胞吐受到抑制 → 神经递质释放下降
这一机制属于对特定蛋白复合和胞吐过程的调节,与KTTKS促进ECM相关蛋白生成不是同一种作用方式。
2.5 寡肽是否能够激活细胞信号通路
某些寡肽能够影响细胞信号和细胞功能,不同实验结果对应不同程度的机制信息:
实验结果 | 所支持的主要结论 |
某蛋白生成增加或减少 | 相关细胞功能发生变化 |
某些基因表达改变 | 转录水平发生响应 |
信号蛋白磷酸化改变 | 相关信号过程受到调节 |
直接结合实验确认靶蛋白 | 支持肽与该靶点存在直接相互作用 |
阻断靶点或基因干预后效应明显减弱 | 为靶点与下游效应之间的因果关系提供进一步证据 |
3. 从配方到靶点:寡肽为什么面临皮肤递送问题
寡肽具备细胞活性以后,外用产品还需要解决另一个问题:分子能否以完整状态接近相关作用部位。
细胞培养研究通常将肽直接加入培养液,研究的是目标细胞已经暴露于一定浓度寡肽之后发生什么变化。
外用护肤产品则从皮肤表面开始。寡肽需要先从配方中释放,然后进入角质层,在皮肤组织中继续分配和扩散。
两类实验研究的是连续过程中的不同环节。
3.1 角质层是寡肽外用递送的重要屏障
角质层细胞之间存在高度组织化的脂质区域,其中主要脂质包括神经酰胺、胆固醇和游离脂肪酸。这些细胞间脂质与角质细胞共同构成皮肤屏障的重要结构基础。[8]
多数寡肽具有以下一个或多个特征:
①含有较多酰胺和其他极性基团;
②能够形成多个氢键;
③侧链在一定pH下可能发生离子化;
④整体亲水性较高。
这些性质有利于肽在水相中存在,却不一定有利于其进入角质层脂质环境。
因此,肽链较短不能直接推导出较高的皮肤渗透能力。实际递送同时受分子大小、极性、电荷、脂溶性、构象、化学修饰和配方环境等因素影响。
3.2 脂化能够改变KTTKS在皮肤中的分布
Choi等采用全层无毛小鼠皮肤,在Franz扩散体系中比较KTTKS和棕榈酰KTTKS的稳定性与皮肤分布。
在该实验条件下,两种肽在48小时内均未达到受体液中的可定量水平。未修饰KTTKS在所分析的角质层、表皮和真皮中没有被检测到;棕榈酰KTTKS则分别在角质层、表皮和真皮中检测到 4.2 ± 0.7、2.8 ± 0.5和0.3 ± 0.1 μg/cm²。[3]
该实验直接支持的是一个明确的结构—递送关系:
在保留KTTKS核心序列的情况下,引入棕榈酰基改变了该肽在皮肤各层中的分布。
这也是脂化修饰在护肤寡肽设计中的重要意义。
3.3 同一种寡肽,配方不同,递送也可能不同
寡肽并不是从纯原料状态直接进入皮肤,而是存在于乳液、精华、凝胶或其他配方基质中。
外用递送涉及:
从配方中释放 → 在配方与角质层之间发生分配 → 在角质层及后续组织中扩散
Hoppel等研究了乙酰基六肽-8在不同乳液结构中的皮肤递送。使用猪耳皮肤进行实验时,水/油/水型复乳(water-in-oil-in-water,W/O/W)提高了乙酰基六肽-8进入皮肤的程度;总体上,富水的W/O/W和水包油型乳液(oil-in-water,O/W)的递送表现高于富油的油包水型乳液(water-in-oil,W/O)。[9]
因此,同一种寡肽在不同产品中的实际表现,不仅与原料结构有关,也与配方如何控制溶解、释放和皮肤分配有关。
3.4 “进入皮肤”与“到达靶点”不是同一个指标
外用寡肽的分布具有明确的空间层次:
皮肤表面 → 角质层 → 活性表皮 → 真皮 → 目标细胞 → 细胞内作用部位
不同作用机制对递送位置的要求并不相同。
涉及表皮细胞的作用,需要关注活性表皮中的暴露;涉及真皮成纤维细胞和ECM调节的作用,需要关注更深层皮肤中的分布;涉及细胞内蛋白复合体的机制,还会涉及细胞摄取及胞内暴露。
Kraeling等采用离体人尸体皮肤和无毛豚鼠皮肤研究乙酰基六肽-8的分布。实验使用含10%乙酰基六肽-8的O/W乳液,以2 mg/cm²施用24小时。结果显示,大部分施用肽仍留在皮肤表面并在清洗步骤中被去除;在人皮肤中,施用剂量约0.22%存在于角质层,约0.01%存在于表皮,真皮及扩散池受体液中均未检测到该六肽。[10]
这一结果对应特定浓度、配方及离体皮肤模型,不能直接代表其他乙酰基六肽-8产品的皮肤分布。
它反映出的核心问题是:分子在生化或细胞实验中具有活性,与外用后能否在对应作用位置形成足够暴露,是两个连续但不同的研究问题。
4. 稳定性决定到达皮肤中的寡肽是否仍保持完整结构
寡肽的活性通常依赖完整氨基酸序列和特定化学结构。关键肽键发生断裂、末端结构改变或重要侧链发生化学变化后,原来的分子识别能力可能随之改变。
稳定性需要从产品储存和皮肤内降解两个阶段评价。
4.1 产品中的稳定性
配方中的寡肽处于特定pH、水相环境、温度、金属离子浓度以及其他成分共同构成的体系中。
不同序列和修饰形式对水解、氧化、聚集及其他降解过程的敏感性存在差异。因此,对成品更有意义的稳定性指标是储存过程中完整目标肽含量的变化,而不是仅记录生产时的原料添加量。
初始添加量代表配方制造时加入多少原料;使用阶段的完整肽含量则反映经过储存后仍保留多少目标结构。
4.2 皮肤中的肽酶能够进一步降低完整肽浓度
皮肤中存在多种蛋白酶和肽酶,因此寡肽进入皮肤以后还可能继续发生酶促水解。
Park等建立液相色谱—串联质谱(liquid chromatography-tandem mass spectrometry,LC-MS/MS)方法研究KTTKS在大鼠皮肤匀浆中的稳定性。研究发现,KTTKS对皮肤中氨肽酶引起的肽键切割较为敏感。[11]
Choi等进一步比较KTTKS与棕榈酰KTTKS。两者在皮肤提取物和匀浆中均发生降解,但棕榈酰KTTKS在该实验条件下表现出较高稳定性;加入蛋白酶抑制剂后,两种肽的稳定性均明显提高。[3]
棕榈酰化因此同时影响了两个与外用作用有关的性质:皮肤分配和酶学稳定性。
5. 从分子机制到人体功效:不同实验回答不同问题
寡肽研究通常包括分子实验、细胞实验、离体皮肤研究和人体功效研究。这些研究位于同一过程的不同阶段。
研究层级 | 主要回答的问题 |
分子实验 | 肽是否与特定分子或蛋白过程发生作用 |
细胞实验 | 细胞接触肽以后发生哪些功能变化 |
离体皮肤实验 | 外用后肽进入哪些皮肤层、保留多少 |
最终配方人体研究 | 实际使用后能否产生可测量的皮肤改善 |
5.1 棕榈酰KTTKS的人体功效研究
Robinson等开展了一项12周、双盲、安慰剂对照、左右半脸随机研究,共纳入93名35~55岁的白人女性。
研究比较基础保湿产品与在相同基础配方中含3 ppm棕榈酰KTTKS的测试产品。定量图像分析和专家图像评价均显示,含棕榈酰KTTKS的测试产品相较基础配方在皱纹和细纹指标方面获得改善。[12]
不同产品即使使用相同寡肽,也可能因浓度、配方结构、稳定性和皮肤递送差异而产生不同结果。
5.2 乙酰基六肽-8的人体功效研究
Wang等开展随机、安慰剂对照研究,共纳入60名中国受试者,按照3∶1接受乙酰基六肽-8或安慰剂处理,每日使用两次,持续4周。
临床评价和皮肤硅胶复制品分析结果显示,乙酰基六肽-8组的眼周皱纹及皮肤粗糙度相关指标得到改善。[13]
这项研究支持特定测试方案具有抗皱功效。乙酰基六肽-8的三个研究层次应分别理解:
①SNARE相关实验
说明该六肽在相应实验体系中能够干扰胞吐相关过程。[7]
②离体皮肤研究
说明特定O/W配方条件下该肽主要分布于角质层,进入表皮的比例较低,真皮中未检出。[10]
③人体功效研究说明特定使用方案下观察到了眼周皱纹相关指标改善。[13]
三类结果共同构成对该成分的研究资料,但人体抗皱结果本身并不能确认SNARE作用过程中的各个分子步骤已经在人体皮肤中逐一发生。
6. 如何理解同为“寡肽”却产生不同功效
护肤寡肽之间的差异主要来自三个连续层面。
6.1 第一层:结构决定潜在作用
氨基酸排列和化学修饰决定分子的化学表面以及能够参与的分子相互作用。
KTTKS与ECM相关蛋白生成有关;GHK-Cu属于金属配位肽体系并影响成纤维细胞反应;乙酰基六肽-8涉及SNARE相关胞吐过程。[2][4-7]
6.2 第二层:递送决定活性分子能够到达哪里
结构产生潜在活性以后,外用效果还受到配方释放和皮肤屏障影响。
KTTKS经过棕榈酰化后,在离体小鼠皮肤中的分布和稳定性发生变化;乙酰基六肽-8在不同乳液中的皮肤递送也存在明显差异。[3][9]
6.3 第三层:靶点决定需要达到什么位置
寡肽所调节的生物过程位于不同组织和细胞位置。
作用涉及角质层或表皮、活性表皮细胞、真皮及成纤维细胞、细胞表面靶点以及细胞内部蛋白过程时,对递送深度和完整肽暴露量的要求并不相同。
当递送位置与作用位置相匹配时,体外机制向外用功效转化的生物学合理性才更充分。
7. 评价寡肽护肤品时应关注哪些信息
对于标注一种或多种寡肽的产品,可以按照以下顺序查看相关技术资料:
评价内容 | 需要关注的信息 | 所回答的问题 |
分子身份 | 具体序列、末端修饰、脂化或金属配位状态 | 实际使用的是哪一种肽 |
生物活性 | 蛋白生成、基因表达、酶或蛋白过程变化 | 肽接触细胞后能够产生什么反应 |
机制证据 | 直接靶点、结合、阻断或信号过程数据 | 已经确认到哪一个作用环节 |
配方稳定性 | 储存后完整目标肽含量 | 使用阶段还能保留多少完整分子 |
皮肤递送 | 角质层、表皮和真皮分布 | 外用后能够进入什么位置 |
靶点匹配 | 皮肤分布与作用位置是否一致 | 递送是否支持所提出的机制 |
人体研究 | 最终配方、使用周期、对照条件和测量指标 | 产品实际使用后是否产生可测量效果 |
8. 寡肽结构、靶点作用与皮肤递送相关代表化学品分类及科研应用
表1 细胞外基质、胶原调节与结构修饰相关寡肽
分类 | Cas编号 | 阿拉丁货号 | 名称 | 规格或纯度 | 产品特色与应用 |
免疫球蛋白来源脂肽 | 221227-05-0 | Pal-Gly-Gln-Pro-Arg-OH游离态 | ≥98% | 用于免疫球蛋白来源肽、炎症相关细胞响应、脂化肽皮肤分配及配方递送研究。 | |
胶原相关信号脂肽 | 623172-56-5 | Palmitoyl tripeptide-5 biTFA | ≥98% | 用于胶原相关信号、成纤维细胞基质合成、脂肽构象及皮肤递送研究。 | |
三肽序列盐型 | 72957-37-0 | 肝细胞生长因子乙酸盐 | ≥98% | 用于甘氨酸—组氨酸—赖氨酸三肽序列、盐型差异、成纤维细胞反应及细胞外基质更新研究。 | |
细胞外基质信号脂肽 | 147732-56-7 | 棕榈酰三肽-1 | ≥97% | 用于脂化三肽结构、成纤维细胞反应、细胞外基质相关变化、角质层分配及载体递送研究。 | |
前胶原来源功能五肽 | 149128-48-3 | Pentapeptide-4 | _ | 用于五肽序列活性、成纤维细胞反应、Ⅰ/Ⅲ型胶原与纤维连接蛋白生成及脂化前后性质比较研究。 |
表2 神经调节、胞吐与肤色相关功能寡肽
分类 | Cas编号 | 阿拉丁货号 | 名称 | 规格或纯度 | 产品特色与应用 |
脑啡肽模拟型神经调节肽 | 64963-01-5 | [D-Ala²]亮氨酸脑啡肽 | Moligand™, ≥98% | 用于脑啡肽受体活性、神经肽酶解稳定性、神经信号及神经调节型抗皱肽对照研究。 | |
神经递质释放相关模拟肽 | 868844-74-0 | 乙酰八胜肽-3(醋酸盐) | ≥99% | 用于神经递质囊泡释放相关蛋白相互作用、肽序列活性、细胞摄取及神经调节型抗皱机制比较研究。 | |
肤色调节相关四肽 | 1036207-61-0 | Tetrapeptide-30 | ≥98% | 用于肤色相关细胞信号、色素形成过程、肽稳定性及皮肤细胞响应研究。 | |
黑色素生成相关信号肽 | 158563-45-2 | 九肽-1 | ≥98% | 用于黑色素生成相关信号、黑色素细胞响应、序列特异性及细胞靶点研究。 | |
神经递质释放相关模拟肽 | 616204-22-9 | 六胜肽 | ≥98% | 用于神经递质囊泡释放相关蛋白复合过程、胞吐调节、细胞摄取及皮肤分层分布研究。 | |
神经肌肉信号相关模拟肽 | 823202-99-9 | 类蛇毒肽 二乙酸盐 | ≥98% | 用于神经肌肉信号相关模拟肽、受体作用、细胞反应及表情纹相关机制研究。 |
表3 寡肽脂化、铜配位与皮肤递送研究相关材料
分类 | Cas编号 | 阿拉丁货号 | 名称 | 规格或纯度 | 产品特色与应用 |
铜配位原料 | 10125-13-0 | 氯化铜,二水 | ACS | 用于甘氨酸—组氨酸—赖氨酸三肽与二价铜络合、配位比例筛选及不同铜源对照研究。 | |
铜配位原料 | 7758-99-8 | 硫酸铜,五水 | 用于细胞培养, ≥98% | 用于三肽与铜离子配位、铜依赖性细胞与细胞外基质反应及铜肽相关对照研究。 | |
脂质双层膜调节组分 | 57-88-5 | 胆固醇 | 无动物源, 低内毒素, 用于细胞培养, ≥99% | 用于脂质体膜流动性与稳定性调节、角质层脂质模型、寡肽载体包载及释放研究。 | |
天然磷脂载体材料 | 8002-43-5 | 磷脂 来自向日葵(非转基因) | 天然, with ≥60% phosphatidylcholine | 用于脂质体和磷脂囊泡构建、亲水性寡肽包载、脂化肽膜结合、释放及皮肤递送研究。 | |
肽链脂质化原料 | 57-10-3 | 棕榈酸 | 适用于合成, Moligand™ | 用于短肽氨基端棕榈酰化、脂化反应条件筛选及脂化前后亲疏水性、稳定性与皮肤分配研究。 | |
铜配位原料 | 6046-93-1 | 乙酸铜 一水合物 | ≥99% | 用于三肽与二价铜络合、配位条件筛选、铜肽制备及不同铜源比较研究。 | |
共溶与皮肤分配介质 | 57-55-6 | 1,2-丙二醇 | ACS, ≥99.5% | 用于寡肽共溶、角质层水合、配方释放及皮肤分配条件研究。 | |
组成明确的磷脂膜材料 | 63-89-8 | 1,2-二棕榈酰-sn-甘油-3-磷酰胆碱(DPPC) | Moligand™, ≥99% | 用于组成明确的磷脂双层、脂质体与模型膜构建,研究寡肽包载、膜相互作用、释放及皮肤递送。 |
注:以上为阿拉丁代表性科研相关产品,具体用途应结合产品规格、批次COA及目标反应或评价体系确定。更多产品规格、级别和COA信息可用“品名/CAS/货号”在阿拉丁官网检索。
参考文献
[1] IUPAC-IUB Joint Commission on Biochemical Nomenclature. Nomenclature and symbolism for amino acids and peptides (Recommendations 1983). Pure and Applied Chemistry. 1984;56(5):595-624. doi:10.1351/pac198456050595.
[2] Katayama K, Armendariz-Borunda J, Raghow R, Kang AH, Seyer JM. A pentapeptide from type I procollagen promotes extracellular matrix production. Journal of Biological Chemistry. 1993;268(14):9941-9944.
[3] Choi YL, Park EJ, Kim E, Na DH, Shin YH. Dermal stability and in vitro skin permeation of collagen pentapeptides (KTTKS and palmitoyl-KTTKS). Biomolecules & Therapeutics. 2014;22(4):321-327. doi:10.4062/biomolther.2014.053.
[4] Lau SJ, Sarkar B. The interaction of copper(II) and glycyl-L-histidyl-L-lysine, a growth-modulating tripeptide from plasma. Biochemical Journal. 1981;199(3):649-656. doi:10.1042/bj1990649.
[5] Laussac JP, Haran R, Sarkar B. N.m.r. and e.p.r. investigation of the interaction of copper(II) and glycyl-L-histidyl-L-lysine, a growth-modulating tripeptide from plasma. Biochemical Journal. 1983;209(2):533-539. doi:10.1042/bj2090533.
[6] Pollard JD, Quan S, Kang T, Koch RJ. Effects of copper tripeptide on the growth and expression of growth factors by normal and irradiated fibroblasts. Archives of Facial Plastic Surgery. 2005;7(1):27-31. doi:10.1001/archfaci.7.1.27.
[7] Blanes-Mira C, Clemente J, Jodas G, et al. A synthetic hexapeptide (Argireline) with antiwrinkle activity. International Journal of Cosmetic Science. 2002;24(5):303-310. doi:10.1046/j.1467-2494.2002.00153.x.
[8] Weerheim A, Ponec M. Determination of stratum corneum lipid profile by tape stripping in combination with high-performance thin-layer chromatography. Archives of Dermatological Research. 2001;293(4):191-199. doi:10.1007/s004030100212.
[9] Hoppel M, Reznicek G, Kählig H, Kotisch H, Resch GP, Valenta C. Topical delivery of acetyl hexapeptide-8 from different emulsions: influence of emulsion composition and internal structure. European Journal of Pharmaceutical Sciences. 2015;68:27-35. doi:10.1016/j.ejps.2014.12.006.
[10] Kraeling MEK, Zhou W, Wang P, Ogunsola OA. In vitro skin penetration of acetyl hexapeptide-8 from a cosmetic formulation. Cutaneous and Ocular Toxicology. 2015;34(1):46-52. doi:10.3109/15569527.2014.894521.
[11] Park EJ, Kim MS, Choi YL, Shin YH, Lee HS, Na DH. Liquid chromatography-tandem mass spectrometry to determine the stability of collagen pentapeptide (KTTKS) in rat skin. Journal of Chromatography B. 2012;905:113-117. doi:10.1016/j.jchromb.2012.08.010.
[12] Robinson LR, Fitzgerald NC, Doughty DG, Dawes NC, Berge CA, Bissett DL. Topical palmitoyl pentapeptide provides improvement in photoaged human facial skin. International Journal of Cosmetic Science. 2005;27(3):155-160. doi:10.1111/j.1467-2494.2005.00261.x.
[13] Wang Y, Wang M, Xiao S, Pan P, Li P, Huo J. The anti-wrinkle efficacy of argireline, a synthetic hexapeptide, in Chinese subjects: a randomized, placebo-controlled study. American Journal of Clinical Dermatology. 2013;14(2):147-153. doi:10.1007/s40257-013-0009-9.
更多相关文章,详见下方:
4-MSK 的双靶向美白机制:抑制黑色素生成与减少表皮色素滞留
α-硫辛酸的皮肤抗老机制:ALA/DHLA 氧化还原循环、抗氧化网络与胶原 AGEs 形成调控
谷胱甘肽外用护肤机制解析:细胞氧化还原调节、皮肤递送难点与 SLNs 递送策略
从角质层脂质屏障理解神经酰胺:保湿与屏障修护机制、成分选择与配方研究思路
海藻糖(Trehalose)的性质特征、制备工艺与应用技术指南
细胞培养包被体系中玻连蛋白、层粘连蛋白与纤连蛋白的适用性比较


 危险品化学品经营许可证(带存储)