
补骨脂酚并非“植物A醇”:化学结构、抗老机制及其与视黄醇的功能异同
补骨脂酚并非“植物A醇”:化学结构、抗老机制及其与视黄醇的功能异同
补骨脂酚(Bakuchiol)和A醇(Retinol)具有明显不同的化学结构,也不属于同一类活性成分。补骨脂酚属于酚性杂萜类化合物,A醇则属于维A类化合物(retinoids)。两者之所以经常被放在一起比较,主要源于一个有意义的研究现象:不同的分子结构和作用路径,可以在细胞外基质、表皮状态以及皱纹、色素沉着等部分抗老结果上产生交集。[1][3][10]
1. 补骨脂酚的结构决定了哪些基本性能?
1.1 补骨脂酚是一种酚性杂萜类分子
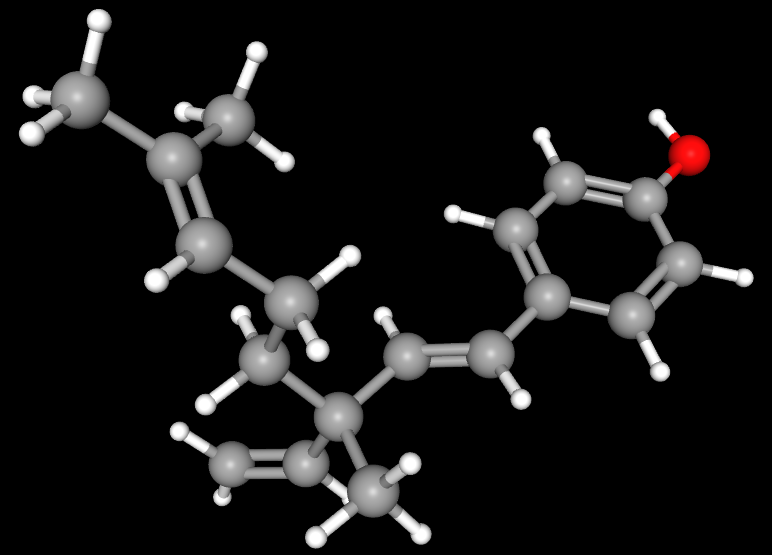
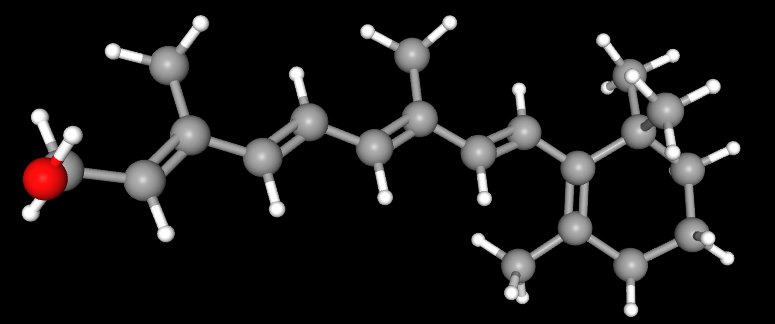
补骨脂酚分子式为 C₁₈H₂₄O。其结构具有一个带酚羟基的芳香环,以及一段含多个不饱和键的疏水性萜类侧链。[1] 与之相比,A醇分子式为 C₂₀H₃₀O,具有典型维A类的环状结构、共轭多烯链和末端醇基。
1.2 酚性结构赋予补骨脂酚直接参与自由基反应的能力
补骨脂酚的酚羟基能够向部分自由基提供氢,使高反应性的自由基转化为相对稳定的产物;产生的酚氧自由基又能够通过电子离域得到一定程度的稳定。
这一过程可简化表示为:
Bakuchiol–OH + R· → Bakuchiol–O· + RH
Adhikari等人的结构—活性研究显示,补骨脂酚能够清除多种氧化性自由基,并减轻实验体系中的脂质和蛋白氧化;研究同时提示,其不饱和萜链也参与自由基中间体的稳定。[2]
2. 补骨脂酚如何发挥抗老作用?
现有研究显示,补骨脂酚的皮肤作用主要涉及三个彼此关联的方面:氧化和炎症相关反应、细胞外基质稳态以及表皮组织稳态。[3][4]
2.1 降低氧化压力,并调节炎症相关反应
紫外线(ultraviolet,UV)等外界因素可增加皮肤氧化应激,并激活一系列炎症及基质降解相关信号。长期反复发生时,这些变化会影响细胞功能以及真皮细胞外基质的稳定。[5]
补骨脂酚一方面具有直接的自由基清除能力;另一方面,在人体真皮成纤维细胞等实验模型中,还表现出降低前列腺素E₂(prostaglandin E₂,PGE₂)、巨噬细胞迁移抑制因子(macrophage migration inhibitory factor,MIF)等炎症相关指标的作用。[2][4]
这也是补骨脂酚区别于单纯抗氧化剂的地方之一:实验数据显示,它不仅具有化学层面的自由基反应能力,还能够影响细胞层面的生物学过程。[4]
2.2 抗皱的核心在于改善ECM稳态,而不是简单“增加胶原”
细胞外基质(extracellular matrix,ECM)构成真皮的重要结构基础,其中包括胶原、弹性纤维、纤连蛋白和糖胺聚糖等。
皮肤光老化过程中,ECM并不是静止不变地减少,而是其合成、降解和修复之间的动态平衡发生改变。
人体皮肤研究显示,UV照射可诱导多种基质金属蛋白酶(matrix metalloproteinases,MMPs)增加,促进胶原和弹性纤维等ECM结构降解;反复UV暴露造成的ECM损伤若不能被充分修复,可逐渐累积。[5]
皮肤抗老适合从下面这组动态关系理解:
ECM合成与重建 ⇄ ECM降解与损伤
当降解持续超过有效重建,胶原网络的完整性和真皮支撑能力下降,逐渐表现为皱纹和皮肤结构改变。
补骨脂酚的作用正涉及这一平衡。
2014年的比较研究显示,在全层皮肤替代模型的基因表达分析中,补骨脂酚与视黄醇对部分皮肤老化相关基因表现出相似的调控趋势,其中补骨脂酚可上调Ⅰ型和Ⅳ型胶原相关表达;在成熟成纤维细胞模型中,还观察到Ⅲ型胶原生成增加。[3]
另一项人真皮正常成纤维细胞(ESF-1)研究观察到,补骨脂酚可提高Ⅰ型胶原、Ⅲ型胶原以及金属蛋白酶组织抑制因子-1和-2(tissue inhibitor of metalloproteinases-1/2,TIMP-1/TIMP-2)的mRNA表达,同时降低MMP-1 mRNA表达。由于该研究属于体外细胞实验,这些结果主要用于说明潜在的ECM调控机制。[12]
2022年的研究进一步发现,补骨脂酚能够影响I型胶原相关蛋白COL1A1、VII型胶原相关蛋白COL7A1以及纤连蛋白(fibronectin,FN),并表现出促进表皮再生等作用。[4]
2.3 补骨脂酚与皮肤屏障
皮肤通透屏障主要位于角质层,由角质细胞及其周围高度有序的细胞间脂质共同构成,其中神经酰胺、胆固醇和游离脂肪酸是重要组成部分。
补骨脂酚本身并不是这些结构脂质。目前的研究也不足以证明外用补骨脂酚能够像补充神经酰胺等屏障脂质一样,直接重建角质层脂质层状结构。
补骨脂酚与屏障更明确的联系,主要发生在表皮水分运输和表皮组织稳态层面。
2014年的研究观察到补骨脂酚能够提高水通道蛋白3(aquaporin-3,AQP3)相关表达。[3] AQP3主要表达于活性表皮的角质形成细胞,可运输水和甘油。AQP3缺失小鼠出现角质层甘油水平下降、皮肤含水量和弹性降低,以及屏障损伤后的恢复延迟;补充甘油能够改善这些异常。[6]
同时,2022年的皮肤模型研究观察到补骨脂酚具有促进表皮再生和再上皮化相关过程的作用。[4]
补骨脂酚屏障相关作用进一步区分如下表:
作用层面 | 现有证据 |
直接补充神经酰胺、胆固醇等屏障脂质 | 缺乏直接依据 |
直接重建角质层脂质层状结构 | 缺乏充分人体证据 |
提高AQP3相关表达;AQP3参与水/甘油运输 | 有实验研究支持 |
支持角质形成细胞及表皮稳态 | 有实验模型支持 |
支持表皮再生过程 | 有实验模型支持 |
3. A醇的作用机制与补骨脂酚有何不同?
3.1 A醇经代谢转化形成具有受体活性的维A酸
A醇即视黄醇,属于维A类化合物。在人体角质形成细胞中,视黄醇可经过酶促氧化形成视黄醛,视黄醛进一步氧化形成维A酸。相关研究表明,视黄醛是视黄醇向维A酸转化过程中的重要中间体。[7]
其经典代谢关系为:
视黄醇 → 视黄醛 → 维A酸
角质形成细胞研究进一步显示,视黄醇的部分生物学活性依赖其代谢形成全反式维A酸(ATRA),随后通过核内维A受体信号调节细胞反应。[8] A醇的经典作用具有明确的代谢转化—核受体调控特征。
3.2 全反式维A酸通过RAR/RXR异二聚体调节基因转录
全反式维A酸(ATRA)的重要作用靶点是维A酸受体(RAR)。RAR可与维A X受体(RXR)形成异二聚体,并识别DNA上的维A酸反应元件(RARE),从而调节相关基因的转录。[9]
成人角质形成细胞研究表明,RAR/RXR异二聚体是介导维A类信号的重要功能形式。在这一过程中,ATRA主要与RAR结合,随后通过RAR/RXR异二聚体调控相应基因的转录活动。[9]
A醇的经典作用路径可以概括为:
视黄醇 → 视黄醛 → 全反式维A酸(ATRA) → ATRA与维A酸受体(RAR)结合 → RAR/RXR异二聚体调节基因转录 → 表皮及真皮组织重塑
这一过程可影响角质形成细胞的增殖与分化,并参与胶原等细胞外基质(ECM)的代谢调节,是维A类成分改善皮肤光老化的重要机制基础。[5][8][9]
4. 补骨脂酚与A醇的核心差异:不同机制如何产生部分相似结果?
4.1 人体研究显示两者在部分抗老表现上存在相似性
2019年,《英国皮肤病学杂志》发表了一项随机、双盲临床研究,共纳入44名受试者,研究持续12周。补骨脂酚组使用0.5%补骨脂酚,每日2次;视黄醇组使用0.5%视黄醇,每日1次。[10]
研究结果显示,12周后两组的皱纹表面积和色素沉着均较基线显著改善,在这两项指标的改善程度上,两组之间未观察到统计学显著差异。耐受性方面,视黄醇组报告的皮肤脱屑和刺痛较多。[10]
这项研究表明,在该研究设定的使用方式和观察周期内,补骨脂酚与视黄醇均表现出改善面部皱纹和色素沉着的作用,同时补骨脂酚表现出较好的皮肤耐受性。[10]
4.2 人体对照研究进一步支持补骨脂酚的抗老作用
2026年发表的一项随机、双盲、基质对照临床研究纳入73名中国受试者。试验组使用0.5%补骨脂酚,每日2次,持续84天;对照组使用不含补骨脂酚的相同基质配方。[11]
研究结果显示,与基质对照组相比,补骨脂酚组在皱纹严重程度、色素沉着、皮肤光泽和毛孔外观等指标上均获得显著改善,进一步支持了补骨脂酚本身改善部分面部老化表征的作用。[11]
结合细胞和皮肤模型研究,现有证据呈现出相互支持的方向:实验研究显示补骨脂酚能够影响氧化应激、炎症相关反应、胶原及其他细胞外基质成分,并参与表皮组织稳态调节;人体研究则进一步观察到皱纹和部分光老化表征的改善。[3][4][10][11]
补骨脂酚改善色素沉着同样具有临床研究支持。[10][11] 但目前针对人体皮肤色素调节的具体分子机制研究相对有限,因此现阶段更适合将色素沉着改善作为已有临床证据支持的作用表现。
4.3 补骨脂酚与A醇的差异
补骨脂酚与A醇在部分抗老结果上存在相似性,但两者从化学结构、代谢方式到细胞作用机制均存在明显差异。
比较维度 | 补骨脂酚 | A醇 |
化学类别 | 酚性杂萜类化合物 | 维A类化合物 |
核心结构特点 | 酚羟基、芳香环和不饱和萜类侧链 | β-紫罗兰酮环、共轭多烯链和末端醇基 |
是否属于维A类 | 否 | 是 |
主要作用特征 | 具有直接抗氧化活性,并可影响炎症相关反应、成纤维细胞功能、细胞外基质及表皮再生等过程 | 经维A代谢形成活性代谢物,通过核受体介导的基因转录调控影响表皮和真皮组织 |
与维A酸的关系 | 不涉及该代谢过程 | 可经视黄醛进一步代谢形成维A酸 |
核受体作用 | 尚无证据表明其复制A醇的经典RAR通路 | 形成的全反式维A酸与维A酸受体结合,并通过维A酸受体/维A X受体异二聚体调节相关基因转录 |
细胞外基质作用 | 可影响多种胶原、纤连蛋白以及细胞外基质相关过程 | 通过维A类信号调节胶原及其他细胞外基质的合成、降解与组织重塑 |
表皮相关作用 | 有水通道蛋白3相关表达变化及促进表皮再生的实验依据 | 可影响角质形成细胞增殖、分化及表皮结构 |
直接抗氧化作用 | 具有较明确的结构基础和实验依据 | 直接抗氧化并不是其经典抗光老化机制的主要内容 |
临床抗老证据 | 已有人体研究支持皱纹、色素沉着等改善 | 具有较长期的人体、组织学及机制研究积累 |
耐受性 | 2019年比较研究中脱屑和刺痛较少 | 同一研究中脱屑和刺痛报告较多 |
5. 不同作用机制,为何会产生部分相似的抗老结果?
补骨脂酚与A醇的比较说明,相似的护肤结果,并不意味着需要相同的分子结构或作用机制。
皮肤老化并不是由某一个单独通路决定,而是表皮细胞状态、氧化应激、炎症反应、细胞外基质合成与降解等多种变化长期共同作用的结果。皱纹、粗糙和组织结构改变,是这些生物学过程最终在皮肤组织层面的综合表现。
不同成分可以从不同位置干预这一过程。
A醇通过代谢形成维A酸,并由维A酸受体介导基因转录调控,进而影响表皮和真皮组织重塑;补骨脂酚不进入这条维A代谢途径,而是通过自身的抗氧化性质以及对炎症相关反应、细胞功能和细胞外基质相关过程的调节,影响皮肤组织状态。[2][3][4][8][9]
两条路径并不相同,但最终都可以作用于皮肤老化过程中共同的组织基础——表皮状态和细胞外基质稳态。当这些下游过程得到改善时,最终观察到的皱纹、肤质和部分色素表现就可能出现相似方向的变化。[3][10][11]
这也解释了补骨脂酚常被称为A醇“功能类似物”的真正含义:相似的是部分下游功能和临床表现,而不是分子结构和作用机制。
补骨脂酚与A醇之间作用起点不同,调控路径不同,但部分组织效应与抗老结果发生汇合。

6. 补骨脂酚、维A类及皮肤屏障机制研究相关代表化学品
表1. 补骨脂酚及补骨脂来源成分
分类 | Cas编号 | 阿拉丁货号 | 名称 | 规格或纯度 | 产品特色与应用 |
补骨脂酚实验溶液 | 10309-37-2 | 补骨脂酚 | 10mM in DMSO | 预配浓度溶液;用于补骨脂酚细胞活性、氧化应激、炎症相关反应、成纤维细胞及细胞外基质相关实验 | |
补骨脂酚分析标准品 | 10309-37-2 | 补骨脂酚 | 分析标准品 | 用于补骨脂酚定性定量、色谱方法建立、含量测定、纯度评价及补骨脂来源样品分析 | |
线型呋喃香豆素 | 66-97-7 | 补骨脂素 | ≥98% | 补骨脂来源代表性线型呋喃香豆素;用于来源成分鉴别、含量测定、光敏性及紫外光化学反应研究 | |
角型呋喃香豆素 | 523-50-2 | 当归素 | Moligand™, ≥98% | 补骨脂来源角型呋喃香豆素;用于补骨脂素异构体比较、来源成分分析、光化学特征及紫外响应研究 | |
香豆雌酚类天然产物 | 18642-23-4 | 补骨脂定 | ≥98%(HPLC) | 补骨脂来源香豆雌酚类成分;用于天然产物成分谱、色谱定量、结构鉴定及补骨脂来源活性成分比较研究 |
表2. 维A代谢链、维A酸及酯类衍生物
分类 | Cas编号 | 阿拉丁货号 | 名称 | 规格或纯度 | 产品特色与应用 |
醇型维A类—维A代谢前体 | 68-26-8 | 视黄醇 | Moligand™, ≥95% | 维A代谢链代表性醇型成分;用于视黄醇代谢、角质形成细胞响应、表皮重塑及与补骨脂酚的抗老机制比较研究 | |
醛型维A类—代谢中间体 | 116-31-4 | 全反式视黄醛 | Moligand™, ≥98% | 视黄醇向维A酸转化过程中的醛型中间体;用于维A代谢转化、醛型维A活性及皮肤细胞响应研究 | |
全反式维A酸—维A酸受体配体 | 302-79-4 | 维生素A酸 | Moligand™, ≥98% | 维A酸受体信号研究代表化合物;用于核受体介导的转录调控、角质形成细胞分化及细胞外基质重塑研究 | |
9-顺式维A酸—双受体配体 | 5300-03-8 | 9-顺式视黄酸 | Moligand™, ≥98%(HPLC) | 可与维A酸受体和维A X受体结合;用于维A酸异构体、受体配体选择性及核受体转录调控研究 | |
短链视黄醇乙酸酯 | 127-47-9 | 醋酸维生素A | PharmPure™, USP, 欧洲药典(Ph.Eur) | 药典规格视黄醇乙酸酯;用于维A酯质量研究、含量测定、稳定性评价及酯水解转化研究 | |
短链视黄醇丙酸酯 | 7069-42-3 | 视黄基丙酸酯 | ≥98%, mixture of isomers,stabilized with BHT,~2500 U/mg | 含稳定体系的视黄醇丙酸酯异构体混合物;用于维A酯稳定性、异构化与降解监测及不同视黄醇酯结构比较研究 | |
长链视黄醇棕榈酸酯 | 79-81-2 | 维生素A棕榈酸酯 | 1,700,000 USP units /g | 脂溶性长链视黄醇酯;用于维A酯储存形式、酯水解转化、油相体系稳定性及维A衍生物比较研究 | |
维A酸酯类衍生物 | 893412-73-2 | 羟基频哪酮视黄酸酯 | ≥99% | 维A酸酯化衍生物;用于维A酸衍生物结构—活性关系、细胞抗老指标、稳定性及配方递送相关研究 |
表3. 角质层脂质与表皮屏障相关成分
分类 | Cas编号 | 阿拉丁货号 | 名称 | 规格或纯度 | 产品特色与应用 |
植物鞘氨醇型神经酰胺 | 34354-88-6 | N-硬脂酰植物鞘氨醇 | ≥98% | 神经酰胺类角质层脂质;用于神经酰胺分子排列、脂质层状结构、角质层模型及屏障脂质重构研究 | |
鞘脂长链碱—植物鞘氨醇 | 554-62-1 | D-ribo-植物鞘氨醇 | ≥98% | 神经酰胺相关鞘脂长链碱;用于鞘脂代谢、神经酰胺相关研究、角质形成细胞成熟及表皮屏障形成研究 | |
角质层甾醇脂质 | 57-88-5 | 胆固醇 | 用于细胞培养, ≥99%(GC) | 角质层主要脂质类别之一;用于神经酰胺—胆固醇—游离脂肪酸复合体系、脂质相行为及皮肤屏障模型研究 | |
C16饱和游离脂肪酸 | 57-10-3 | 棕榈酸 | BioReagent, ≥99% | 十六碳饱和脂肪酸;用于角质层游离脂肪酸组成、脂肪酸链长效应、脂质排列及屏障模型研究 | |
C18饱和游离脂肪酸 | 57-11-4 | 硬脂酸 | Moligand™, C18:65% | 十八碳饱和脂肪酸;用于长链游离脂肪酸组成、碳链长度与脂质相行为及角质层脂质模型研究 | |
ω-6多不饱和必需脂肪酸 | 60-33-3 | 亚油酸 | Moligand™, ≥99%(GC) | 十八碳二烯型必需脂肪酸;用于酰基神经酰胺相关代谢、表皮脂质代谢、皮肤模型脂质稳态及屏障形成研究 |
注:以上为阿拉丁代表性科研相关产品,具体用途应结合产品规格、批次COA及目标反应或评价体系确定。更多产品规格、级别和COA信息可用“品名/CAS/货号”在阿拉丁官网检索。
参考文献
[1] National Center for Biotechnology Information. PubChem Compound Summary: (+)-Bakuchiol, CID 5468522; Retinol, CID 445354. PubChem, National Library of Medicine.
[2] Adhikari S, Joshi R, Patro BS, et al. Antioxidant activity of bakuchiol: experimental evidences and theoretical treatments on the possible involvement of the terpenoid chain. Chemical Research in Toxicology. 2003;16(9):1062-1069. doi:10.1021/tx034082r.
[3] Chaudhuri RK, Bojanowski K. Bakuchiol: a retinol-like functional compound revealed by gene expression profiling and clinically proven to have anti-aging effects. International Journal of Cosmetic Science. 2014;36(3):221-230. doi:10.1111/ics.12117.
[4] Bluemke A, Ring AP, Immeyer J, et al. Multidirectional activity of bakuchiol against cellular mechanisms of facial ageing—Experimental evidence for a holistic treatment approach. International Journal of Cosmetic Science. 2022;44(3):377-393. doi:10.1111/ics.12784.
[5] Fisher GJ, Datta SC, Talwar HS, et al. Molecular basis of sun-induced premature skin ageing and retinoid antagonism. Nature. 1996;379(6563):335-339. doi:10.1038/379335a0.
[6] Hara M, Verkman AS. Glycerol replacement corrects defective skin hydration, elasticity, and barrier function in aquaporin-3-deficient mice. Proceedings of the National Academy of Sciences of the United States of America. 2003;100(12):7360-7365. doi:10.1073/pnas.1230416100.
[7] Siegenthaler G, Saurat JH, Ponec M. Retinol and retinal metabolism. Relationship to the state of differentiation of cultured human keratinocytes. Biochemical Journal. 1990;268(2):371-378. doi:10.1042/bj2680371.
[8] Kurlandsky SB, Xiao JH, Duell EA, Voorhees JJ, Fisher GJ. Biological activity of all-trans retinol requires metabolic conversion to all-trans retinoic acid and is mediated through activation of nuclear retinoid receptors in human keratinocytes. Journal of Biological Chemistry. 1994;269(52):32821-32827.
[9] Xiao JH, Durand B, Chambon P, Voorhees JJ. Endogenous retinoic acid receptor (RAR)-retinoid X receptor (RXR) heterodimers are the major functional forms regulating retinoid-responsive elements in adult human keratinocytes. Journal of Biological Chemistry. 1995;270(7):3001-3011. doi:10.1074/jbc.270.7.3001.
[10] Dhaliwal S, Rybak I, Ellis SR, et al. Prospective, randomized, double-blind assessment of topical bakuchiol and retinol for facial photoageing. British Journal of Dermatology. 2019;180(2):289-296. doi:10.1111/bjd.16918.
[11] Khan ZEH, Chaudhuri RK, Dulai A, et al. Prospective, Double-Blind, Vehicle-Controlled Assessment of Topical Bakuchiol on Photoaging in a Chinese Population. Journal of Cosmetic Dermatology. 2026;25(6):e71000. doi:10.1111/jocd.71000.
[12] Yu Q, Zou HM, Wang S, Xu YM, Li JM, Zhang N. [Regulative effect of bakuchiol on ESF-1 cells anti-aging gene]. Zhong Yao Cai. 2014;37(4):632-635. PMID:25345139.
更多相关文章,详见下方:
4-MSK 的双靶向美白机制:抑制黑色素生成与减少表皮色素滞留
α-硫辛酸的皮肤抗老机制:ALA/DHLA 氧化还原循环、抗氧化网络与胶原 AGEs 形成调控
谷胱甘肽外用护肤机制解析:细胞氧化还原调节、皮肤递送难点与 SLNs 递送策略
从角质层脂质屏障理解神经酰胺:保湿与屏障修护机制、成分选择与配方研究思路
海藻糖(Trehalose)的性质特征、制备工艺与应用技术指南
细胞培养包被体系中玻连蛋白、层粘连蛋白与纤连蛋白的适用性比较


 危险品化学品经营许可证(带存储)