
融合蛋白标签切除:常用蛋白酶的催化机制、识别特异性与选择策略
融合蛋白标签切除:常用蛋白酶的催化机制、识别特异性与选择策略
融合标签可提高重组蛋白的表达、溶解和纯化效率,但也可能影响目标蛋白的结构、活性及相互作用。根据识别序列、催化类型和反应条件选择切割酶,是获得接近天然状态目标蛋白的关键。
关键词:融合蛋白;标签切除;TEV蛋白酶;HRV 3C蛋白酶;肠激酶;凝血酶;Factor Xa;SUMO蛋白酶;识别序列;重组蛋白纯化
1 融合蛋白标签切除的技术原理与应用需求
1.1 融合标签的作用
His标签、GST标签、MBP标签和SUMO标签等可为重组蛋白提供亲和纯化位点,部分标签还可提高目标蛋白的表达量、溶解性或折叠稳定性。标签通常连接于目标蛋白的N端或C端,并在标签与目标蛋白之间设置蛋白酶切割位点,以便在表达和纯化后去除标签。
1.2 标签切除的技术原理
标签切除蛋白酶通过识别特定氨基酸序列或融合标签的三维结构,水解标签与目标蛋白之间的肽键。切割效率不仅取决于识别序列是否匹配,还受到位点空间暴露、连接区柔性、目标蛋白构象及缓冲条件影响;切割后的样品通常同时含有目标蛋白、游离标签、未切割融合蛋白和切割酶,因此切割反应还应与后续亲和层析、离子交换或凝胶过滤步骤配套设计。
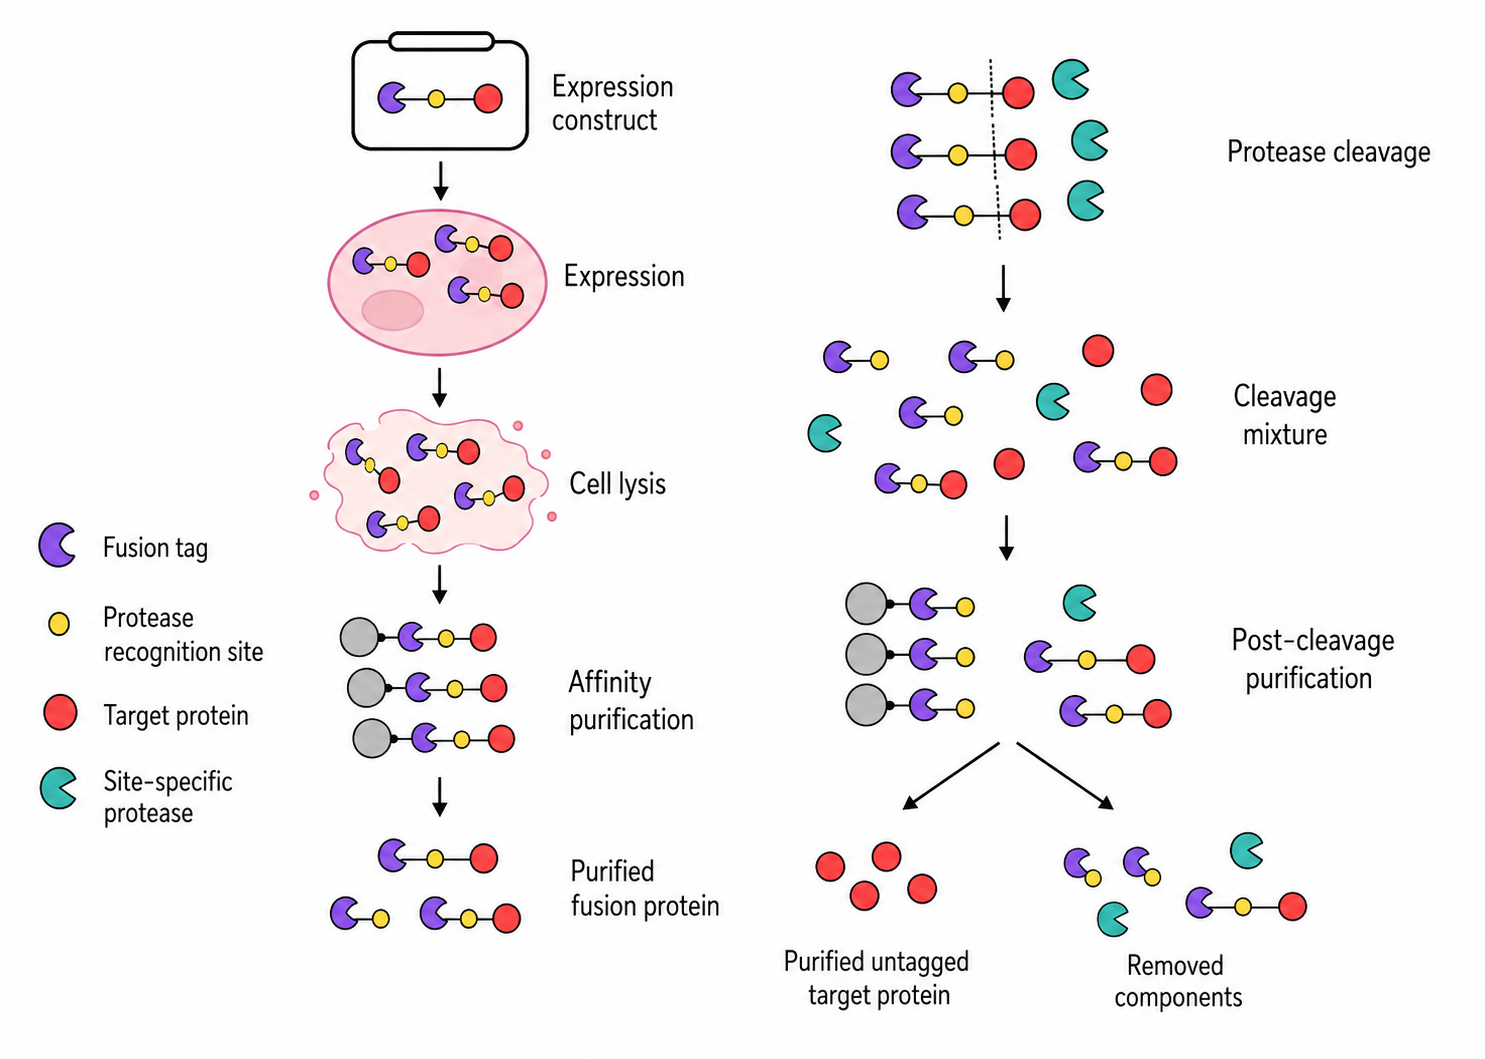
图1 融合蛋白表达、标签切除及切割后纯化流程示意图
1.3 标签切除的应用需求
(1)恢复目标蛋白结构与功能
融合标签可能影响蛋白折叠、寡聚化、酶活性、配体结合或亚细胞定位,切除标签有助于判断实验结果是否由目标蛋白本身产生。
(2)提高蛋白样品均一性
蛋白结晶、核磁共振、冷冻电镜及定量生化分析通常要求样品组成均一,残留标签和未切割融合蛋白会增加分子量与构象异质性,影响结构解析和功能测定。
(3)获得符合要求的蛋白末端
部分蛋白的N端或C端直接参与信号识别、酶活性和蛋白互作,而不同蛋白酶切割后保留的额外残基不同,因此需要在载体设计阶段同时考虑切割效率和末端准确性。
2 常用标签切除蛋白酶的来源与酶学分类
2.1 序列特异性半胱氨酸蛋白酶
TEV蛋白酶和HRV 3C蛋白酶均属于半胱氨酸蛋白酶,通过较长的氨基酸序列识别底物,其完整识别序列在目标蛋白内部出现的概率相对较低,通常具有较高的切割特异性和较低的非目标切割风险。TEV蛋白酶适用于多种标签系统,HRV 3C蛋白酶则具有较好的低温切割能力;两类蛋白酶的催化半胱氨酸需要保持适宜的还原状态,巯基修饰剂和半胱氨酸蛋白酶抑制剂可能降低其活性。
2.2 丝氨酸蛋白酶
肠激酶、凝血酶和Factor Xa均属于丝氨酸蛋白酶,依靠丝氨酸、组氨酸和天冬氨酸组成的催化体系水解肽键。三者的识别序列相对较短,可用于获得接近天然状态的蛋白末端,但目标蛋白内部的相似序列或暴露性碱性残基也可能被切割;PMSF、AEBSF及部分蛋白酶抑制剂混合物可抑制这类蛋白酶,若融合蛋白在含抑制剂的裂解液中纯化,切割前应通过脱盐、透析或缓冲液置换去除抑制成分。
2.3 标签依赖型切割酶
SUMO蛋白酶、泛素特异性蛋白酶及其他标签依赖型蛋白酶不仅识别短肽序列,还识别融合标签的三维结构,可在标签与目标蛋白连接处完成切割,并有机会获得不带额外氨基酸的目标蛋白N端。此类蛋白酶识别特异性较高,但通常只能用于对应的融合标签系统,不能像TEV蛋白酶或HRV 3C蛋白酶一样通过插入独立识别序列适配不同标签。
3 标签切除蛋白酶的识别序列与催化机制
3.1 切割位点的表示方式
蛋白酶底物通常将待切割肽键N端一侧的残基依次标记为P1、P2、P3和P4,将C端一侧的残基依次标记为P1′、P2′、P3′和P4′,切割发生在P1与P1′之间,蛋白酶中对应的底物结合区域则记为S1、S2和S1′等结合口袋。不同蛋白酶对P1、P2及P1′残基的限制程度不同,载体设计时不能只插入经典识别序列,还应确认目标蛋白的首个残基是否适合作为P1′,否则可能降低切割效率或需要在目标蛋白N端保留额外氨基酸。
3.2 半胱氨酸蛋白酶的催化机制
TEV蛋白酶和HRV 3C蛋白酶先通过多个结合口袋识别目标序列,使待切割肽键定位于活性中心,随后由催化半胱氨酸攻击肽键羰基碳并形成硫酰化酶中间体,再由水分子水解该中间体,释放切割产物并恢复游离蛋白酶。适量还原剂有助于维持催化半胱氨酸的还原状态,但还原剂浓度还需兼顾目标蛋白二硫键和金属中心的稳定性。
肠激酶、凝血酶和Factor Xa利用催化丝氨酸攻击底物肽键并形成酰化酶中间体,随后由水分子完成去酰化并释放产物。其催化效率不仅取决于核心识别序列,还受到位点两侧氨基酸、局部电荷和空间构象影响。
4 TEV蛋白酶与HRV 3C蛋白酶的切割特征
4.1 TEV蛋白酶
TEV蛋白酶常用识别序列为ENLYFQ↓G或ENLYFQ↓S,切割发生在Gln与P1′残基之间。该酶对识别序列上游多个位置具有较严格的要求,通常具有较高的序列特异性,P1′位以Gly或Ser较为常见,而Pro通常不利于切割。TEV蛋白酶可用于His标签、GST标签、MBP标签及其他融合标签的去除,反应可在较低温度下延长进行,也可在目标蛋白稳定的条件下适度提高温度以缩短反应时间;由于其活性中心含催化半胱氨酸,反应体系通常需要维持适宜的还原环境。
4.2 HRV 3C蛋白酶
HRV 3C蛋白酶的经典识别序列为LEVLFQ↓GP,切割发生在Gln与Gly之间。该酶对P1位Gln及其上游序列具有较强选择性,并在低温下保持较好的切割能力,适合处理易聚集、易降解或不耐受室温孵育的目标蛋白;经典位点切割后通常在目标蛋白N端保留Gly-Pro,因此对天然N端要求严格时,需要在载体设计阶段评价残留序列的影响。
5 肠激酶、凝血酶与Factor Xa的切割特征
5.1 肠激酶
肠激酶的经典识别序列为DDDDK↓X,切割发生在Lys之后,识别序列位于切割位点上游,因此可将目标蛋白天然N端设置为P1′,有利于获得不含额外连接残基的目标蛋白。肠激酶对连续酸性残基和P1位Lys具有明显偏好,但实际切割效率还受到P1′残基和局部构象影响;若目标蛋白内部存在酸性残基富集并邻接Lys的暴露区域,使用过高酶量或延长反应时间可能增加非目标切割。
5.2 凝血酶
凝血酶常用识别序列为LVPR↓GS,切割发生在Arg之后。该位点较短,容易插入表达载体,并可在多种中性蛋白缓冲体系中进行反应;但凝血酶对目标蛋白内部暴露性Arg位点的区分能力低于TEV蛋白酶和HRV 3C蛋白酶,处理时间过长或酶量过高时可能出现额外裂解条带,经典位点切割后通常保留Gly-Ser,因此还应评估残留残基对目标蛋白结构和功能的影响。
5.3 Factor Xa
Factor Xa的经典识别序列为IEGR↓X,切割发生在Arg之后,识别序列位于目标蛋白上游,适当设计P1′残基时可获得接近天然的目标蛋白N端。Factor Xa对识别位点的空间暴露较为敏感,目标位点靠近稳定结构域或标签—蛋白界面时可能发生切割不完全;该酶也可能切割目标蛋白内部其他适宜的暴露性Arg位点,因此应在载体构建前检查完整蛋白序列。
6 常用标签切除蛋白酶的特异性与反应条件比较
6.1 识别特异性与应用差异
蛋白酶 | 酶学类型 | 常用识别序列 | 切割位置 | 反应特点 | 主要优势 | 主要限制 |
TEV蛋白酶 | 半胱氨酸蛋白酶 | ENLYFQ↓G/S | Gln后 | 可低温延时或温和升温反应,适量还原剂有利于保持活性 | 序列特异性高,非目标切割较少 | 对位点暴露和P1′残基有要求 |
HRV 3C蛋白酶 | 半胱氨酸蛋白酶 | LEVLFQ↓GP | Gln后 | 低温下仍可进行有效切割 | 适合不稳定蛋白和低温处理 | 经典位点通常保留Gly-Pro |
肠激酶 | 丝氨酸蛋白酶 | DDDDK↓X | Lys后 | 常在中性至弱碱性条件下反应 | 有利于获得天然N端 | 可能切割内部酸性-Lys区域 |
凝血酶 | 丝氨酸蛋白酶 | LVPR↓GS | Arg后 | 可在多种常规蛋白缓冲液中反应 | 体系成熟,操作方便 | 识别序列较短,非目标切割风险较高 |
Factor Xa | 丝氨酸蛋白酶 | IEGR↓X | Arg后 | 对局部构象和位点暴露较敏感 | 可设计接近天然的N端 | 可能切割其他暴露性Arg位点 |
SUMO蛋白酶 | 标签结构依赖型蛋白酶 | 识别SUMO三维结构 | SUMO标签末端 | 仅适用于SUMO融合体系 | 特异性高,可获得天然N端 | 不能用于非SUMO标签体系 |
6.2 反应条件匹配
半胱氨酸蛋白酶通常应避免巯基封闭剂和半胱氨酸蛋白酶抑制剂,丝氨酸蛋白酶则应避免PMSF、AEBSF及相关抑制剂。盐浓度、咪唑、甘油、去污剂、变性剂和金属离子对不同蛋白酶的影响不同,不能将一种蛋白酶的反应条件直接用于另一种蛋白酶;不同产品的活性单位还可能采用不同底物、温度、反应时间和终点定义,因此不能只根据标示单位直接比较催化能力,实际用量应依据具体酶制剂和小规模切割结果确定。
7 融合蛋白切割位点的设计与蛋白酶选择
7.1 标签位置与目标蛋白末端
N端标签切除主要影响目标蛋白N端,C端标签切除则可能在目标蛋白C端保留部分识别序列。若蛋白N端参与酶活性、膜定位、信号识别或复合物组装,应优先选择能够获得准确N端的切割方案。
7.2 识别位点的空间暴露
切割位点应置于标签与目标蛋白之间的柔性区域,避免嵌入稳定二级结构或结构域内部。必要时可在识别序列周围加入少量Gly或Ser提高位点可及性,但连接序列不宜过长,以免增加无序性、降解风险和切割后残留。
7.3 目标蛋白内部潜在切割位点
设计表达构建体前,应检查目标蛋白内部是否存在与所选蛋白酶相同或相似的序列。对于凝血酶、Factor Xa和肠激酶,还应关注暴露性Arg、Lys及其邻近残基,而不能只查找完全一致的经典识别位点;若目标蛋白内部存在较高风险的潜在位点,可更换为识别序列较长的TEV蛋白酶或HRV 3C蛋白酶,也可在不影响目标蛋白功能的前提下调整构建设计。
7.4 蛋白酶的选择依据
(1)识别特异性
对蛋白完整性要求较高时,可优先选择TEV蛋白酶或HRV 3C蛋白酶;使用凝血酶、肠激酶或Factor Xa时,应重点检查内部潜在切割位点。
(2)末端准确性
必须获得准确N端时,可考虑肠激酶、Factor Xa或SUMO蛋白酶,但需要同时评价内部切割风险、P1′残基适配性和标签体系限制。
(3)目标蛋白稳定性
易聚集或不耐受室温的蛋白可优先采用HRV 3C蛋白酶或低温延时的TEV蛋白酶;含关键二硫键或对还原环境敏感的蛋白,则需要降低还原剂浓度或选择其他切割体系。
8 标签切除反应优化与异常结果判读
8.1 小规模反应条件筛选
切割反应放大前,应设置蛋白酶用量、反应温度和反应时间梯度,并保持融合蛋白浓度和缓冲体系一致,通过SDS-PAGE比较未切割融合蛋白、目标蛋白和游离标签的变化,选择切割充分且非目标条带较少的条件。不同蛋白酶的活性单位定义并不完全一致,酶与底物比例应依据具体产品和实测切割结果确定;放大前还应确认目标蛋白在预计反应时间内不会自行沉淀或降解。
8.2 切割不完全
(1)识别位点被遮蔽
识别序列可能被蛋白折叠、标签—目标蛋白相互作用或寡聚体界面遮蔽,可尝试降低蛋白浓度、调整盐浓度、增加短柔性连接序列或改变标签位置。
(2)反应条件不匹配
pH、盐浓度、还原剂、咪唑、甘油、去污剂和抑制剂残留均可能降低酶活,应先将融合蛋白更换至适合所选蛋白酶的缓冲体系,再考虑增加酶量或延长反应时间。
(3)蛋白酶活性下降
反复冻融、长期保存、氧化或抑制剂污染可能导致蛋白酶失活,可设置已知可切割底物作为阳性对照,以区分蛋白酶失活和目标位点不可及。
8.3 出现非特异性条带
(1)酶量过高或反应时间过长
过量蛋白酶和长时间孵育会增加低亲和力位点被切割的概率,应降低酶量、缩短反应时间或降低温度,并在达到所需切割程度后及时进行纯化。
(2)目标蛋白存在内部切割位点
若切割后出现稳定的小分子片段,应检查目标蛋白内部潜在识别序列,并通过质谱、N端分析或片段特异性抗体确定实际断裂位置。
(3)样品在切割前已经降解
应设置不加标签切除蛋白酶的等时孵育对照;若对照组也出现相同降解条带,说明问题可能来自宿主蛋白酶、储存条件或目标蛋白自身不稳定。
8.4 标签切除后蛋白沉淀
GST标签、MBP标签和SUMO标签可能承担提高溶解度和稳定性的作用,切除后目标蛋白可能暴露疏水表面并发生聚集。可降低蛋白浓度和反应温度,调整pH、盐浓度或甘油含量,或采用柱上切割及边切割边分离的方式;若目标蛋白脱离标签后持续不稳定,应考虑保留小型标签、更换标签位置或重新设计蛋白结构域边界,而不是单纯增加标签切除蛋白酶用量。
8.5 切割结果确认
切割后条带分子量下降只能说明蛋白发生了裂解,不能单独证明断裂位置与设计位点一致。应结合标签抗体检测、目标蛋白抗体检测、质谱或N端分析确认标签是否被完整去除,并检查目标蛋白是否保持预期活性。
9 标签切除蛋白酶及配套验证产品
货号 | 名称 | 级别和纯度 | 研究环节 | 主要应用 |
TEV Protease (GST/His-tag) | — | TEV识别位点切割与切割酶去除 | 用于ENLYFQ↓G/S位点切割,GST/His标签便于反应后去除蛋白酶 | |
重组TEV蛋白酶 | 无载体,生物活性,ActiBioPure™,无叠氮钠,His标签,≥98%(SDS-PAGE),见COA | TEV位点切割 | 用于His、GST、MBP等融合蛋白的高特异性标签切除 | |
重组TEV酶 | 无载体,生物活性,ActiBioPure™,His标签,≥98%(SDS-PAGE),见COA | TEV切割条件优化 | 用于酶与底物比例、反应温度和反应时间筛选 | |
Recombinant Human HRV 3C Protein | 无载体,生物活性,ActiBioPure™,无叠氮钠,His标签,PBS Only,≥95%(SDS-PAGE),见COA | HRV 3C位点切割 | 用于LEVLFQ↓GP位点切割,适合低温处理稳定性较差的目标蛋白 | |
hrv 3c Protease | — | HRV 3C位点切割 | 用于融合标签切除及低温反应条件研究 | |
SUMO Protease, Biotin tagged | 重组,aqueous solution,≥25,000 units/mL | SUMO标签切除 | 识别SUMO结构并释放目标蛋白,生物素标记便于切割酶捕获和去除 | |
重组Sumo蛋白酶 | 无载体,生物活性,ActiBioPure™,无叠氮钠,高性能,His标签,≥90%(SDS-PAGE) | SUMO标签切除 | 用于SUMO融合蛋白的结构依赖型切割及天然N端制备 | |
重组Sumo蛋白酶 | 无载体,His标签,≥90%(SDS-PAGE),见COA | SUMO标签切除 | 用于SUMO融合标签去除及切割条件筛选 | |
肠激酶(质谱级) | 重组,质谱级(MS),EnzymoPure™,≥98%(HPLC),≥16000 U/mg protein | 高纯度肠激酶切割 | 用于DDDDK↓X位点切割及质谱分析前的融合标签去除 | |
重组肠激酶 | 无动物源,无载体,生物活性,ActiBioPure™,EnzymoPure™,≥5.0 U/μL | 肠激酶位点切割 | 用于融合标签去除及接近天然N端的目标蛋白制备 | |
重组肠激酶 | 无动物源,无载体,生物活性,ActiBioPure™,EnzymoPure™,≥10 U/μL | 高活性肠激酶切割 | 用于DDDDK识别位点切割及高酶活反应体系 | |
重组肠激酶 | 生物活性,重组,ActiBioPure™,高性能,EnzymoPure™,≥5 units/μL,expressed in E. coli | 常规肠激酶切割 | 用于融合标签切除及酶量、时间和温度条件优化 | |
肠激酶 人 | 重组,用于细胞培养,≥90%(SDS-PAGE&HPLC),expressed in CHO cells | 人源肠激酶切割 | 用于对纯度、表达系统或细胞培养适用性有要求的标签切除 | |
肠激酶 人 | 重组,≥90%(SDS-PAGE),expressed in CHO cells | 人源肠激酶切割 | 用于DDDDK↓X位点切割及融合蛋白标签去除 | |
肠激酶 来源于猪肠 | Lyophilized powder,≥100 units/mg protein | 天然肠激酶切割 | 用于肠激酶识别位点切割及天然酶反应研究 | |
肠激酶 来源于猪肠 | ≥0.5 units/mg solid | 肠激酶基础反应 | 用于融合蛋白切割条件的初步筛选 | |
重组肠激酶冻干粉(牛) | 无动物源,无载体,生物活性,ActiBioPure™,EnzymoPure™,≥1000 U/mg protein | 高比活性肠激酶切割 | 用于需要冻干、高比活性制剂的融合蛋白处理 | |
α-凝血酶 | 生物活性,ActiBioPure™,天然,高性能,EnzymoPure™,来源于人血浆;≥2700 NIH U/mg protein;冻干前浓度见COA | 凝血酶位点切割 | 用于LVPR↓GS等识别位点切割及高活性反应体系 | |
凝血酶 | 生物活性,ActiBioPure™,天然,高性能,EnzymoPure™,来源于人血浆;400~1000 NIH U/mg protein | 常规凝血酶切割 | 用于融合蛋白凝血酶位点切除及酶量梯度优化 | |
重组人凝血酶 | 无动物源,无载体,生物活性,ActiBioPure™,高性能,≥95%(SDS-PAGE),见COA | 重组凝血酶切割 | 用于需要降低血浆来源杂质影响的融合标签切除 | |
液体-高纯度凝血酶(>2700 U/mg蛋白质) | EnzymoPure™,>500 units/mL | 液体凝血酶切割 | 用于无需复溶、可直接加入反应体系的标签切除 | |
高纯度牛凝血酶(>1500 U/mg蛋白质) | EnzymoPure™,>200000 units/g powder | 牛源凝血酶切割 | 用于凝血酶识别位点切割及酶量条件筛选 | |
高纯度牛凝血酶(>2200 U/mg蛋白质) | EnzymoPure™,>200000 units/g powder | 高比活性凝血酶切割 | 用于对凝血酶比活性要求较高的融合蛋白切割 | |
H-D-Phe-Pip-Arg-pNA二盐酸盐(凝血酶显色底物) | BioReagent,≥98%(HPLC) | 凝血酶活性评价 | 用于确认凝血酶活性及评价储存或反应条件对酶活的影响 | |
Sumo tag Mouse mAb | 无载体,ExactAb™,无叠氮钠,已验证,高性能,PBS Only,1.0 mg/mL | SUMO标签切除验证 | 用于检测未切割融合蛋白和切割后残留SUMO标签 | |
Sumo tag Mouse mAb | 无载体,ExactAb™,无叠氮钠,已验证,高性能,PBS Only,1.0 mg/mL | SUMO标签切除验证 | 用于Western blot检测SUMO标签切除效果 | |
Sumo tag Mouse mAb | 无载体,ExactAb™,无叠氮钠,已验证,高性能,PBS Only,1.0 mg/mL | SUMO标签切除验证 | 用于未切割融合蛋白及残留SUMO标签检测 | |
Sumo tag Mouse mAb | 无载体,ExactAb™,无叠氮钠,已验证,高性能,PBS Only,1.0 mg/mL | SUMO标签切除验证 | 用于比较切割前后SUMO标签信号 | |
Sumo tag Mouse mAb | 无载体,ExactAb™,无叠氮钠,已验证,高性能,PBS Only,1.0 mg/mL | SUMO标签切除验证 | 用于融合蛋白切割结果确认 | |
Sumo tag Mouse mAb (HRP) | ExactAb™,已验证,高性能,0.5 mg/mL | SUMO标签切割结果检测 | 用于直接化学发光检测未切割或残留SUMO标签蛋白 | |
Sumo tag Mouse mAb (Biotin) | ExactAb™,已验证,高性能,0.5 mg/mL | SUMO标签检测与富集 | 用于生物素—链霉亲和素检测或SUMO标签蛋白捕获 |
标签切除蛋白酶的选择应同时考虑识别序列、位点可及性、末端残留、目标蛋白稳定性和切割后纯化流程。通过小规模实验确认切割效率、非目标裂解和蛋白溶解性后再放大反应,可减少切割不完全、蛋白降解及标签去除后沉淀等问题。
更多相关文章,详见下方:
[1] GST融合蛋白沉降技术实验方案
[6] 融合蛋白酶解实验
[7] 融合蛋白化学降解实验


 危险品化学品经营许可证(带存储)