酰胺生物电子等排替换的分子识别基础:氢键、连接几何与受体功能效应——以AHL–LuxR型群体感应受体体系为例
酰胺生物电子等排替换的分子识别基础:氢键、连接几何与受体功能效应——以AHL–LuxR型群体感应受体体系为例
引言
酰胺基团同时具有氢键供体、氢键受体和明确的局部构象特征。酰胺C—N键受共振作用限制,自由旋转程度低于普通C—N单键,酰胺连接区通常具有较强的平面构象偏好。酰胺被其他官能团替换后,氢键供受体的位置、连接长度、局部几何和构象自由度均可能发生变化。
N-酰基-L-高丝氨酸内酯(N-acyl-L-homoserine lactone,AHL)与LuxR型群体感应(quorum sensing,QS)受体具有较完整的结构生物学、定点突变和构效关系研究。LasR天然配体复合物结构确定了AHL酰胺区域的直接相互作用;后续定点突变实验进一步测定了不同极性作用对受体激活的贡献;磺酰胺、脲和反向酰胺类似物则显示,改变酰胺连接方式后,LuxR型受体调节活性仍可保留,但功能强度及激动、拮抗性质可能发生改变。[1-7]
1. AHL–LasR复合物中酰胺的分子识别方式
1.1 天然配体OdDHL的结构
铜绿假单胞菌(Pseudomonas aeruginosa)LasR属于LuxR型转录调控蛋白。其天然信号分子为N-(3-氧代十二酰基)-L-高丝氨酸内酯〔N-(3-oxododecanoyl)-L-homoserine lactone,OdDHL,也常记作3-oxo-C12-HSL〕。[1]
OdDHL的主要结构单元可表示为:
L-高丝氨酸内酯—NH—C(=O)—CH₂—C(=O)—(CH₂)₈—CH₃
其中包含四个与受体识别密切相关的结构区域:
· 高丝氨酸内酯环;
· 酰胺NH;
· 酰胺羰基;
· 脂肪链3位酮羰基及疏水长链。
Bottomley等于2007年解析了LasR配体结合结构域与OdDHL复合物的1.8 Å晶体结构。OdDHL位于LasR内部结合腔中,其内酯头部和酰胺附近形成极性相互作用,长酰基链延伸进入疏水区域。[1]
1.2 酰胺NH和酰胺羰基承担不同的相互作用
LasR–OdDHL复合物以及后续结构分析确定了多组与天然配体相关的极性作用。[1,2]
OdDHL结构部位 | LasR相关残基 | 相互作用特征 |
酰胺NH | Asp73、Thr75 | Asp73和Thr75参与酰胺NH区域的氢键识别 |
酰胺羰基 | Tyr56、Ser129 | 两个残基参与酰胺羰基的定位 |
内酯羰基 | Trp60 | 参与内酯头部的极性识别 |
3-酮羰基 | Arg61及水分子网络 | 参与3-酮区域的定位 |
长酰基链 | 多个疏水残基 | 提供疏水匹配并限制脂肪链位置 |
OdDHL中的一个酰胺同时提供NH氢键供体和羰基氧氢键受体。酰胺的平面构象还限定了内酯头部与脂肪链近端的相对位置。酰胺生物电子等排替换会同时影响这三类参数:极性作用、原子间距离和连接几何。[1,2]
这些参数在蛋白结合位点中具有独立的功能贡献。具有相同数量氢键供体和受体的两个连接基团,如果供受体位置、键角或二面角不同,与受体形成的相互作用组合也会不同。
LasR–OdDHL复合物晶体结构显示,OdDHL的极性区域通过多组直接或水介导氢键固定于结合位点。酰胺羰基与Tyr56、Ser129形成氢键,酰胺NH与Asp73、Thr75形成极性作用,内酯羰基与Trp60形成氢键,3-酮羰基通过水分子与Arg61形成水介导氢键。[1]
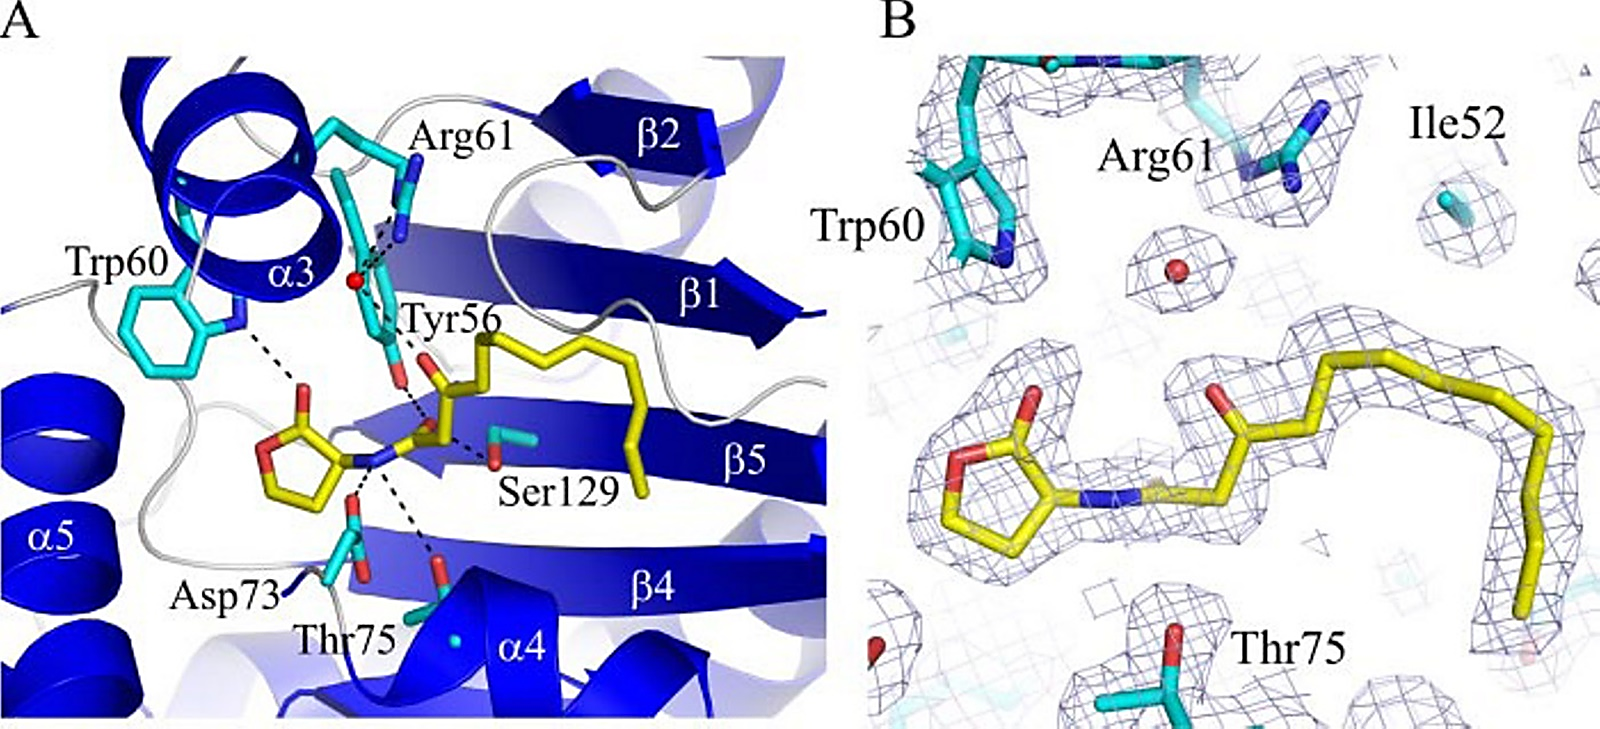
图1. OdDHL在LasR配体结合位点中的相互作用及电子密度。
A,OdDHL与LasR结合位点残基形成的氢键网络;B,OdDHL及参与3-酮羰基水介导氢键的水分子的电子密度。转载自 Bottomley MJ, Muraglia E, Bazzo R, Carfì A. J Biol Chem. 2007;282:13592–13600, Figure 3. CC BY 4.0.[1]。
2. LasR定点突变确定不同氢键的功能权重
2.1 九个结合位点突变体的功能结果
Gerdt等选择LasR配体结合区9个极性残基进行定点突变,包括Tyr56、Trp60、Arg61、Asp73、Thr75、Trp88、Tyr93、Thr115和Ser129。突变设计尽量保留侧链体积,同时降低或去除原侧链的氢键能力,例如Tyr→Phe、Thr→Val和Ser→Ala。[2]
OdDHL在不同LasR突变体中的转录报告活性存在显著差异:
LasR突变 | OdDHL功能变化 | 与天然配体识别的关系 |
Y56F | 与野生型接近 | Tyr56羟基缺失对OdDHL激活效力影响较小 |
Y93F | 与野生型接近 | Tyr93侧链羟基对天然配体激活贡献较小 |
S129A | 效力中度下降 | Ser129参与酰胺羰基区域定位 |
W60F | 效力中度下降 | Trp60参与内酯头部识别 |
R61M | EC50约增加60倍 | Arg61相关作用对3-酮区域识别具有较高功能贡献 |
T115V | EC50增加超过100倍 | Thr115参与维持配体结合区的极性相互作用网络 |
T75V | 对OdDHL的敏感性提高超过10倍 | 去除Thr75羟基后受体功能响应增强 |
D73L | 报告体系中未检测到激活 | Asp73改变与严重功能缺失相关 |
W88F | 报告体系中未检测到激活 | Trp88改变与严重功能缺失相关 |
D73L和W88F的无响应结果不能单独用于判断OdDHL是否失去结合。原研究指出,这两个突变还可能影响LasR的正确折叠或稳定性,因此报告基因实验不能区分“配体结合受损”和“受体蛋白结构受损”。[2]
2.2 酰胺NH和酰胺羰基的功能贡献不同
Y56F去除了Tyr56侧链羟基,但OdDHL激活效力与野生型LasR接近;S129A仅产生中度影响。Tyr56和Ser129均位于OdDHL酰胺羰基附近。[1,2]
Asp73位于酰胺NH附近。D73L突变体在功能实验中无响应,虽然该结果同时受到蛋白折叠因素限制,但结合整个突变系列,酰胺NH相关极性作用表现出高于酰胺羰基相关作用的功能敏感性。[2]
研究者根据OdDHL在不同突变体中的功能变化,对LasR–OdDHL主要氢键的相对重要性进行了排序:
酰胺NH相关作用 > 3-酮羰基相关作用 > 内酯羰基相关作用 > 酰胺羰基相关作用。[2]
这一排序适用于LasR–OdDHL体系,不代表其他蛋白结合位点中的酰胺具有相同排序。不同靶蛋白中酰胺NH和羰基的贡献取决于具体残基组成、溶剂环境和局部构象。[2]
2.3 配体直接氢键与蛋白内部氢键网络共同影响功能
LasR结合位点中的极性残基并非全部直接与OdDHL形成氢键。部分残基通过蛋白内部相互作用维持结合腔的局部结构。
T115V使OdDHL功能效力下降超过两个数量级,表明Thr115所在的局部极性网络对LasR响应具有较大影响。T75V则使LasR对OdDHL更加敏感,说明减少一个极性侧链也可以提高受体功能响应。[2]
T75V效应的具体原子级原因尚未由相应突变体–OdDHL复合物晶体结构直接确定。现有实验可以确定突变改变了受体对OdDHL的功能敏感性,不能据此确定唯一的局部构象变化方式。[2]
LasR突变结果显示,酰胺替换需要同时考虑配体与蛋白的直接相互作用以及结合位点内部残基之间的相互作用网络。单纯增加氢键供体或氢键受体数量不能直接预测受体功能变化。
3. 磺酰胺、脲和反向酰胺改变不同的结构参数
AHL酰胺连接区可用下式表示,其中HSL代表L-高丝氨酸内酯部分,R代表酰基侧链:
天然AHL:HSL—NH—C(=O)—R
三类代表性替换分别为:
磺酰胺:HSL—NH—S(=O)₂—R
脲:HSL—NH—C(=O)—NH—R
反向酰胺:HSL—C(=O)—NH—R
三种替换保留的结构特征和改变的结构参数不同。
3.1 磺酰胺改变连接中心的几何形状和受体原子排列
Castang等合成了11种磺酰胺型AHL类似物,将天然AHL中的羧酰胺连接替换为磺酰胺,并在费氏弧菌(Vibrio fischeri)LuxR系统中评价其对天然信号3-氧代己酰基-L-高丝氨酸内酯(3-oxo-C6-HSL)的竞争性抑制作用。多个化合物表现出LuxR拮抗活性。[4]
酰胺中的羰基碳近似为平面三角构型,酰胺C—N键还具有较强的共振限制。磺酰胺中的六价硫中心接近四面体几何,并含两个磺酰氧。由酰胺变为磺酰胺后,主要变化包括:
①一个羰基氧变为两个磺酰氧;
②氢键受体的空间方向发生变化;
③连接中心由酰胺的平面特征转为不同的三维几何;
④HSL头部与侧链之间的键角和相对位置发生变化。
Castang等的构效关系还显示,侧链长度和芳基与磺酰胺之间的间隔距离会明显影响拮抗活性。戊基取代的代表性磺酰胺达到50%抑制所需浓度约为2 μM,进一步改变侧链长度后活性下降。[4]
该研究通过生物活性实验确定了磺酰胺类似物的LuxR拮抗作用;“阻碍形成活性LuxR二聚体所需结构重排”的解释来自分子建模,并非LuxR–磺酰胺复合物晶体结构的直接观察。[4]
3.2 脲增加一个NH并延长极性连接区域
Frezza等合成了15种由高丝氨酸内酯衍生的N-烷基或N-芳基脲,并在费氏弧菌LuxR体系中评价活性。具有至少4个碳原子烷基链的部分N-烷基脲以及若干末端含苯基的脲衍生物表现出明显拮抗作用。[5]
酰胺与脲的连接方式分别为:
HSL—NH—C(=O)—R
HSL—NH—C(=O)—NH—R
脲保留羰基,同时增加一个NH。该变化同时产生三个结构后果:
1. 增加潜在氢键供体;
2. 延长HSL头部与疏水侧链之间的极性连接区;
3. 改变侧链相对于羰基和NH的方向及构象。
N-丁基脲衍生物的实验进一步显示,其拮抗作用与LuxR家族蛋白ExpR的N端结构域二聚化受到抑制相关。[5] 分子建模提出,脲基团可能在AHL结合腔中形成天然酰胺不存在的附加氢键;附加氢键的具体位置属于结构模型结果。[5]
脲型AHL的实验结果表明,新增氢键供体并未使化合物简单转变为更强的天然配体激动剂,部分化合物表现为拮抗剂。极性作用数量增加与受体激活增强之间不存在固定对应关系。[5]
3.3 反向酰胺交换NH和羰基相对于两端片段的位置
Boukraa等研究了酰胺方向反转的AHL类似物。[6]
天然AHL连接方式:
HSL—NH—C(=O)—R
反向酰胺连接方式:
HSL—C(=O)—NH—R
两种结构均含一个NH和一个羰基氧,但相对于HSL头部和疏水侧链,氢键供体与氢键受体的位置发生交换。
这项研究中的部分反向酰胺类似物仍具有LuxR拮抗作用,其中活性较高的化合物对LuxR的拮抗活性达到约30 μM量级。[6]
该结果确定了反向酰胺可以保留LuxR调节活性,但没有证明反向酰胺与天然AHL具有相同的结合姿势。供体和受体相对于分子两端的位置发生交换后,与受体极性残基的配对关系也可能改变。
3.4 三类替换对应不同的分子变化
连接基团 | 氢键供体/受体变化 | 主要几何变化 | 已报道的LuxR型功能结果 |
酰胺 | 1个NH供体、1个羰基受体 | 较强平面构象偏好 | 天然AHL连接方式 |
磺酰胺 | 保留NH;形成两个磺酰氧 | 硫中心三维几何明显不同 | 多个LuxR拮抗剂 [4] |
脲 | 增加一个NH | 极性连接区延长,供体排列改变 | 多个LuxR拮抗剂;代表性化合物影响ExpR二聚化 [5] |
反向酰胺 | 供体和受体数目近似不变 | NH与C=O相对于两端片段的位置交换 | 部分LuxR拮抗剂 [6] |
磺酰胺主要改变连接中心几何和受体原子排列;脲增加供体并改变连接长度;反向酰胺主要改变供体和受体相对于两端分子片段的位置。三者对应不同的结构扰动。[4-6]
4. 配体结合、受体激活和受体抑制是不同的实验结果
4.1 LuxR类似物可以保持结合而显著降低激活能力
Schaefer等于1996年系统研究了AHL类似物与费氏弧菌LuxR的关系。多种改变酰基侧链的类似物显示出与LuxR结合的证据,其中部分化合物的结合能力接近天然自诱导物;这些能够结合LuxR的类似物并不都能有效激活发光基因表达。部分激活能力很弱或没有明显激活能力的类似物还能够抑制天然自诱导物的作用。[7]
这些实验把三个过程区分开:
配体与受体结合 → 受体形成能够驱动转录的功能状态 → 下游基因表达
结合是受体激活的前提之一,但结合本身不能代表受体已经形成天然配体诱导的功能状态。[7]
4.2 LasR单个结合位点突变可以改变非天然配体的激动/拮抗谱
Gerdt等于2014年研究LasR结合口袋突变对非天然AHL类似物功能的影响。Trp60、Tyr56和Ser129的改变可以使特定配体在激动剂和拮抗剂之间发生功能转换。[3]
其中,W60F突变产生了特别明确的功能转换:一个在野生型LasR中表现为抑制剂的配体转变为激活剂,而另一个原本表现为激活剂的配体转变为抑制剂。独立荧光报告体系得到相同的功能转换结果。[3]
Tyr56和Ser129位于天然OdDHL酰胺羰基附近,Trp60位于内酯头部附近。单个位点改变即可转换非天然配体的功能谱,表明配体头部和酰胺区域的局部定位与受体功能状态密切相关。[3]
原研究利用这些结果建立了LasR激活与抑制的构象模型。实验确定的是“残基改变导致配体功能谱转换”;从局部接触变化传递到LasR整体构象变化的具体过程属于结构机制模型,目前并非由野生型和突变体不同功能状态的成对高分辨率复合物结构直接确定。[3]
5. 酰胺生物电子等排替换涉及三个相互关联的分子层次
5.1 关键极性作用
原酰胺中的NH和羰基需要分别评价。LasR–OdDHL体系中,酰胺NH相关作用的功能敏感性高于酰胺羰基相关作用。[2]
同一酰胺中的氢键供体和受体没有固定的功能权重。具体贡献由结合位点残基、局部水分子、蛋白内部氢键网络和配体构象共同决定。
5.2 三维连接几何
酰胺替换可能影响下列一个或多个结构参数:
①氢键供体的位置;
②氢键受体的位置;
③供体和受体的方向;
④两端分子片段的间距;
⑤键角和二面角;
⑥局部平面性;
⑦可旋转键和优势构象。
磺酰胺、脲和反向酰胺分别改变这些参数中的不同组合。[4-6]
具有相同供体/受体数量的反向酰胺与天然酰胺仍具有不同的原子排列;具有更多极性位点的脲也不必然产生更强的受体激活。酰胺生物电子等排的结构比较需要落实到具体原子的位置和方向。
5.3 受体功能状态
生物电子等排替换后的实验结果至少包括两个独立层面:
实验层面 | 可回答的问题 |
直接结合或结构实验 | 新分子是否结合、采用何种结合位置和相互作用 |
功能实验 | 结合后产生激动、部分激动、拮抗或无明显响应 |
LuxR类似物研究已经观察到“保留受体结合证据但激活能力显著降低”的化合物。[7] LasR定点突变研究还观察到单个结合位点残基改变导致非天然配体激动/拮抗性质转换。[3]
受体结合亲和力、局部相互作用和功能输出需要分别测定。分子对接和分子动力学模拟可以用于建立结构假设,但不能替代直接结合、结构生物学或功能实验对机制的验证。
6. 酰胺生物电子等排替换与AHL群体感应研究相关代表化学品
表1. AHL信号分子与高丝氨酸内酯核心砌块
分类 | Cas编号 | 阿拉丁货号 | 名称 | 规格或纯度 | 产品特色与应用 |
丁酰型短链AHL | 67605-85-0 | N-丁酰-L-高丝氨酸内酯 | Moligand™, ≥98% | C4酰基侧链AHL,用于短链AHL受体响应、酰基链长度及疏水口袋匹配研究。 | |
己酰型短链AHL | 147852-83-3 | N-己酰基-L-高丝氨酸内酯(C6-HSL) | ≥98% | C6酰基侧链AHL,可与3-氧代己酰型AHL配对,用于比较3-酮羰基和酰基链结构对LuxR型受体响应的影响。 | |
3-氧代己酰型短链AHL | 143537-62-6 | N-3-氧-己酰高丝氨酸内酯 | Moligand™, ≥98% | 费氏弧菌LuxR体系经典诱导信号,用于LuxR激活、竞争性拮抗及AHL类似物活性评价。 | |
辛酰型中链AHL | 147852-84-4 | N-辛酰基-L-高丝氨酸内酯 (C8-HSL) | Moligand™, ≥98% | C8酰基侧链AHL,用于中链AHL识别、受体选择性及3-酮羰基有无的配对比较。 | |
3-氧代辛酰型中链AHL | 147795-39-9 | N-(3-氧代辛酰基)-L-高丝氨酸内酯 | ≥97% | 根癌农杆菌TraR天然AHL配体,用于3-氧代AHL受体识别、氢键网络及不同LuxR型受体结合模式比较。 | |
癸酰型中长链AHL | 177315-87-6 | N-癸酰基-L-高丝氨酸内酯 | Moligand™, ≥96% | C10酰基侧链AHL,用于中长链AHL构效关系、疏水侧链长度及受体选择性研究。 | |
3-氧代癸酰型中长链AHL | 147795-40-2 | N-(3-氧代癸酰基)-L-高丝氨酸内酯 | ≥98% | C10侧链并含3-酮羰基,可与非3-氧代C10-AHL配对研究羰基极性作用和侧链长度效应。 | |
十二烷酰型长链AHL | 137173-46-7 | N-十二烷酰-L-高丝氨酸内酯 | ≥98% | C12长链AHL,可与3-氧代十二烷酰型AHL配对,用于分析3-酮羰基及长疏水链对受体识别的贡献。 | |
3-氧代十二烷酰型LasR配体 | 168982-69-2 | N-(3-氧代十二烷酰基)-L-高丝氨酸内酯 | ≥97% | 铜绿假单胞菌LasR天然配体,用于LasR复合物结构、酰胺NH与羰基氢键、3-酮羰基识别及定点突变研究。 | |
十四烷酰型长链AHL | 202284-87-5 | N-十四烷酰基-L-高丝氨酸内酯(C14-HSL) | ≥98% | C14长链AHL,用于扩展AHL酰基链长度系列及长疏水侧链与受体结合区域匹配研究。 | |
3-氧代十四烷酰型长链AHL | 177158-19-9 | N-(3-氧十四烷酰基)-L-高丝氨酸内酯 | ≥98% | C14侧链并含3-酮羰基,用于长链3-氧代AHL系列、极性头部与疏水尾链协同识别研究。 | |
外消旋高丝氨酸内酯骨架 | 6305-38-0 | α-氨基-γ-丁内酯氢溴酸盐 | ≥98%(N)(T) | 含游离氨基反应位点的外消旋内酯骨架,用于合成外消旋AHL、磺酰胺型AHL及脲型AHL类似物。 | |
S构型高丝氨酸内酯骨架·氢溴酸盐 | 15295-77-9 | (S)-(-)-α-氨基-γ-丁内酯 氢溴酸盐 | ≥98% | 保留天然AHL头部S构型的手性砌块,用于N-酰化、N-磺酰化及相关AHL类似物合成。 | |
S构型高丝氨酸内酯骨架·盐酸盐 | 2185-03-7 | (S)-α-氨基-γ-丁内酯 盐酸盐 | ≥97% | S构型高丝氨酸内酯氨基砌块,用于构建天然构型AHL及酰胺连接区衍生物。 |
表2. 磺酰胺生物电子等排构建试剂
分类 | Cas编号 | 阿拉丁货号 | 名称 | 规格或纯度 | 产品特色与应用 |
正丁基磺酰化试剂 | 2386-60-9 | 1-丁磺酰氯 | ≥98%(GC) | 构建C4直链烷基磺酰胺,用于磺酰胺型AHL短链端点及烷基链长度构效关系研究。 | |
正己基磺酰化试剂 | 14532-24-2 | 1-己烷磺酰氯 | ≥95% | 构建C6直链烷基磺酰胺,用于比较C4-C9磺酰胺侧链长度与LuxR拮抗活性的关系。 | |
正庚基磺酰化试剂 | 927-92-4 | 1-Heptanesulfonyl chloride | ≥95% | 构建C7直链烷基磺酰胺,用于连续疏水链长度系列和结合口袋适配研究。 | |
正辛基磺酰化试剂 | 7795-95-1 | 1-辛烷磺酰氯 | ≥95%(GC) | 构建C8直链烷基磺酰胺,用于中长链磺酰胺类似物及疏水侧链长度效应研究。 | |
正壬基磺酰化试剂 | 63353-34-4 | 1-Nonanesulfonyl chloride | ≥97% | 构建C9直链烷基磺酰胺,用于长链端点比较及磺酰胺型AHL链长构效关系研究。 | |
苯基磺酰化试剂 | 98-09-9 | 苯磺酰氯 | ≥98% | 磺酰基与苯环直接连接,用于构建基础芳基磺酰胺并比较芳基与脂肪链磺酰胺的结构差异。 | |
对甲基苯基磺酰化试剂 | 98-59-9 | 对甲苯磺酰氯(PTSC) | AR, ≥99% | 在苯磺酰基对位引入甲基,用于研究芳环疏水取代和电子性质变化对磺酰胺连接结构的影响。 | |
对溴苯基磺酰化试剂 | 98-58-8 | 4-溴苯磺酰氯 | ≥98% | 在苯磺酰基对位引入溴原子,用于扩展卤代芳基磺酰胺及芳环取代构效关系。 | |
苄基磺酰化试剂 | 1939-99-7 | α-甲苯磺酰氯 | ≥97% | 苯环与磺酰基之间含一个亚甲基,用于构建苄基磺酰胺并研究芳环—磺酰胺间隔距离对受体调节活性的影响。 | |
苯乙基磺酰化试剂 | 4025-71-2 | 2-苯基-乙烷磺酰氯 | ≥97% | 苯环与磺酰基之间含两个亚甲基,对应苯基烷基磺酰胺间隔系列,可用于芳环距离与LuxR拮抗活性关系研究。 | |
苯丙基磺酰化试剂 | 63014-04-0 | 3-苯基丙烷-1-磺酰氯 | ≥97% | 对应结构为苯环与磺酰基之间含三个亚甲基的芳烷基磺酰氯,用于苯基烷基磺酰胺间隔长度及构象自由度研究。 |
表3. 脲与硫脲连接结构构建试剂
分类 | Cas编号 | 阿拉丁货号 | 名称 | 规格或纯度 | 产品特色与应用 |
正丁基异氰酸酯 | 111-36-4 | 异氰酸正丁酯 | ≥98% | 构建C4直链N-烷基脲;对应原始丁基脲型AHL研究,可用于脲连接结构、LuxR拮抗及受体二聚化研究。 | |
正戊基异氰酸酯 | 3954-13-0 | 异氰酸戊酯 | ≥97% | 构建C5直链N-烷基脲;用于丁基、戊基、己基脲连续链长系列及疏水侧链构效关系研究。 | |
正己基异氰酸酯 | 2525-62-4 | 异氰酸己酯 | ≥98%(GC) | 构建C6直链N-烷基脲,用于中链脲型酰胺替换物及烷基链长度对受体拮抗活性的影响研究。 | |
苄基异氰酸酯 | 3173-56-6 | 异氰酸苄酯 | ≥99%(GC) | 构建苄基脲,芳环与脲基之间含一个亚甲基,用于芳环距离、疏水作用和脲基氢键排列研究。 | |
苯乙基异氰酸酯 | 1943-82-4 | 异氰酸苯乙酯 | ≥98%(GC) | 构建苯乙基脲,芳环与脲基之间含两个亚甲基,用于芳烷基脲系列的间隔距离和LuxR拮抗构效关系研究。 | |
正丁基异硫氰酸酯 | 592-82-5 | 异硫氰酸丁酯 | ≥98% | 构建正丁基硫脲型AHL对照结构,用于比较脲羰基与硫羰基替换对极性作用及LuxR抑制活性的影响;原始研究中相应丁基硫脲未显示抑制活性。 | |
活化氨基甲酸酯构建试剂 | 7693-46-1 | 氯甲酸4-硝基苯酯 | ≥98%(T) | 用于生成活化氨基甲酸酯中间体;原始脲型AHL研究中用于芳基甲胺衍生物与高丝氨酸内酯构建脲连接结构。 | |
库尔提斯重排试剂 | 26386-88-9 | 叠氮磷酸二苯酯(DPPA) | ≥97% | 用于羧酸经酰基叠氮化物生成异氰酸酯中间体;原始脲型AHL研究中用于原位生成异氰酸酯并构建脲连接结构。 |
表4. 反向酰胺侧链原料与刚性构象砌块
分类 | Cas编号 | 阿拉丁货号 | 名称 | 规格或纯度 | 产品特色与应用 |
正丁基伯胺 | 109-73-9 | 一正丁胺 | ≥99.5%(GC) | 构建N-丁基反向酰胺侧链,用于短链反向酰胺型AHL及酰胺供受体方向改变后的受体调节研究。 | |
正己基伯胺 | 111-26-2 | 正己胺 | ≥99% | 构建N-己基反向酰胺侧链,用于反向酰胺系列中疏水侧链长度和LuxR拮抗活性的比较。 | |
正辛基伯胺 | 111-86-4 | 正辛胺 | ≥99% | 构建N-辛基反向酰胺侧链,用于中长链反向酰胺类似物及疏水链与受体结合区域匹配研究。 | |
正癸基伯胺 | 2016-57-1 | 癸胺 | ≥98% | 构建N-癸基反向酰胺侧链,用于长链反向酰胺系列及侧链长度对受体调节活性的影响研究。 | |
环丙烷刚性二羧酸砌块 | 598-10-7 | 环丙烷-1,1-二羧酸 | ≥98% | 含环丙烷刚性骨架和两个羧基反应位点,用于构建构象受限酰胺及相关连接结构,研究片段间距离、局部几何和构象自由度对分子识别的影响。 |
注:以上为阿拉丁代表性科研相关产品,具体用途应结合产品规格、批次COA及目标反应或评价体系确定。更多产品规格、级别和COA信息可用“品名/CAS/货号”在阿拉丁官网检索。
参考文献
[1] Bottomley MJ, Muraglia E, Bazzo R, Carfì A. Molecular insights into quorum sensing in the human pathogen Pseudomonas aeruginosa from the structure of the virulence regulator LasR bound to its autoinducer. Journal of Biological Chemistry. 2007;282(18):13592-13600. doi:10.1074/jbc.M700556200.
[2] Gerdt JP, McInnis CE, Schell TL, Blackwell HE. Unraveling the contributions of hydrogen-bonding interactions to the activity of native and non-native ligands in the quorum-sensing receptor LasR. Organic & Biomolecular Chemistry. 2015;13(5):1453-1462. doi:10.1039/C4OB02252A.
[3] Gerdt JP, McInnis CE, Schell TL, Rossi FM, Blackwell HE. Mutational analysis of the quorum-sensing receptor LasR reveals interactions that govern activation and inhibition by non-lactone ligands. Chemistry & Biology. 2014;21(10):1361-1369. doi:10.1016/j.chembiol.2014.08.008.
[4] Castang S, Chantegrel B, Deshayes C, Dolmazon R, Gouet P, Haser R, Reverchon S, Nasser W, Hugouvieux-Cotte-Pattat N, Doutheau A. N-Sulfonyl homoserine lactones as antagonists of bacterial quorum sensing. Bioorganic & Medicinal Chemistry Letters. 2004;14(20):5145-5149. doi:10.1016/j.bmcl.2004.07.088.
[5] Frezza M, Castang S, Estephane J, Soulère L, Deshayes C, Chantegrel B, Nasser W, Queneau Y, Reverchon S, Doutheau A. Synthesis and biological evaluation of homoserine lactone derived ureas as antagonists of bacterial quorum sensing. Bioorganic & Medicinal Chemistry. 2006;14(14):4781-4791. doi:10.1016/j.bmc.2006.03.017.
[6] Boukraa M, Sabbah M, Soulère L, El Efrit ML, Queneau Y, Doutheau A. AHL-dependent quorum sensing inhibition: synthesis and biological evaluation of α-(N-alkyl-carboxamide)-γ-butyrolactones and α-(N-alkyl-sulfonamide)-γ-butyrolactones. Bioorganic & Medicinal Chemistry Letters. 2011;21(22):6876-6879. doi:10.1016/j.bmcl.2011.09.010.
[7] Schaefer AL, Hanzelka BL, Eberhard A, Greenberg EP. Quorum sensing in Vibrio fischeri: probing autoinducer-LuxR interactions with autoinducer analogs. Journal of Bacteriology. 1996;178(10):2897-2901. doi:10.1128/JB.178.10.2897-2901.1996.
更多相关文章,详见下方:
三种四元环锍盐模块化构建九类螺[2.3]己烷骨架:合成方法与生物电子等排体评价
多项理化性质接近苯甲酰胺,构象取向更接近磺酰胺:3-芳基-3-氨基氧杂环丁烷的双重等排体设计价值
酰胺键形成中缩合剂选型的判断逻辑:活化路径、副反应、差向异构化、后处理与安全性
炔酰胺缩合试剂:从低差向异构化活化路径到更接近实用的 N→C 反向成肽
β-酰氧基烯基酰胺(AAAs):一种值得关注的酰胺键与肽键构建新思路
TfOH(三氟甲磺酸)介导 N-芳基磺酰胺的选择性脱保护与磺酰基迁移:反应规律及合成启发


 危险品化学品经营许可证(带存储)