
趋化因子的分类、受体信号与免疫细胞迁移调控机制
趋化因子的分类、受体信号与免疫细胞迁移调控机制
趋化因子是一类调控细胞定向迁移的小分泌蛋白,主要通过趋化因子受体、细胞表面糖胺聚糖和细胞黏附系统建立空间信号,引导中性粒细胞、单核细胞、T细胞、NK细胞及其他细胞进入特定组织。趋化因子网络参与免疫监视、炎症细胞募集、造血细胞归巢、组织修复和肿瘤微环境形成,其作用受到配体浓度、受体表达、空间梯度、蛋白加工状态及响应细胞类型的共同影响。
关键词:趋化因子;Chemokine;CXC趋化因子;CC趋化因子;CXCR;CCR;细胞迁移;趋化梯度;免疫细胞募集;炎症反应
1 趋化因子的基本特征
1.1 趋化因子的基本功能
(1)细胞定向迁移
趋化因子可在组织液、血管内皮表面或细胞外基质中形成浓度梯度。表达相应受体的细胞感知梯度后建立前后极性,并沿趋化因子浓度升高的方向迁移,同时伴随整合素活化、细胞黏附和肌动蛋白重塑。
(2)炎症性与稳态性调控
炎症性趋化因子通常在感染或组织损伤后快速表达,负责募集炎症细胞;稳态性趋化因子则在特定组织中持续表达,参与造血细胞归巢、淋巴细胞定位、组织驻留和免疫监视。
(3)配体—受体网络
趋化因子网络具有明显的交叉性。同一种趋化因子可能结合多个受体,同一种受体也可能响应多种配体。例如,CXCR2可识别多种ELR阳性CXC趋化因子,CCL5则可作用于CCR1、CCR3和CCR5。因此,趋化因子表达升高需要结合受体表达和功能实验进行解释。
1.2 趋化因子的结构分类
(1)CXC趋化因子
CXC趋化因子的氨基端两个保守半胱氨酸之间间隔一个氨基酸。部分成员在第一个半胱氨酸前含有由谷氨酸、亮氨酸和精氨酸组成的ELR基序。ELR阳性成员主要参与中性粒细胞募集,ELR阴性成员则更多参与淋巴细胞迁移、血管调控和组织定位。
(2)CC趋化因子
CC趋化因子的氨基端两个保守半胱氨酸彼此相邻,主要通过CCR家族受体调节单核细胞、T细胞、嗜酸性粒细胞和树突状细胞迁移。
(3)CX3C和XC趋化因子
CX3C趋化因子的氨基端两个保守半胱氨酸之间间隔三个氨基酸,代表性成员为CX3CL1。XC趋化因子仅保留其他典型趋化因子四个保守半胱氨酸中的第二和第四个,即缺少第一和第三个保守半胱氨酸,代表性成员包括XCL1和XCL2。
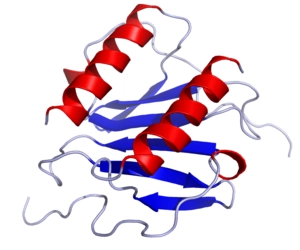
图1 趋化因子的三维结构特征
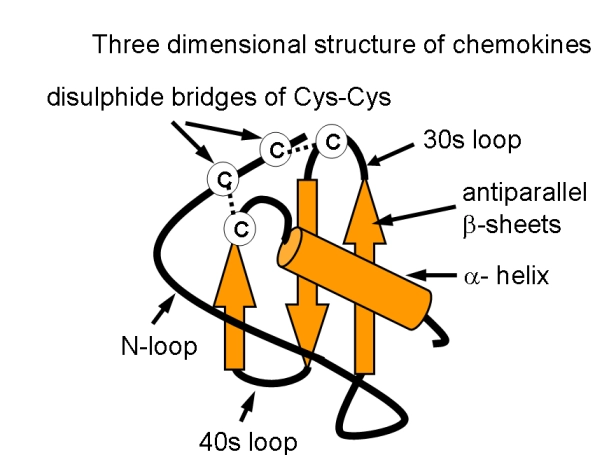
图2 趋化因子的保守结构域与二硫键连接模式
趋化因子类别 | 代表性成员 | 主要受体或作用轴 | 主要功能 |
ELR阳性CXC趋化因子 | CXCL1、CXCL2、CXCL3、CXCL5、CXCL6、CXCL7、CXCL8 | CXCR1、CXCR2 | 中性粒细胞募集、脱颗粒、活性氧生成和急性炎症 |
ELR阴性及特殊CXC趋化因子 | CXCL4、CXCL9、CXCL10、CXCL11 | CXCR3相关或糖胺聚糖依赖性机制 | 活化T细胞和NK细胞募集、血管调控及炎症调节 |
组织定位相关CXC趋化因子 | CXCL12、CXCL16、CXCL17 | CXCR4、ACKR3、CXCR6或尚未明确的受体 | 造血细胞归巢、组织驻留、黏膜免疫和细胞黏附 |
CC趋化因子 | CCL1、CCL3、CCL5、CCL8、CCL15、CCL17 | CCR1、CCR2、CCR3、CCR4、CCR5、CCR8等 | 单核细胞和淋巴细胞募集、慢性炎症及过敏反应 |
CX3C趋化因子 | CX3CL1 | CX3CR1 | 细胞黏附和趋化 |
XC趋化因子 | XCL1、XCL2 | XCR1 | 交叉呈递型树突状细胞募集 |
1.3 趋化因子受体
(1)经典趋化因子受体
经典趋化因子受体属于七次跨膜G蛋白偶联受体,根据配体类型分为CXCR、CCR、CX3CR和XCR。不同免疫细胞具有不同的受体表达谱,例如CXCR2主要参与中性粒细胞募集,CXCR3常见于活化T细胞和NK细胞,CXCR4参与造血细胞归巢,CCR4则与部分Th2细胞和调节性T细胞迁移有关。
(2)非典型趋化因子受体
ACKR1、ACKR2、ACKR3和ACKR4等非典型趋化因子受体通常不产生典型的Gi蛋白依赖性趋化信号,而是通过配体摄取、转运、呈递或清除调节组织中的趋化因子分布。ACKR3可结合CXCL12,并调节CXCL12–CXCR4轴的信号范围。
(3)种属差异
趋化因子网络存在明显的种属差异。人CXCL8是CXCR1和CXCR2的重要配体,而小鼠缺少与人CXCL8完全对应的直接同源分子,小鼠研究通常使用CXCL1、CXCL2或CXCL5分析相近的中性粒细胞募集过程。
2 CXC趋化因子的主要功能
2.1 ELR阳性CXC趋化因子与中性粒细胞募集
(1)CXCL1、CXCL2和CXCL3
CXCL1、CXCL2和CXCL3分别又称GROα、GROβ和GROγ,主要通过CXCR2促进中性粒细胞及部分髓系细胞迁移,参与感染、组织损伤和肿瘤微环境中的炎症细胞募集。
(2)CXCL5和CXCL6
CXCL5主要通过CXCR2促进中性粒细胞迁移。CXCL6可作用于CXCR1和CXCR2,其受体激活能力还可能受到氨基端蛋白水解加工影响。
(3)CXCL7及其加工形式
CXCL7来源于血小板前体蛋白PPBP的加工。PBP、CTAP-III和NAP-2代表不同加工形式,其中NAP-2具有较强的CXCR2激动和中性粒细胞趋化活性,因此不同CXCL7蛋白形式不能视为完全等效。
(4)CXCL8
CXCL8又称IL-8,可通过CXCR1和CXCR2促进中性粒细胞迁移、整合素活化、脱颗粒和活性氧生成。动物源CXCL8应优先用于相同种属的细胞,并通过功能实验确认受体激活能力。
2.2 CXCL4与血小板炎症调控
(1)来源与释放
CXCL4又称血小板因子4,主要储存在血小板α颗粒中,并在血小板活化后释放,参与血管损伤、白细胞募集和血栓炎症调控。
(2)糖胺聚糖结合
CXCL4具有较强的肝素和糖胺聚糖结合能力。肝素及其他带负电物质可能改变其聚集状态、空间分布和有效浓度,因此含肝素实验体系需要考虑蛋白复合物形成的影响。
(3)血管与髓系细胞调控
CXCL4可调节内皮细胞、单核细胞和巨噬细胞功能,其作用机制具有明显的细胞类型和实验条件依赖性,不能仅根据单一受体的表达进行判断。
2.3 CXCL9、CXCL10和CXCL11与CXCR3信号
(1)CXCR3阳性细胞募集
CXCL9、CXCL10和CXCL11通常由干扰素信号诱导表达,主要通过CXCR3促进活化T细胞和NK细胞向炎症组织迁移,参与抗病毒免疫、Th1型炎症和肿瘤免疫。
(2)配体间的功能差异
三种配体虽然共享CXCR3,但在受体结合、受体内化、β-arrestin募集和信号持续时间方面并不完全相同,因此不宜作为完全等效的刺激物相互替代。
2.4 CXCL12、CXCL16和CXCL17
(1)CXCL12–CXCR4/ACKR3轴
CXCL12又称SDF-1,主要作用于CXCR4,并可与ACKR3结合,参与造血干细胞骨髓归巢、免疫细胞迁移、组织修复和肿瘤细胞播散。
(2)CXCL16–CXCR6轴
CXCL16具有膜结合型和可溶型两种形式。膜结合型CXCL16可参与细胞黏附和脂质摄取,可溶型CXCL16则主要通过CXCR6促进活化T细胞和NK细胞迁移。可溶性重组蛋白不能完全替代膜结合型CXCL16的功能。
(3)CXCL17及其受体研究
CXCL17主要表达于部分黏膜组织,可影响单核细胞和其他髓系细胞迁移。目前其功能性受体尚未得到统一确认,研究时应以迁移、剂量反应和功能性阻断结果为主要依据。
3 CC趋化因子的主要功能
3.1 CCL1–CCR8信号
(1)受体与响应细胞
CCL1主要作用于CCR8,可募集部分CCR8阳性T细胞、调节性T细胞和髓系细胞。小鼠CCL1又称TCA-3。
(2)免疫调节作用
CCL1–CCR8轴参与Th2型免疫、组织驻留免疫细胞定位和肿瘤免疫微环境调节。使用CCL1进行迁移实验时,应结合CCR8表面表达和受体阻断结果进行判断。
3.2 CCL3和CCL5
(1)CCL3–CCR1/CCR5轴
CCL3又称MIP-1α,主要作用于CCR1和CCR5,可促进单核细胞、巨噬细胞、T细胞及其他炎症细胞迁移,并与其他炎症介质共同放大局部细胞浸润。
(2)CCL5的多受体作用
CCL5又称RANTES,可作用于CCR1、CCR3和CCR5,参与T细胞、单核细胞和嗜酸性粒细胞迁移。CCL5还具有较强的糖胺聚糖结合和聚集能力,其固定化状态和聚集形式可能影响受体激活。
3.3 CCL8、CCL15和CCL17
(1)CCL8的多受体特征
CCL8又称MCP-2,可与CCR1、CCR2、CCR3和CCR5等受体相互作用。研究CCL8功能时,应结合受体表达及单独或联合阻断分析不同受体的贡献。
(2)CCL15的加工依赖性
CCL15又称MIP-5,主要与CCR1和CCR3相关,其氨基端加工可改变受体激活和趋化能力,因此不同蛋白形式的有效浓度可能存在差异。
(3)CCL17–CCR4轴
CCL17又称TARC,是CCR4的重要配体,可募集Th2细胞、部分调节性T细胞和皮肤归巢T细胞,常用于过敏性炎症、皮肤炎症和肿瘤免疫研究。
4 趋化因子受体与细胞迁移信号
4.1 G蛋白依赖性信号
(1)Gi蛋白激活
经典趋化因子受体主要与Gi家族G蛋白偶联。配体结合受体后,Gαi可抑制腺苷酸环化酶,Gβγ则可激活PLCβ和PI3K等信号分子。
(2)PLCβ–Ca²⁺信号
PLCβ促进磷脂酰肌醇二磷酸分解,生成IP3和DAG。IP3促进胞内Ca²⁺释放,DAG参与蛋白激酶C活化。Ca²⁺通量可用于评价受体早期激活,但不能单独证明细胞发生定向迁移。
(3)PI3K与小GTP酶
PI3K信号在细胞前缘富集,并通过Rac、Cdc42和Rho等小GTP酶调节肌动蛋白聚合、伪足形成和细胞后缘收缩,使细胞沿趋化梯度迁移。
(4)整合素活化
趋化因子受体可通过由内向外信号提高整合素亲和力,使白细胞在血管内皮表面牢固黏附,并进一步完成爬行和跨内皮迁移。
4.2 糖胺聚糖与趋化梯度
(1)固定化梯度
趋化因子可与内皮细胞表面和细胞外基质中的肝素硫酸、硫酸软骨素等糖胺聚糖结合,从而限制自由扩散并形成固定化梯度。
(2)蛋白聚集状态
糖胺聚糖结合可能改变趋化因子的单体、二聚体和高聚体状态,因此趋化因子总浓度并不等同于可直接激活受体的游离浓度。
(3)实验模型差异
Transwell实验主要模拟可溶性梯度,而内皮细胞、三维基质和微流控模型更接近组织中的固定化梯度,不同模型的迁移结果不能直接等同。
4.3 受体脱敏与内化
(1)受体脱敏
持续或高浓度趋化因子刺激可引起受体磷酸化、β-arrestin募集和受体内化,使细胞对后续刺激的响应下降。
(2)钟形剂量反应
趋化因子浓度过低时不能形成有效刺激,浓度过高时可能导致受体脱敏或破坏空间梯度,因此趋化实验常表现为钟形剂量—反应曲线。
(3)交叉脱敏
不同趋化因子受体之间可能发生交叉脱敏。多种趋化因子联合使用时,结果可能表现为协同、竞争或相互抑制。
5 趋化因子的实验检测与结果判定
5.1 细胞迁移模型
(1)Transwell迁移实验
Transwell实验通过将趋化因子置于下室,检测细胞通过多孔膜迁移的数量,适合进行浓度筛选和多组比较。实验时应控制孔径、细胞接种量、孵育时间和血清浓度。
(2)微流控迁移实验
微流控系统可建立稳定且可控的趋化梯度,并连续记录细胞轨迹。通过分析迁移速度、方向性和前向迁移指数,可区分定向趋化和随机运动增强。
(3)三维基质模型
三维基质模型可观察细胞在立体环境中的迁移,但结果会受到基质孔径、硬度、降解能力和趋化因子吸附的共同影响。
(4)趋化与趋动的区分
趋化是沿浓度梯度发生的定向迁移,趋动则是随机运动能力增强。实验中应设置上下室等浓度对照,以排除细胞存活、黏附或随机运动变化造成的影响。
5.2 受体依赖性验证
(1)受体表达检测
可通过流式细胞术、免疫荧光、Western blot或转录检测分析趋化因子受体表达。其中,细胞表面受体检测通常更接近细胞的实际响应能力。
(2)受体阻断与基因干预
阻断抗体、小分子拮抗剂、siRNA或CRISPR敲除可用于验证受体依赖性。对于可结合多个受体的趋化因子,应分别进行单独和联合阻断。
(3)共享受体配体的验证
CXCL1、CXCL2、CXCL3和CXCL5可通过CXCR2阻断验证共同通路;研究CXCL6或CXCL8时,还应根据细胞类型评价CXCR1的参与。
5.3 重组趋化因子的使用条件
(1)种属匹配
人源、鼠源、猪源和大鼠源趋化因子应优先用于相同种属的细胞。跨种属使用前需要通过迁移、Ca²⁺通量或受体内化实验确认活性。
(2)蛋白成熟形式
CXCL7和CCL15等趋化因子的氨基端加工会改变其受体激活能力,实验中应关注产品序列和成熟形式。
(3)剂量与时间梯度
趋化因子实验应设置浓度梯度和时间梯度。单一高浓度处理容易引起受体脱敏,也难以获得完整的剂量—效应关系。
(4)内毒素与蛋白稳定性
中性粒细胞、单核细胞和巨噬细胞对内毒素较为敏感。实验中应关注重组蛋白的内毒素水平,并避免反复冻融或不当保存导致蛋白聚集和活性下降。
实验方法 | 主要检测内容 | 关键指标 | 判读重点 |
Transwell迁移实验 | 终点细胞迁移 | 迁移细胞数、迁移率、趋化指数 | 设置无梯度和等浓度对照 |
微流控趋化实验 | 稳定梯度中的动态迁移 | 方向性、速度、轨迹长度 | 区分趋化和随机运动增强 |
Ca²⁺通量检测 | 受体早期激活 | 荧光峰值及持续时间 | Ca²⁺升高不能单独证明迁移 |
受体内化检测 | 受体激活和脱敏 | 细胞表面受体变化 | 内化程度不一定等于趋化强度 |
下游信号检测 | PI3K、AKT、ERK、p38等信号 | 磷酸化水平及时间变化 | 设置受体阻断和时间梯度 |
受体敲低或敲除 | 受体依赖性 | 迁移及信号下降程度 | 排除其他受体代偿 |
流动黏附实验 | 白细胞黏附和跨内皮迁移 | 滚动、停留、牢固黏附和穿越数量 | 受剪切力和内皮状态影响 |
6 产品
6.1 中性粒细胞募集相关CXC趋化因子产品
货号 | 名称 | 级别和纯度 | 主要受体或作用轴 | 主要研究用途 |
Recombinant Mouse CXCL1/KC Protein | 无载体,PBS Only,≥95%(SDS-PAGE) | CXCR2 | 小鼠中性粒细胞迁移、急性炎症及CXCR2功能研究 | |
Recombinant Mouse CXCL1/KC Protein | 无动物源,无载体,生物活性,ActiBioPure™,无叠氮钠,高性能,PBS Only,≥97%(SDS-PAGE&HPLC) | CXCR2 | 小鼠中性粒细胞趋化、炎症细胞募集及CXCR2信号研究 | |
Recombinant Mouse CXCL1 Protein | ≥90%(SDS-PAGE) | CXCR2 | 小鼠CXCL1剂量—效应、细胞迁移及受体阻断研究 | |
Recombinant Human CXCL1/GRO alpha Protein | 无载体,PBS Only,≥90%(SDS-PAGE),见COA | CXCR2 | 人中性粒细胞迁移、急性炎症及肿瘤髓系细胞募集研究 | |
Recombinant Mouse CXCL2 Protein | 无载体,PBS Only,≥90%(SDS-PAGE) | CXCR2 | 小鼠感染、组织损伤及中性粒细胞募集研究 | |
Recombinant Human CXCL2/GRO beta Protein | 无载体,PBS Only,≥90%(SDS-PAGE) | CXCR2 | 人中性粒细胞趋化及CXCL1、CXCL2功能比较研究 | |
Recombinant Human GRO Gamma Protein | 无动物源,无载体,生物活性,ActiBioPure™,无叠氮钠,高性能,PBS Only,≥97%(SDS-PAGE&HPLC) | CXCR2 | 人CXCL3/GROγ介导的中性粒细胞迁移及CXCR2信号研究 | |
Recombinant Human CXCL3/GRO gamma Protein | 无载体,PBS Only,≥95%(SDS-PAGE),见COA | CXCR2 | CXCL1、CXCL2和CXCL3趋化活性及受体响应比较 | |
Recombinant Human CXCL5 Protein | 无动物源,无载体,生物活性,ActiBioPure™,无叠氮钠,高性能,PBS Only,≥97%(SDS-PAGE&HPLC) | CXCR2 | CXCL5–CXCR2轴、中性粒细胞募集及炎症微环境研究 | |
Recombinant Human CXCL5/ENA-70 Protein | 无载体,PBS Only,≥95%(SDS-PAGE),见COA | CXCR2 | 人CXCL5趋化活性及CXCR2依赖性研究 | |
CXCL6 | Moligand™ | CXCR1、CXCR2 | 中性粒细胞迁移、CXCR1与CXCR2受体选择性及信号研究 | |
Recombinant Mouse CXCL7 Protein | ≥90%(SDS-PAGE) | CXCR2相关轴 | 小鼠CXCL7功能、血小板炎症及中性粒细胞迁移研究 | |
Recombinant Human CXCL7/PBP Protein | 无动物源,无载体,生物活性,ActiBioPure™,无叠氮钠,高性能,PBS Only,≥97%(SDS-PAGE&HPLC) | CXCL7加工及CXCR2相关轴 | CXCL7前体加工、血小板趋化因子及成熟形式比较研究 | |
Recombinant Human CXCL7/NAP-2 Protein | 无载体,PBS Only,≥90%(SDS-PAGE),见COA | CXCR2 | 中性粒细胞迁移、脱颗粒及血小板来源炎症信号研究 | |
Recombinant Porcine IL-8/CXCL8 Protein | 无载体,PBS Only,≥95%(SDS-PAGE) | CXCR1、CXCR2 | 猪中性粒细胞迁移、感染炎症及CXCL8受体研究 | |
Recombinant Porcine IL-8/CXCL8 Protein | 无载体,His标签,SUMO标签,PBS Only,≥90%(SDS-PAGE) | CXCR1、CXCR2 | 猪源细胞趋化和CXCL8信号研究 |
6.2 CXCL4、CXCR3配体及组织定位相关CXC趋化因子产品
货号 | 名称 | 级别和纯度 | 主要受体或作用轴 | 主要研究用途 |
Recombinant Human CXCL4/PF4 Protein | 无载体,生物活性,ActiBioPure™,His标签,≥95%(SDS-PAGE),见COA | 糖胺聚糖结合及细胞类型依赖性信号 | 人血小板炎症、单核细胞调控、血管损伤及CXCL4复合物研究 | |
Recombinant Rat PF4 Protein | ≥90%(SDS-PAGE) | CXCL4相关信号 | 大鼠血小板活化、血管损伤和血栓炎症研究 | |
Recombinant Mouse PF4 Protein | ≥90%(SDS-PAGE) | CXCL4相关信号 | 小鼠血小板炎症、单核细胞调控及CXCL4功能研究 | |
Recombinant Human CXCL9 Protein | 无动物源,无载体,生物活性,ActiBioPure™,无叠氮钠,高性能,≥97%(SDS-PAGE&HPLC) | CXCR3 | 人活化T细胞和NK细胞迁移、Th1型免疫及肿瘤免疫研究 | |
Recombinant Human CXCL9/MIG Protein | 无载体,生物活性,ActiBioPure™,高性能,PBS Only,≥95%(SDS-PAGE) | CXCR3 | CXCR3激活、效应淋巴细胞募集及干扰素相关炎症研究 | |
Recombinant Mouse CXCL9/MIG Protein | 无载体,生物活性,ActiBioPure™,高性能,His标签,MBP标签,≥95%(SDS-PAGE),expressed in E. coli,见COA | CXCR3 | 小鼠T细胞迁移、感染炎症和肿瘤免疫模型研究 | |
Recombinant Human CXCL10/IP-10 Protein | 无载体,生物活性,ActiBioPure™,PBS Only,≥90%(SDS-PAGE) | CXCR3 | 人T细胞和NK细胞趋化、抗病毒免疫及肿瘤免疫研究 | |
Recombinant Mouse CXCL10/IP-10 Protein | 无动物源,无载体,生物活性,ActiBioPure™,无叠氮钠,高性能,PBS Only,≥97%(SDS-PAGE&HPLC) | CXCR3 | 小鼠干扰素反应、淋巴细胞浸润及炎症模型研究 | |
CXCL11 | Moligand™ | CXCR3 | CXCR3配体偏向性信号、受体内化及T细胞迁移研究 | |
Recombinant Human/Rhesus Macaque/Feline CXCL12/SDF-1 alpha Protein | 无载体,≥95%(SDS-PAGE),expressed in E. coli,见COA | CXCR4、ACKR3 | 造血细胞归巢、CXCR4信号、细胞迁移及跨种属功能研究 | |
Recombinant Mouse CXCL16 Protein | 无动物源,无载体,生物活性,ActiBioPure™,无叠氮钠,高性能,PBS Only,≥98%(SDS-PAGE&HPLC) | CXCR6 | 小鼠CXCR6阳性T细胞和NK细胞迁移及组织炎症研究 | |
Recombinant Human CXCL16 Protein | 无动物源,无载体,生物活性,ActiBioPure™,高性能,His标签,≥95%(SDS-PAGE) | CXCR6 | 人CXCL16–CXCR6轴、淋巴细胞迁移及血管炎症研究 | |
Recombinant Mouse CXCL17/VCC-1 Protein | 无载体,His标签,PBS Only,≥90%(SDS-PAGE),见COA | 功能性受体尚未统一明确 | 小鼠黏膜免疫、单核细胞迁移及CXCL17受体探索研究 |
6.3 CC趋化因子相关产品
货号 | 名称 | 级别和纯度 | 主要受体或作用轴 | 主要研究用途 |
Recombinant Human CCL1 Protein | 无动物源,无载体,生物活性,ActiBioPure™,无叠氮钠,高性能,PBS Only,≥97%(SDS-PAGE&HPLC) | CCR8 | 人CCL1–CCR8轴、调节性T细胞迁移及肿瘤免疫研究 | |
Recombinant Mouse CCL1/TCA-3 Protein | 无动物源,无载体,重组,ActiBioPure™,高性能,His标签,Fc标签,≥95%(SDS-PAGE) | CCR8 | 小鼠CCR8阳性细胞迁移、Th2型免疫及组织免疫调节研究 | |
Recombinant Human CCL3/MIP-1 alpha Protein | 无载体,生物活性,高性能,≥90%(SDS-PAGE) | CCR1、CCR5 | 单核细胞、T细胞和其他炎症细胞迁移及CCR1/CCR5功能研究 | |
Recombinant Human CCL5/RANTES Protein | ≥95%(SDS-PAGE) | CCR1、CCR3、CCR5 | T细胞、单核细胞和嗜酸性粒细胞迁移及慢性炎症研究 | |
Recombinant Human CCL8/MCP-2 Protein | 无动物源,无载体,生物活性,ActiBioPure™,无叠氮钠,高性能,PBS Only,≥96%(SDS-PAGE&HPLC) | CCR1、CCR2、CCR3、CCR5 | 单核细胞、T细胞及嗜酸性粒细胞迁移和受体选择性研究 | |
Recombinant Human CCL8/MCP-2 Protein | 无载体,生物活性,ActiBioPure™,高性能,≥95%(SDS-PAGE) | CCR1、CCR2、CCR3、CCR5 | 人CCL8浓度—效应、受体阻断及炎症细胞募集研究 | |
Recombinant Human CCL15 Protein | 无动物源,无载体,生物活性,ActiBioPure™,无叠氮钠,高性能,PBS Only,≥97%(SDS-PAGE&HPLC) | CCR1、CCR3 | 单核细胞和髓系细胞迁移、CCL15加工及受体功能研究 | |
Recombinant Human CCL15/MIP-5 Protein | 无载体,生物活性,ActiBioPure™,高性能,≥95%(SDS-PAGE),见COA | CCR1、CCR3 | CCL15–CCR1轴、慢性炎症及髓系细胞募集研究 | |
Recombinant Human TARC/CCL17 Protein | 无动物源,无载体,生物活性,ActiBioPure™,无叠氮钠,高性能,PBS Only,≥97%(SDS-PAGE&HPLC) | CCR4 | Th2细胞和部分调节性T细胞迁移、过敏性炎症及肿瘤免疫研究 | |
Recombinant Human CCL17/TARC Protein | 无载体,≥95%(SDS-PAGE) | CCR4 | CCL17–CCR4轴、皮肤炎症及CCR4阳性T细胞趋化研究 |
趋化因子研究需要同时考虑配体种属、受体表达、空间梯度和蛋白成熟形式。通过迁移检测、受体阻断及适当的无梯度对照,可更准确地判断特定趋化因子—受体轴对免疫细胞募集的实际作用。


 危险品化学品经营许可证(带存储)