
溶酶体在代谢和自身免疫性疾病中的作用
溶酶体在代谢和自身免疫性疾病中的作用
溶酶体是细胞分解代谢和质量控制的核心细胞器,负责降解来自胞内自噬、胞外内吞、吞噬和巨胞饮作用的物质。除降解功能外,溶酶体还参与营养感知、mTOR信号调控、抗原加工、炎症反应、质膜修复、细胞外囊泡释放和细胞死亡调控。
关键词:溶酶体;自噬;内溶酶体系统;TFEB;TFE3;mTORC1;LAMP1;LAMP2A;CMA;炎症;自身免疫;代谢疾病
1 溶酶体的功能定位
1.1 分解代谢与细胞稳态
溶酶体含有多种酸性水解酶,可降解蛋白质、脂质、糖类和核酸。它不仅处理胞外摄入的物质,也通过自噬途径清除受损细胞器、蛋白聚集体和代谢废物。因此,溶酶体是细胞在营养应激、内质网应激、蛋白稳态失衡和氧化应激条件下维持稳态的重要节点。
进入溶酶体的物质来源 | 主要途径 | 功能意义 |
胞外可溶性物质 | 内吞作用、巨胞饮作用 | 营养获取、受体调控、胞外物质降解 |
大颗粒或病原体 | 吞噬作用 | 免疫清除、抗原加工、炎症调控 |
受损细胞器 | 巨自噬、选择性自噬 | 维持细胞器质量控制 |
蛋白聚集体 | 自噬、伴侣介导的自噬 | 维持蛋白稳态 |
内体和多泡体内容物 | 内溶酶体融合 | 受体降解、胞外囊泡形成相关调控 |
1.2 溶酶体不仅是“降解终点”
传统上,溶酶体常被理解为细胞废物处理结构,但实际上它也是信号平台。mTORC1、mTORC2、TFEB、TFE3、AMPK、Rab小GTP酶、V-ATPase和多种转运蛋白共同调节溶酶体的酸化、定位、融合、再生和代谢输出。
溶酶体功能异常不只是造成底物堆积,还会影响氨基酸再利用、脂质动员、抗原递呈、炎症小体激活、免疫细胞存活和组织代谢适应。因此,溶酶体是代谢疾病和自身免疫性疾病之间的重要交汇点。
2 内溶酶体-自噬系统
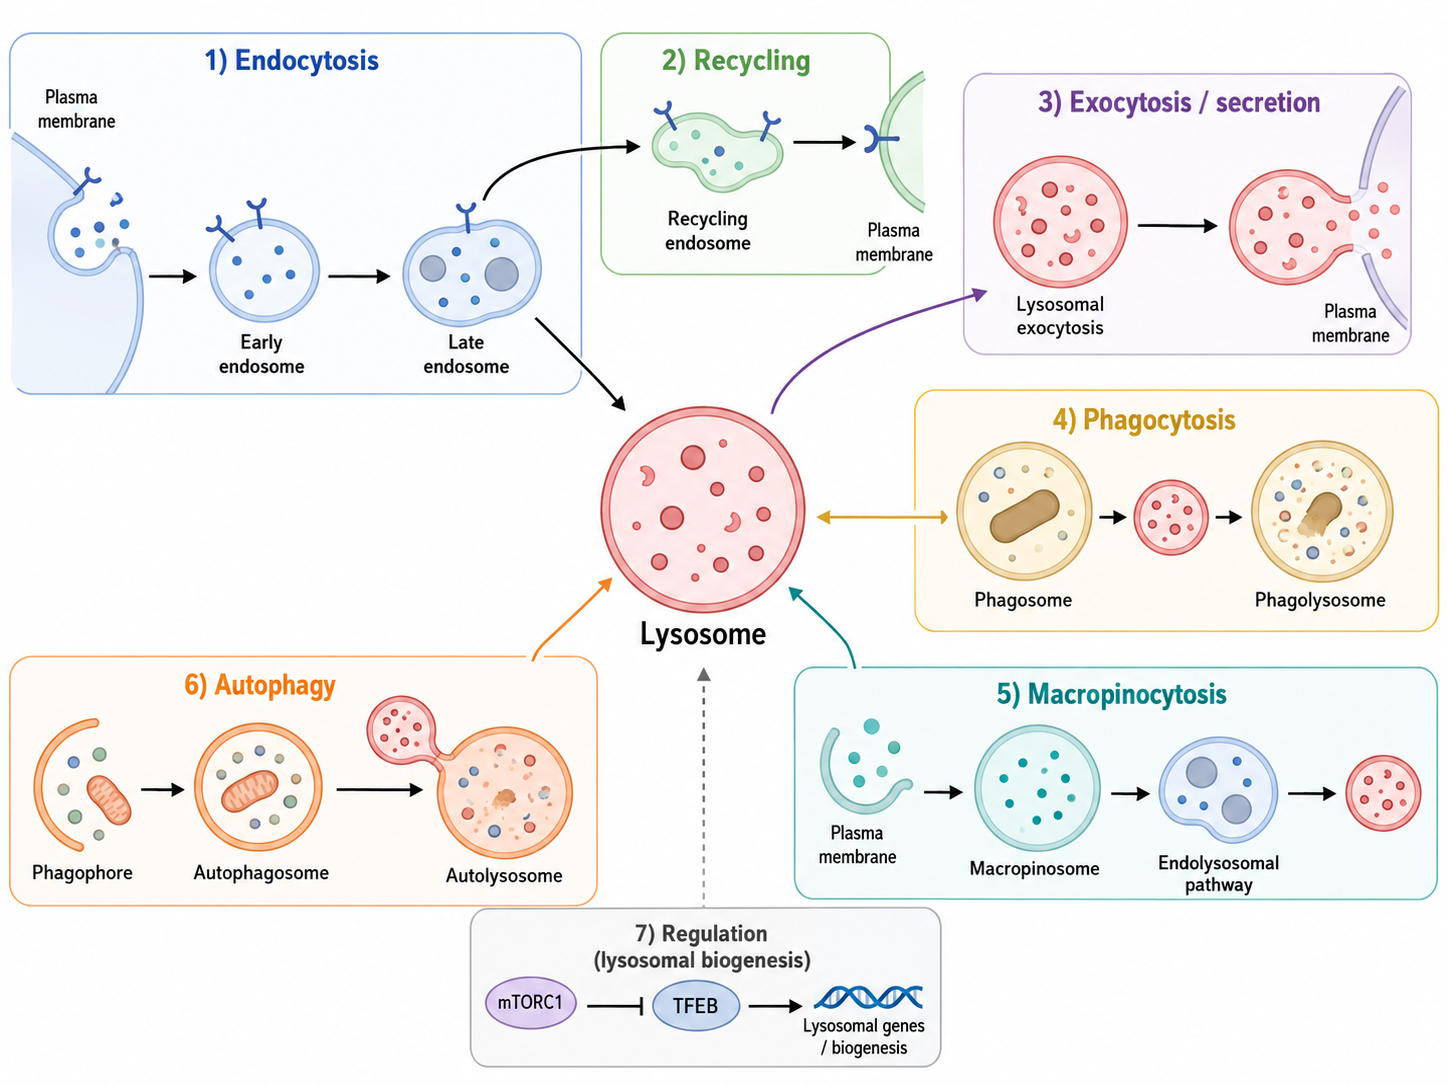
图1 溶酶体相关膜运输、降解与生物发生调控示意图
2.1 内吞、吞噬和巨胞饮作用
内吞作用可将细胞外物质和质膜受体摄入细胞,形成早期内体。早期内体可将部分受体回收到质膜,也可成熟为晚期内体,并与溶酶体融合形成内溶酶体结构。该过程参与受体降解、营养物质获取和细胞外信号终止。
吞噬作用主要发生在巨噬细胞、树突状细胞和中性粒细胞等免疫细胞中,可通过吞噬体摄取病原体、凋亡细胞或组织碎片。吞噬体与溶酶体融合后,内容物被酸性水解酶降解,并可进入抗原加工和递呈流程。
巨胞饮作用则通过形成较大的囊泡摄取胞外液和可溶性分子,在肿瘤细胞、免疫细胞和营养应激细胞中具有重要意义。
途径 | 主要底物 | 与溶酶体的关系 |
内吞作用 | 受体、配体、胞外可溶性物质 | 经内体成熟后进入溶酶体 |
吞噬作用 | 病原体、细胞碎片、大颗粒 | 吞噬体与溶酶体融合降解 |
巨胞饮作用 | 胞外液、蛋白质、营养物质 | 巨胞饮体与溶酶体融合 |
LC3相关吞噬作用(LAP) | 吞噬体内容物 | LC3修饰吞噬体,促进成熟和降解 |
2.2 巨自噬、内体微自噬和伴侣介导的自噬
自噬是溶酶体降解胞内物质的主要方式。其中,巨自噬(macroautophagy)通过双膜自噬体包裹胞质物质或细胞器,再与溶酶体融合形成自溶酶体。该过程依赖ULK1复合物、Vps34复合物、ATG5-ATG12-ATG16L1复合物和LC3脂化。
内体微自噬(endosomal microautophagy,e-MI)可使胞质物质进入内体系统,依赖ESCRT相关机制。伴侣介导的自噬(chaperone-mediated autophagy,CMA)则更具底物选择性,带有KFERQ样基序的蛋白可被HSPA8识别,并通过LAMP2A转运进入溶酶体腔降解。
自噬类型 | 关键分子 | 主要特点 |
巨自噬 | ULK1、Vps34、ATG5、ATG12、ATG16L1、LC3 | 通过自噬体包裹大分子复合物或细胞器 |
内体微自噬 | ESCRT复合体 | 胞质物质进入内体系统 |
伴侣介导的自噬 | HSPA8、LAMP2A | 选择性降解含KFERQ样基序的蛋白 |
LC3相关吞噬作用(自噬相关过程,非经典自噬类型) | LC3、吞噬体相关蛋白 | 连接吞噬作用与自噬样膜修饰过程 |
2.3 溶酶体胞吐和细胞外囊泡释放
溶酶体可向细胞外周移动并与质膜融合,发生溶酶体胞吐。该过程参与质膜修复、水解酶局部释放和细胞外基质重塑。溶酶体还可与多泡体系统相互作用,影响细胞外囊泡释放。
在免疫和炎症环境中,溶酶体胞吐既可能帮助细胞修复损伤,也可能促进炎症介质、水解酶或组织破坏相关成分释放。因此,溶酶体分泌功能在自身免疫和慢性炎症中具有双重意义。
3 溶酶体功能的核心调控机制
3.1 酸化与水解酶活性
溶酶体腔内酸性环境主要依赖液泡型ATP酶(V-ATPase)维持。低pH为组织蛋白酶、脂肪酶、糖苷酶和核酸酶等水解酶提供适宜活性环境。若溶酶体酸化受损,即使溶酶体数量增加,降解能力也可能下降。
溶酶体活性评估不能只看LAMP1或LAMP2表达。LAMP蛋白升高可能代表溶酶体数量增加,也可能反映溶酶体负荷增加或降解阻滞。更可靠的判断应结合酸性探针、组织蛋白酶活性、LC3-II、p62/SQSTM1、自噬通量和功能读数。
3.2 TFEB/TFE3与CLEAR网络
TFEB和TFE3是溶酶体生物发生和自噬基因表达的重要转录因子。它们可结合靶基因启动子中的CLEAR元件,诱导溶酶体膜蛋白、管腔水解酶、转运蛋白和ATG基因表达。
在营养充足条件下,mTORC1可磷酸化TFEB/TFE3,使其滞留于胞质;当营养缺乏、能量应激或溶酶体压力出现时,mTORC1活性下降,TFEB/TFE3去磷酸化并进入细胞核,增强溶酶体和自噬相关转录程序。
状态 | mTORC1活性 | TFEB/TFE3定位 | 结果 |
营养充足 | 活跃 | 主要滞留胞质 | 抑制过度自噬和溶酶体生物发生 |
饥饿/能量应激 | 降低 | 转入细胞核 | 增强自噬和溶酶体基因表达 |
溶酶体负荷增加 | 可降低或重塑 | 核转位增强 | 促进溶酶体修复和再生 |
慢性病理压力 | 持续异常 | 可能代偿性激活或失衡 | 与炎症、代谢异常和组织损伤相关 |
3.3 mTORC1、mTORC2与营养感知
mTORC1定位于溶酶体膜的胞质侧,是氨基酸、能量和生长因子信号整合的核心。其活化促进蛋白合成和细胞生长,同时抑制ULK1介导的自噬起始。mTORC2也与溶酶体相关信号有关,参与细胞存活、细胞骨架和代谢调控。
溶酶体由此成为营养感知平台,而不是单纯降解区室。当营养供应充足时,mTORC1抑制自噬;当营养缺乏或细胞压力增加时,自噬释放氨基酸和脂质,为细胞提供代谢补偿。
3.4 溶酶体运动与细胞器互作
溶酶体可沿微管系统在核周和细胞外周之间移动。核周定位有利于与内质网、高尔基体、线粒体和自噬体融合;细胞外周定位则有助于受体调控、胞吐、质膜修复和局部水解酶释放。
溶酶体还可与线粒体形成接触位点,参与线粒体裂变、钙信号、脂质交换和代谢协调。溶酶体定位异常会影响自噬通量、细胞迁移、免疫细胞活化和组织损伤反应。
4 溶酶体损伤、炎症和细胞死亡
4.1 溶酶体膜损伤与组织蛋白酶释放
溶酶体膜受损后,组织蛋白酶可泄漏到胞质中,引发溶酶体依赖性细胞死亡。组织蛋白酶还可切割Bid,连接溶酶体损伤与线粒体凋亡通路。
溶酶体膜损伤并不一定立即导致细胞死亡。细胞可通过ESCRT介导的膜修复或溶噬(lysophagy)清除受损溶酶体。若修复和清除失败,则会引发持续炎症和细胞死亡。
4.2 ROS、NLRP3炎症小体和焦亡
受损溶酶体可产生或放大ROS信号,并促进NLRP3炎症小体激活。NLRP3激活后可促进IL-1β和IL-18成熟释放,并诱导焦亡。这一过程在自身免疫、感染、痛风样炎症、代谢炎症和肾脏损伤中具有重要意义。
溶酶体异常 | 下游结果 | 疾病关联 |
溶酶体膜破裂 | 组织蛋白酶释放 | 细胞死亡、组织损伤 |
ROS升高 | 氧化损伤、炎症放大 | 慢性炎症、代谢应激 |
NLRP3激活 | IL-1β/IL-18释放、焦亡 | 自身免疫、代谢炎症 |
溶噬不足 | 受损溶酶体积累 | 蛋白稳态障碍、细胞功能衰退 |
酸化不足 | 降解能力下降 | 蛋白聚集、脂质堆积、免疫异常 |
4.3 溶酶体与铁死亡
溶酶体可通过铁储存、铁释放和铁蛋白自噬等过程影响细胞内游离铁水平。溶酶体损伤、ROS增加和游离铁积累可促进脂质过氧化,从而与铁死亡发生联系。
在代谢病、神经退行性疾病和炎症性损伤中,溶酶体-铁稳态-脂质过氧化轴可能是连接蛋白稳态、氧化应激和细胞死亡的重要机制。
5 溶酶体与免疫稳态
5.1 抗原加工和MHC II递呈
内溶酶体系统参与MHC II类抗原加工和递呈。外源性抗原经内吞或吞噬进入内体-溶酶体途径后被水解酶加工,并在MHC II类区室中装载到MHC II分子上,最终递呈给CD4⁺T细胞。
若溶酶体酸化、水解酶活性或内体成熟异常,可能影响抗原加工效率,导致免疫激活不足或异常自身抗原暴露。自身免疫性疾病中,抗原处理、细胞死亡产物清除和核酸感知异常常与溶酶体功能改变有关。
5.2 免疫细胞存活和分化
长寿命免疫细胞依赖自噬和溶酶体维持线粒体质量、蛋白稳态和代谢适应。T细胞、B细胞、巨噬细胞和树突状细胞在活化、分化和效应功能中均需要溶酶体参与。
自噬异常可改变Treg/Th17平衡、影响效应T细胞代谢、削弱巨噬细胞清除病原体能力,并增加炎症小体活化。此类改变可推动自身免疫和慢性炎症持续存在。
5.3 自噬失调与炎症放大
自噬可清除损伤线粒体、蛋白聚集体和细胞内病原体,从而限制ROS、mtDNA释放和炎症小体激活。若自噬通量下降,细胞内损伤信号难以及时清除,炎症反应会被放大。
免疫过程 | 溶酶体/自噬作用 | 功能后果 |
抗原呈递 | 抗原降解和MHC II装载 | 影响T细胞激活 |
病原体清除 | 吞噬体-溶酶体融合 | 限制感染和炎症 |
T细胞分化 | 调控代谢和蛋白稳态 | 影响Treg/Th17平衡 |
炎症小体控制 | 清除损伤线粒体和DAMPs | 降低IL-1β相关炎症 |
长寿命免疫细胞维持 | 清除损伤细胞器和蛋白 | 维持免疫细胞功能 |
6 溶酶体在代谢性疾病中的作用
6.1 脂肪肝、NAFLD和NASH
肝细胞依赖自噬和脂肪吞噬(lipophagy)降解脂滴并释放脂肪酸。FOXO1可诱导ATG基因表达,促进自噬介导的脂滴分解。自噬还可降低内质网应激和胰岛素抵抗,对肝细胞脂质稳态具有保护作用。
在NAFLD和NASH中,溶酶体蛋白表达异常、自噬通量改变和脂滴清除不足均可出现。若脂肪吞噬下降,脂滴积累、脂毒性、炎症和纤维化风险会增加。LC3相关吞噬作用也被认为可能参与肝纤维化保护机制。
6.2 糖尿病和胰岛素抵抗
糖尿病和胰岛素抵抗状态下,营养过剩、脂毒性、糖毒性、AGEs和氧化应激可干扰溶酶体功能。自噬不足会加重内质网应激、线粒体损伤和炎症反应,并影响胰岛β细胞存活和胰岛素分泌。
在周围组织中,溶酶体-自噬系统还影响脂滴动员、线粒体质量控制和胰岛素信号敏感性。溶酶体功能下降可能使细胞无法有效处理过量营养和损伤蛋白,从而推动代谢炎症。
6.3 神经退行性疾病
神经元和其他终末分化长寿命细胞具有较高基础自噬需求。溶酶体活性不足会导致蛋白聚集体、受损线粒体和异常脂质难以及时清除,与帕金森病、阿尔茨海默病和肌萎缩性侧索硬化症等疾病相关。
在神经系统炎症性疾病中,如EAE和慢性炎症性脱髓鞘性多神经病变,自噬失调也被观察到。该现象提示溶酶体不仅参与神经元自身稳态,还参与中枢免疫和炎症调控。
6.4 溶酶体贮积病
溶酶体贮积病是由溶酶体酶、转运蛋白或相关膜蛋白缺陷导致的底物蓄积性疾病。其病理不仅来自底物堆积,还涉及自噬阻断、线粒体功能障碍、炎症激活和组织结构损害。
当肾脏、神经系统或心肌受累时,溶酶体功能缺陷常表现为蛋白聚集、线粒体自噬受损和细胞死亡增加。
7 溶酶体在自身免疫性疾病中的作用
7.1 系统性红斑狼疮
系统性红斑狼疮(SLE)中,自噬和溶酶体过程的异常可影响免疫细胞分化、细胞死亡产物清除和自身抗原暴露。Treg与Th17细胞失衡与T细胞自噬改变有关;同时,自身抗体和补体沉积可损伤组织细胞,诱导溶酶体应激、ROS生成和慢性炎症。
在狼疮肾炎中,免疫复合物沉积和补体激活可损伤肾小球细胞,进一步影响足细胞和肾小管细胞自噬-溶酶体功能。
7.2 炎症性肠病
炎症性肠病(IBD)中,自噬介导的细菌清除不足、抗原递呈异常和炎症小体活化增强均可参与疾病进展。肠道上皮细胞和免疫细胞的溶酶体功能缺陷会削弱对肠道菌群的控制,促进生态失调和炎症持续。
Paneth细胞中的溶酶体缺陷可影响抗菌肽分泌,使肠道屏障和微生态稳态受损,这是IBD中溶酶体功能异常的重要切入点。
7.3 Sjögren综合征
Sjögren综合征中,外分泌腺组织可出现自噬活性改变。部分研究提示,小唾液腺T细胞区域自噬活性增加,而唾液腺上皮细胞中与凋亡、分泌和溶酶体功能相关的蛋白表达异常。
LAMP3等溶酶体相关膜蛋白在该疾病中具有研究价值,但其并非专属于溶酶体,也可见于晚期内体和特定免疫激活状态。因此,在Sjögren综合征研究中,应将LAMP3与LAMP1、LAMP2、LC3、p62和功能性自噬通量指标联合分析。
7.4 多发性硬化和EAE
多发性硬化及其实验模型EAE中,自噬和溶酶体过程可影响中枢神经系统炎症、抗原呈递、髓鞘损伤和免疫细胞浸润。自噬失调可能改变T细胞效应功能、髓鞘抗原处理和神经胶质细胞炎症状态。
疾病 | 相关细胞/组织 | 溶酶体相关变化 | 可能后果 |
SLE | T细胞、B细胞、肾小球细胞 | 自噬异常、免疫复合物相关损伤 | Treg/Th17失衡、慢性炎症、肾损伤 |
IBD | 肠上皮细胞、Paneth细胞、巨噬细胞 | 细菌清除不足、抗菌肽分泌异常 | 菌群失衡、炎症小体激活 |
Sjögren综合征 | 唾液腺上皮细胞、T细胞 | 自噬活性和LAMP蛋白表达异常 | 腺体损伤、分泌功能障碍 |
MS/EAE | T细胞、神经胶质细胞 | 自噬和抗原处理异常 | 神经炎症、脱髓鞘损伤 |
CIDP | 外周神经相关免疫细胞 | 自噬失调 | 慢性炎症性神经损伤 |
8 溶酶体在代谢和自身免疫性疾病研究相关产品选择
产品模块 | 货号 | 产品名称 | 级别和纯度 | 应用定位 |
溶酶体示踪 | LysoTracker Blue DND-22 |
| 标记酸性溶酶体/晚期内溶酶体,适合活细胞溶酶体定位和酸性囊泡观察 | |
溶酶体示踪 | LysoTracker Red | ≥97% | 用于溶酶体红色荧光标记,适合与LAMP1、LC3B等指标做共定位 | |
溶酶体示踪 | LysoTracker Yellow HCK 123(溶酶体示踪黄色荧光探针) | BioReagent, 生物染色剂, 适用于荧光分析, 用于显微镜, ≥95% | 检测酸性囊泡和溶酶体分布,适合溶酶体酸化和数量变化分析 | |
溶酶体pH/酸化 | LysoSensor PDMPO | ≥98% | pH敏感型溶酶体探针,适合判断溶酶体酸化功能是否受损 | |
溶酶体荧光成像 | FluoLyso™ Red(溶酶体红色荧光探针) |
| 用于溶酶体红色成像,适合观察溶酶体定位、数量和形态变化 | |
溶酶体荧光成像 | FluoLyso™ Deep Red(溶酶体深红色荧光探针) |
| 深红通道溶酶体探针,适合多重荧光共定位实验 | |
溶酶体荧光成像 | Lysosome tracer Green(溶酶体绿色荧光探针) | 适用于免疫荧光(IF), BioReagent, 生物染色剂, 分子生物学级, 1mM | 绿色通道溶酶体示踪,适合与红色自噬、线粒体或炎症标志物联合成像 | |
溶酶体荧光成像 | Lyso-Tracker Red(溶酶体红色荧光探针) |
| 用于酸性溶酶体追踪,适合细胞溶酶体定位和活性变化观察 | |
溶酶体AIE探针 | 溶酶体红色探针(聚集诱导发光) | BioReagent, 生物染色剂, 用于显微镜, ≥98%(HPLC), 10mM in DMSO | AIE型溶酶体探针,适合活细胞溶酶体成像和多通道实验 | |
溶酶体膜标志 | LAMP1/CD107a Antibody | 敲低验证 | 标记溶酶体/晚期内溶酶体,分析溶酶体数量、定位、胞吐和融合事件 | |
溶酶体膜标志 | Recombinant LAMP1 Antibody | 重组, ExactAb™, 已验证, 0.2 mg/mL | 检测LAMP1,适合IF、WB和IHC中评估溶酶体稳态 | |
溶酶体膜标志 | LAMP1 Mouse mAb | 无载体, ExactAb™, 无叠氮钠, 已验证, ≥95%(SDS-PAGE), 1.0 mg/mL | 高纯度LAMP1抗体,适合溶酶体定位、溶酶体胞吐和疾病组织检测 | |
溶酶体膜标志 | Recombinant LAMP2 Antibody | 重组, ExactAb™, 已验证, 0.8 mg/mL | 检测LAMP2,适合分析溶酶体膜稳态、自噬降解和溶酶体相关疾病 | |
溶酶体膜标志 | Recombinant LAMP2 Antibody | 敲低验证 | 用于LAMP2表达验证,适合溶酶体稳态和自噬终末降解研究 | |
溶酶体水解酶 | Cathepsin B Mouse mAb | 无载体, ExactAb™, 无叠氮钠, 已验证, 高性能, 见COA | 检测Cathepsin B,适合分析溶酶体蛋白降解、膜损伤和炎症小体激活 | |
溶酶体水解酶 | Cathepsin D Mouse mAb | 无载体, ExactAb™, 无叠氮钠, 已验证, 高性能, PBS Only, ≥95%(SDS-PAGE), 1.0 mg/mL | 检测Cathepsin D,适合评估溶酶体蛋白降解能力和活性溶酶体状态 | |
溶酶体水解酶 | Recombinant Cathepsin D Antibody | 敲低验证 | 用于Cathepsin D检测,适合溶酶体酸性水解功能和疾病组织分析 | |
溶酶体水解酶 | Cathepsin S Mouse mAb | 无载体, ExactAb™, 无叠氮钠, 已验证, 高性能, 见COA | Cathepsin S与抗原加工和免疫炎症密切相关,适合自身免疫和抗原呈递研究 | |
溶酶体水解酶 | Recombinant Human Cathepsin B Protein | 无动物源, 无载体, 生物活性, ActiBioPure™, His标签, PBS Only, ≥95%(SDS-PAGE) | 可用于Cathepsin B活性、抑制剂筛选或抗体验证 | |
溶酶体水解酶 | Recombinant Human Cathepsin D Protein | 无动物源, 无载体, His标签, ≥95%(SDS-PAGE) | 可用于Cathepsin D相关酶学、溶酶体蛋白降解和抗体验证 | |
自噬体标志 | LC3B Mouse mAb | 无载体, ExactAb™, 无叠氮钠, 已验证, 高性能, PBS Only, ≥95%(SDS-PAGE), 1.0 mg/mL | 检测LC3-I/LC3-II变化,分析自噬体形成和自噬通量 | |
自噬体标志 | Recombinant LC3B Antibody | 重组, ExactAb™, 已验证, 见COA | 用于LC3B检测和自噬通量分析,适合代谢病、炎症和免疫细胞研究 | |
自噬体标志检测 | 人微管相关蛋白轻链3B(LC3B)酶联免疫吸附测定试剂盒 | BioReagent | 定量检测人LC3B水平,辅助评价自噬相关变化 | |
选择性自噬底物 | SQSTM1 Mouse mAb | 无载体, ExactAb™, 已验证, 高性能, 见COA | 检测p62/SQSTM1,辅助判断自噬底物累积和自噬阻滞 | |
选择性自噬底物检测 | 人死骨片1(SQSTM1)酶联免疫吸附测定试剂盒 | BioReagent | 定量检测人SQSTM1/p62,适合炎症、代谢病和自噬阻滞研究 | |
自噬核心蛋白 | ATG5 Antibody | 敲低验证 | 检测ATG5,评估自噬膜延伸和自噬通路完整性 | |
自噬核心蛋白 | Recombinant APG5L/ATG5 Antibody | 重组, ExactAb™, 已验证, 0.3 mg/mL | 用于ATG5检测,适合肾病、免疫细胞和代谢应激自噬研究 | |
自噬核心蛋白 | ATG7 Antibody | ExactAb™, 已验证, 0.6 mg/mL | 检测ATG7,评估LC3脂化系统和自噬缺陷 | |
自噬核心蛋白 | Recombinant ATG7 Antibody | 敲低验证 | 用于ATG7表达验证,适合自噬通量和炎症放大机制研究 | |
溶酶体转录调控 | Recombinant TFEB Antibody | 重组, ExactAb™, 已验证, 见COA | 检测TFEB,适合分析TFEB核转位、CLEAR网络和溶酶体生物发生 | |
溶酶体转录调控 | Recombinant TFE3 Antibody | 重组, ExactAb™, 已验证, 见COA | 检测TFE3,分析TFEB/TFE3介导的溶酶体和自噬基因转录调控 | |
溶酶体转录调控检测 | 人转录因子结合IGHM增强子3(TFE3)酶联免疫吸附测定试剂盒 | BioReagent | 定量检测TFE3,适合溶酶体应激和自噬转录调控研究 | |
溶酶体损伤识别 | Recombinant Human Galectin-3 Protein | 无载体, 生物活性, ActiBioPure™, 高性能, PBS Only, ≥95%(SDS-PAGE) | Galectin-3常用于溶酶体膜损伤/糖基暴露相关机制研究,可用于功能或验证实验 | |
溶酶体损伤/炎症检测 | 人半乳糖凝集素3(Galectin-3)酶联免疫吸附测定试剂盒 | BioReagent | 检测Galectin-3,适合溶酶体损伤、炎症和组织纤维化相关研究 | |
溶酶体损伤/炎症检测 | 小鼠半乳糖凝集素3(Galectin-3)酶联免疫吸附测定试剂盒 | BioReagent | 检测小鼠Galectin-3,适合自身免疫、代谢炎症和动物模型研究 | |
溶酶体功能抑制 | (R)-Hydroxychloroquine phosphate |
| 用于调节溶酶体酸化和自噬降解,适合自身免疫与自噬通量干预研究 | |
溶酶体功能抑制 | (S)-Hydroxychloroquine sulfate |
| 羟氯喹相关异构体,用于溶酶体功能和自噬抑制相关研究 | |
溶酶体蛋白酶抑制 | JF526–Pepstatin A TFA |
| Pepstatin A类荧光/标记化衍生物,适合Cathepsin D相关溶酶体活性研究 | |
溶酶体蛋白酶抑制 | Pepstatin Trifluoroacetate | 10mM in DMSO | 抑制酸性天冬氨酸蛋白酶,适合溶酶体蛋白降解和自噬通量验证 | |
溶酶体蛋白酶抑制 | Leupeptin | ≥98% | 抑制溶酶体半胱氨酸/丝氨酸蛋白酶,常用于自噬通量和溶酶体降解阻断实验 |
溶酶体是连接营养感知、蛋白稳态、免疫调控和炎症反应的关键细胞器。其功能异常可导致自噬通量受阻、抗原处理异常、炎症小体激活、脂质代谢紊乱和组织损伤。代谢疾病和自身免疫性疾病中的溶酶体改变并非单一方向,应结合细胞类型、疾病阶段、溶酶体活性和自噬通量综合判断。


 危险品化学品经营许可证(带存储)