
灵芝提取物的结构—功能关系:多糖与三萜的皮肤保护作用及配方递送策略
灵芝提取物的结构—功能关系:多糖与三萜的皮肤保护作用及配方递送策略
引言
护肤品中的灵芝提取物不是一种结构明确的单体成分,而是由多糖、三萜、甾醇、蛋白质、糖蛋白及其他伴随成分组成的混合物。灵芝的具体物种、使用部位、培养方式和提取工艺都会改变这些成分的种类与比例。因此,同样标注为“灵芝提取物”的原料,实际化学组成和护肤作用可能存在明显差异。
原料来源与提取方式决定活性成分谱;多糖结构决定其溶解性、皮肤分布和细胞作用;多糖与三萜分别从氧化应激和炎症信号环节调节炎症性衰老;表面水合、表皮分化和炎症控制共同支持屏障功能;复配体系与递送方式决定这些成分能否在配方中保持稳定并到达适宜的作用位置。
1 原料来源与提取方式决定活性成分谱
1.1 灵芝提取物由哪些成分组成
灵芝子实体、菌丝体和孢子均可作为提取原料。不同部位的细胞壁组成、次生代谢产物和蛋白质含量不同,形成的提取物也具有不同的化学特征。
灵芝中与皮肤研究关系较密切的成分主要包括以下几类。
成分类型 | 主要结构或代表成分 | 与皮肤作用相关的研究方向 |
多糖 | β-葡聚糖、杂多糖、酸性多糖、多糖—蛋白复合物 | 表面水合、成膜、氧化应激调节、免疫与炎症信号调节 |
三萜 | 灵芝酸、灵芝烯酸、灵芝内酯酸等羊毛甾烷型三萜 | 炎症信号调节、氧化损伤防护、角质形成细胞分化研究 |
糖蛋白及蛋白复合物 | 多糖链与蛋白质结合形成的复合结构 | 细胞迁移、氧化应激防护和皮肤递送研究 |
甾醇 | 麦角甾醇及相关甾醇 | 膜相互作用和炎症调节研究 |
脂肪酸及其他小分子 | 不同链长脂肪酸、酚类和核苷类成分 | 抗氧化、配方相容性及辅助生物活性 |
多糖和三萜是灵芝提取物中研究较多的两类成分。多糖具有较强亲水性,主要进入水提液;多数灵芝三萜极性较低,在乙醇等有机溶剂中的提取效率较高。2025年的一项超高效液相色谱—四极杆飞行时间质谱研究在灵芝乙醇提取物中鉴定出105种化合物,包括100种三萜和5种脂肪酸,说明醇提物可以形成以三萜为主的成分谱。[1]
1.2 提取方法如何改变原料性质
提取或加工方式 | 主要富集成分 | 对原料性质的影响 |
热水提取 | 水溶性多糖、糖蛋白、部分蛋白质 | 形成以亲水性高分子为主的提取物,适合水相配方 |
稀醇或高比例乙醇提取 | 三萜、甾醇、部分脂肪酸和酚类物质 | 提高疏水性小分子比例,需要解决水相分散和析出问题 |
酶辅助提取 | 细胞壁释放的多糖和低聚糖 | 可提高提取率,并改变部分多糖的分子量和支化结构 |
超声或微波辅助提取 | 多糖及小分子混合物 | 缩短提取时间,处理强度过高时可能引起多糖链断裂 |
发酵处理 | 胞外多糖、低聚糖、肽类及发酵转化产物 | 改变分子量、单糖比例和伴随成分组成 |
分级沉淀与色谱纯化 | 特定分子量或电荷的多糖级分 | 有利于研究结构—活性关系和建立质量标准 |
提取过程同时影响产率和分子结构。温度、时间、酸碱度、机械剪切及酶处理均可能改变多糖链长、支化程度和空间构象。评价灵芝多糖原料时,除了总多糖含量,还应关注β-葡聚糖含量、单糖组成、糖苷键类型、分子量分布、蛋白质比例和溶液状态。[2,3]
2 灵芝多糖的结构决定溶解性、皮肤分布和生物活性
2.1 灵芝多糖不是一种固定结构
灵芝多糖由多种糖链组成。部分多糖以葡萄糖为主要单糖,属于葡聚糖;部分多糖还含有半乳糖、甘露糖、阿拉伯糖、木糖、岩藻糖或葡糖醛酸,属于杂多糖或酸性多糖。
研究较多的灵芝β-葡聚糖常含有β-(1→3)连接主链和β-(1→6)连接支链。灵芝孢子和菌丝体中还分离出含β-(1→4)、β-(1→6)及β-(1→3,6)连接的多糖。不同糖苷键、支链位置和单糖比例会改变多糖链的柔性、水合作用和细胞识别特征。[2–4]
2.2 分子量影响黏度、成膜和扩散
高分子量多糖具有较大的水动力体积,糖链之间容易发生缠结,通常表现出较高黏度和较强的表面成膜能力。其主要作用位置集中于配方水相、皮肤表面和角质层,可以提高表面持水、改善干燥触感并延长原料在皮肤上的停留时间。
适度降低分子量可改善多糖的溶解速度和分散均匀性,使更多糖链片段处于可接近状态。分子量过度降低则会削弱黏度、成膜和表面驻留能力。原料设计需要根据作用目标选择分子量范围,而不是单纯追求低分子化。
2.3 支化和空间构象影响细胞反应
部分灵芝β-D-葡聚糖可在磷酸盐缓冲液中形成三股螺旋刚性链。2018年的研究将一种灵芝β-D-葡聚糖分为不同分子量级分,发现这些级分在溶液中均保持三股螺旋特征,并可促进淋巴细胞增殖和巨噬细胞形态改变。分子量较高的级分对巨噬细胞白细胞介素-6和肿瘤坏死因子-α释放的促进作用较明显。[4]
这类结果说明,灵芝多糖对免疫信号的影响由分子量、支化方式、空间构象、使用浓度和细胞状态共同决定。高分子量三股螺旋葡聚糖可增强部分免疫细胞的应答;低分子量或结构不同的多糖则可在过度炎症模型中降低炎症信号。
2.4 结构特征如何转化为皮肤作用
灵芝多糖从结构到皮肤作用的关系可概括为:
单糖组成、糖苷键和支化结构
→ 分子量、构象、电荷及水合作用
→ 溶解性、黏度、成膜性和配方稳定性
→ 皮肤表面驻留、角质层分布及局部释放
→ 保湿、抗氧化防御和炎症信号调节
角质层细胞间区域由高度有序的脂质层构成,是亲水性高分子向皮肤深部扩散的主要阻力。未经专门递送设计的高分子灵芝多糖主要分布于皮肤表面和角质层;进入活表皮的程度受到分子量、聚集状态、载体和角质层完整性的影响。该分布适合发挥水合、成膜和角质层微环境调节作用。[14]
3 炎症性衰老是怎样形成的
3.1 什么是炎症性衰老
炎症性衰老通常对应英文“inflammaging”,是指随年龄增长和长期环境暴露形成的持续性、低强度炎症状态。其产生通常没有明确的急性感染来源,而是由氧化损伤、细胞器功能下降、衰老细胞积累、屏障受损和炎症消退不足共同维持。
皮肤长期接触紫外线、空气污染、干燥、温度变化、糖化产物和反复刺激。这些因素可增加活性氧(reactive oxygen species,ROS),损伤DNA、膜脂、蛋白质和线粒体,并激活炎症与细胞衰老程序。[5,17]
3.2 炎症性衰老的恶性循环
其核心过程可表示为:
紫外线、污染、干燥和代谢压力 → ROS增加、线粒体功能下降和DNA损伤 → 核因子κB和丝裂原活化蛋白激酶等应激通路激活 → 炎症因子、趋化因子和基质金属蛋白酶增加 → 角质形成细胞和成纤维细胞进入衰老或低修复状态 → 衰老相关分泌表型持续释放炎症介质和蛋白酶 →表皮更新减慢、细胞外基质降解和屏障结构受损 → 水分流失增加,外界刺激物和微生物相关成分更易作用于活表皮 →形成新的氧化应激和炎症刺激
衰老相关分泌表型(senescence-associated secretory phenotype,SASP)是这一循环中的重要放大环节。衰老细胞停止正常增殖后,仍可分泌白细胞介素、趋化因子、生长因子和基质降解酶,影响邻近细胞和组织微环境。
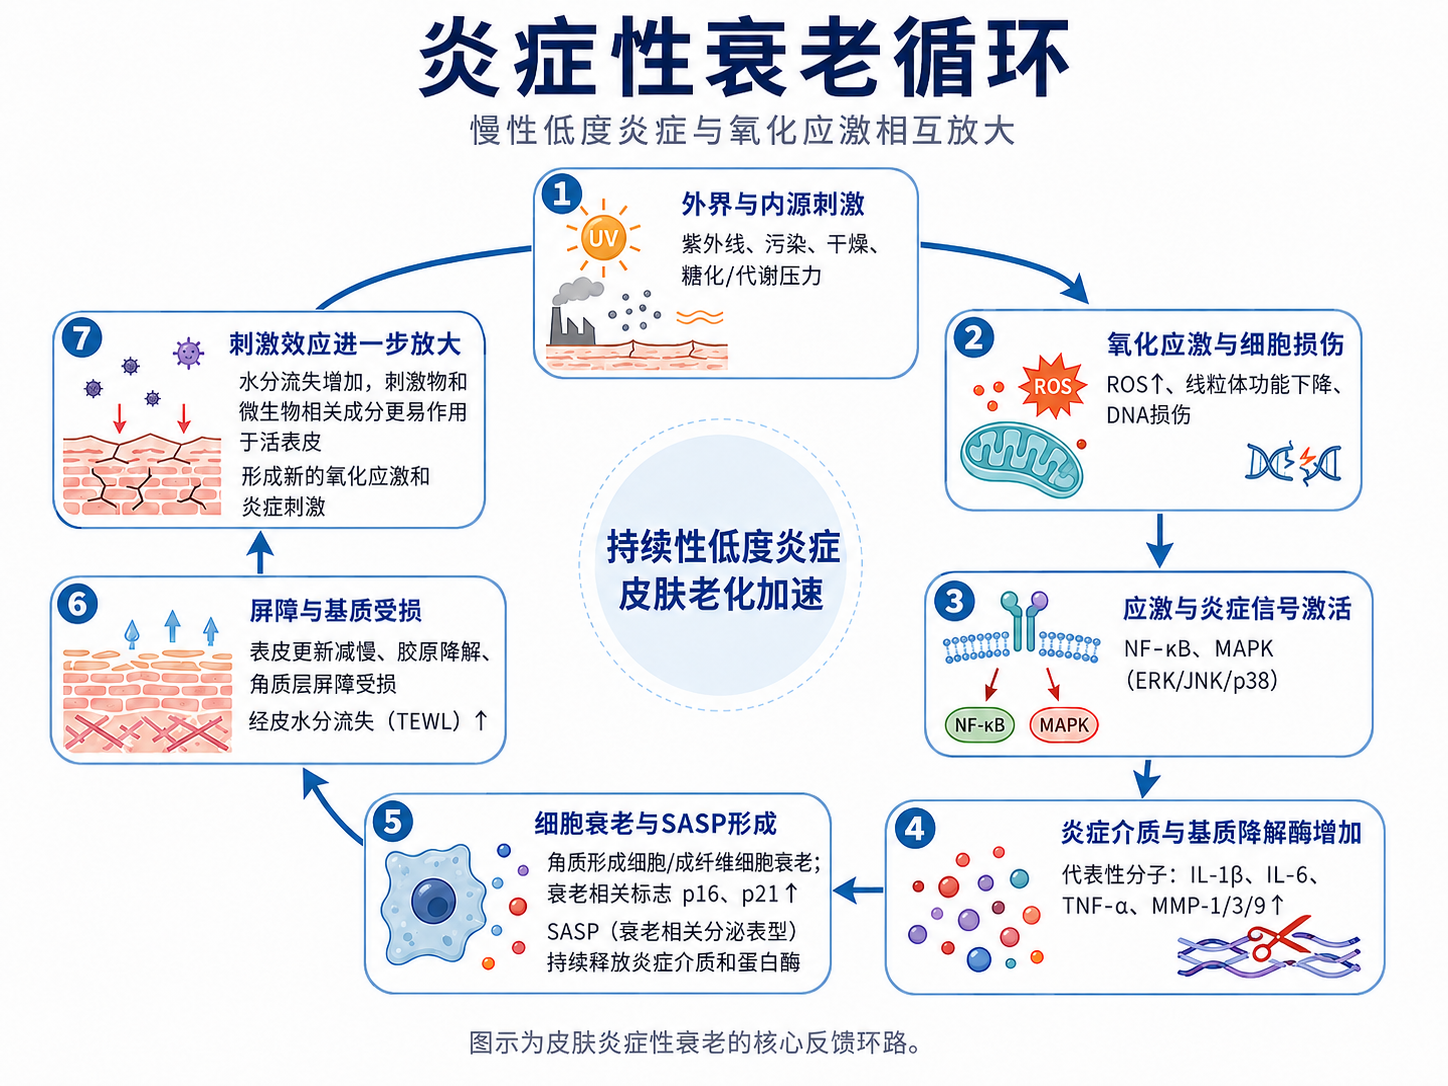
紫外线B(ultraviolet B,UVB)诱导的角质形成细胞和小鼠皮肤模型显示,细胞衰老标志物p16和p21升高时,白细胞介素-1β、白细胞介素-6、基质金属蛋白酶-1、基质金属蛋白酶-3和基质金属蛋白酶-9也随之增加,并伴随核因子κB和哺乳动物雷帕霉素靶蛋白信号增强。[6]
4 灵芝多糖如何调节氧化应激
4.1 自由基清除
部分灵芝多糖在2,2-二苯基-1-苦基肼自由基、ABTS自由基、羟自由基和超氧阴离子检测中表现出清除能力。直接清除作用与还原性末端、羟基、糖醛酸、结合蛋白及伴随酚类成分有关。
不同灵芝多糖在化学抗氧化实验中的结果差异较大。纯化程度、分子量、蛋白质比例和残留小分子都会影响测定值。
4.2 激活Keap1—Nrf2—ARE抗氧化防御
Kelch样ECH相关蛋白1(Kelch-like ECH-associated protein 1,Keap1)在基础状态下促进核因子E2相关因子2(nuclear factor erythroid 2-related factor 2,Nrf2)降解。氧化还原状态发生变化后,Nrf2稳定并进入细胞核,与抗氧化反应元件(antioxidant response element,ARE)结合,促进多种抗氧化和解毒酶表达。
主要下游分子包括:
① 血红素加氧酶-1;
② NAD(P)H醌氧化还原酶1;
③ 谷氨酸—半胱氨酸连接酶;
④ 谷胱甘肽转移酶;
⑤ 与谷胱甘肽合成和过氧化物还原相关的酶。
在人皮肤成纤维细胞过氧化氢损伤模型中,多个灵芝多糖级分降低了细胞内ROS和丙二醛水平,提高超氧化物歧化酶、过氧化氢酶和谷胱甘肽过氧化物酶活性,并促进Nrf2及其下游抗氧化基因表达。[8]
4.3 减少ROS驱动的胶原降解信号
ROS既能直接氧化细胞成分,也能激活丝裂原活化蛋白激酶(mitogen-activated protein kinase,MAPK)通路中的细胞外信号调节激酶、c-Jun氨基末端激酶和p38。随后,激活蛋白-1(activator protein-1,AP-1)活性增强,促进基质金属蛋白酶(matrix metalloproteinase,MMP)表达。
MMP-1参与Ⅰ型和Ⅲ型纤维胶原的初始裂解。MMP表达长期升高会加速真皮基质破坏,使胶原纤维排列疏松并降低组织力学稳定性。
在UVB损伤的人皮肤成纤维细胞中,灵芝多糖处理降低了ROS和衰老相关β-半乳糖苷酶阳性细胞比例,同时降低MMP-1,并提高Ⅰ型前胶原相关CICP指标。[7]
4.4 三萜富集提取物对角质形成细胞的保护
灵芝乙醇提取物富含三萜类成分。在过氧化氢损伤的HaCaT人角质形成细胞中,特定灵芝乙醇提取物提高细胞存活率、减少早期凋亡,并调节蛋白激酶B、细胞外信号调节激酶、p53和p21等应激相关信号。该提取物同时促进角质形成细胞迁移,说明该三萜富集的灵芝乙醇提取物可参与氧化损伤防护和再上皮化相关过程。[10]
5 灵芝多糖与三萜如何调节炎症信号
5.1 TLR4—NF-κB通路
Toll样受体4(Toll-like receptor 4,TLR4)可识别细菌脂多糖及部分组织损伤相关信号。受体激活后,通过髓样分化因子88等接头蛋白启动激酶级联反应,使核因子κB(nuclear factor kappa B,NF-κB)进入细胞核,促进炎症基因表达。
主要过程为:
脂多糖或损伤相关信号
→ TLR4激活
→ IKK复合物活化及IκB降解
→ NF-κB进入细胞核
→ 白细胞介素-1β、白细胞介素-6、肿瘤坏死因子-α和诱导型一氧化氮合酶表达增加
持续的NF-κB激活还会增强SASP,连接慢性炎症与细胞衰老。
5.2 多糖与灵芝酸A的联合调节
2025年的研究分离出一种低分子量β-D-葡聚糖GLP-1,其主链由β-(1→3)和β-(1→4)连接交替组成。灵芝酸A与GLP-1按1∶4的质量浓度比组合后,在脂多糖诱导的RAW264.7小鼠巨噬细胞中降低一氧化氮、ROS、白细胞介素-1β、白细胞介素-6和肿瘤坏死因子-α,提高白细胞介素-10,并改善线粒体膜电位。基因和蛋白检测显示,该组合抑制了TLR4/NF-κB信号。[9]
这一结果为灵芝多糖与三萜联合调节炎症提供了实验依据,其可能的互补作用包括:
①多糖参与细胞表面信号、氧化还原平衡和线粒体稳态调节;
②灵芝酸A作为相对亲脂的小分子,可作用于膜相关和细胞内信号过程;
③ROS下降可减轻NF-κB的氧化还原敏感性激活;
④炎症因子下降又可减少免疫细胞和线粒体产生的新ROS。
5.3 多糖结构与细胞状态共同决定炎症反应
不同实验条件下,灵芝多糖可表现出不同的免疫调节方向。
多糖与实验状态 | 观察到的作用 | 作用含义 |
高分子量、三股螺旋β-葡聚糖作用于静息免疫细胞 | 促进淋巴细胞增殖,并提高部分炎症因子释放 | 增强免疫识别和细胞应答 |
低分子量特定β-D-葡聚糖作用于脂多糖刺激的巨噬细胞 | 与灵芝酸A共同降低炎症因子和ROS | 调节过度激活的炎症信号 |
结构未充分表征的粗多糖提取物 | 结果受伴随蛋白、酚类和小分子影响 | 需要结合原料质量标准解释功效 |
6 灵芝来源成分如何支持皮肤屏障功能
6.1 多糖的表面水合和成膜作用
灵芝多糖含有大量羟基,可通过氢键结合水分,并在皮肤表面形成水合膜。该作用能够提高角质层表面含水量、改善干燥粗糙和摩擦感,并减少低湿环境下水分迅速散失。
2026年一项研究使用从培养菌丝体中获得的β-(1→3,1→6)-葡聚糖富集多糖。30名受试者连续使用28天后,仪器检测显示皮肤水合指标较基线提高7.5%,同时皱纹、皮肤明亮度和红斑指标出现一定改善。[11]
该人体研究采用使用前后比较设计,反映的是特定菌丝体多糖和特定制剂的短期使用结果。
6.2 丝聚蛋白、兜甲蛋白和内披蛋白的屏障作用
丝聚蛋白由前体蛋白原丝聚蛋白加工产生,参与角蛋白纤维聚集和角质细胞压实。丝聚蛋白进一步降解形成游离氨基酸及其衍生物,是天然保湿因子的重要来源。
兜甲蛋白是角化包膜的重要结构蛋白,能够通过交联增强角质细胞外周结构。内披蛋白在角化包膜形成早期提供交联支架。三者共同参与角质形成细胞终末分化和角质层结构建立。[18]
6.3 灵芝发酵多糖对屏障相关指标的调节
白灵芝与海带共同发酵所得的多糖组分,在UVB损伤的HaCaT角质形成细胞中提高丝聚蛋白、兜甲蛋白、内披蛋白、水通道蛋白3和半胱天冬酶-14等指标,并调节激肽释放酶7、MMP-9和炎症因子。该研究将其作用与瞬时受体电位香草酸亚型4—Keap1/Nrf2信号联系起来。[12]
这类发酵原料同时含有海带多糖、灵芝代谢产物、蛋白质及发酵转化产物,其作用反映的是完整发酵组分,而不是单一灵芝β-葡聚糖。
6.4 灵芝三萜对角质形成细胞分化的影响
2026年的研究分析了富含灵芝内酯酸A的鹿角形灵芝提取物。该提取物在HaCaT细胞中提高丝聚蛋白和兜甲蛋白信使RNA表达;灵芝内酯酸A单体提高丝聚蛋白和内披蛋白信使RNA表达。提取物和单体还降低了金黄色葡萄球菌刺激引起的白细胞介素-1β和肿瘤坏死因子-α释放。[13]
这些结果说明,灵芝提取物对屏障相关分化的影响可能由多糖、三萜和其他伴随成分共同参与。
6.5 屏障改善如何减少新的炎症刺激
屏障功能下降会提高经皮水分流失(transepidermal water loss,TEWL),破坏角质层含水状态和细胞间脂质排列。外界刺激物、污染物和微生物相关分子也更容易作用于活表皮,引起角质形成细胞释放炎症介质。
屏障改善后可能形成的保护链路为:
表面水合和角质细胞分化改善 → 角质层连续性和力学稳定性提高 → 水分流失与刺激物进入减少 → 角质形成细胞应激减轻 → 炎症因子和蛋白酶释放下降 → 对屏障蛋白及细胞连接的继发性损伤减少
灵芝多糖主要提供水合、成膜和细胞信号调节,角质层脂质结构的重建仍需要神经酰胺、胆固醇和游离脂肪酸等脂质成分。[14]
7 与神经酰胺和透明质酸的复配逻辑
7.1 与神经酰胺复配:水相保护与脂质屏障互补
角质层细胞间脂质主要由神经酰胺、胆固醇和游离脂肪酸组成。这些脂质形成连续的层状结构,控制水分外流和外界物质进入。[14]
灵芝多糖与神经酰胺作用于屏障的不同部分。
成分 | 主要作用位置 | 主要作用 |
灵芝多糖 | 配方水相、皮肤表面和角质层 | 结合水分、形成水合膜、调节氧化应激和炎症 |
神经酰胺 | 角质层细胞间脂质区域 | 参与层状脂质排列,降低屏障通透性 |
胆固醇 | 角质层细胞间脂质区域 | 调节脂质层流动性和相行为 |
游离脂肪酸 | 角质层细胞间脂质区域 | 参与脂质层排列和表面酸性环境维持 |
合理的复配结构是将灵芝多糖稳定分散于水相,将神经酰胺与胆固醇、脂肪酸及适宜乳化剂共同构建层状乳液或脂质颗粒。从配方设计角度看,该组合可分别覆盖水合作用、炎症相关调节和脂质屏障补充等不同环节。
7.2 与透明质酸复配:建立多聚糖水合网络
透明质酸是一类高亲水性糖胺聚糖,具有吸湿、黏弹和流变调节能力。外用透明质酸主要改善皮肤表面水合、柔滑度和成膜状态,其表现受分子量、交联和化学修饰影响。[15]
灵芝多糖与透明质酸复配可用于构建复合水合体系:
①透明质酸提供吸湿、润滑和黏弹性;
②灵芝多糖提供成膜、表面持水及氧化应激调节;
③不同分子量组合可调节即时肤感和保湿持续性。
两类亲水性高分子同时使用时,需要控制总聚合物浓度。浓度过高可能增加拉丝、黏腻、搓泥和干燥后膜层不均的风险。电解质、防腐剂、阳离子聚合物和乳化体系也可能改变多糖链的伸展和聚集状态。
7.3 复配方向比较
复配组合 | 核心目标 | 配方设计重点 |
灵芝多糖+神经酰胺体系 | 水相保护与脂质屏障互补 | 神经酰胺分散、脂质比例、层状结构和乳液稳定性 |
灵芝多糖+透明质酸 | 提高水合、成膜和肤感 | 分子量搭配、总聚合物浓度、黏度和搓泥控制 |
灵芝多糖+三萜 | 同时调节氧化应激和炎症信号 | 水相与脂质相分载、三萜增溶及多糖稳定 |
灵芝多糖+神经酰胺+透明质酸 | 建立水合—脂质—炎症调节组合 | 避免体系过度增稠,平衡吸收感与屏障持续性 |
8 配方递送决定活性成分能否到达适宜位置
8.1 多糖递送的重点是分散、驻留和释放
高分子灵芝多糖的配方问题主要包括溶解缓慢、链缠结、聚集沉淀、微生物风险和黏度漂移。适合的配方形式包括水凝胶、凝胶乳、层状乳液、成膜精华和亲水性囊泡体系。
多糖递送设计需要关注:
① 保持水溶或均匀分散状态;
② 避免长期储存中的分子聚集和沉降;
③ 控制皮肤表面成膜厚度和干燥触感;
④ 延长角质层接触时间;
⑤ 根据目标作用决定是否需要提高活表皮上层的局部释放。
高分子多糖用于表面水合时,不需要追求大量进入真皮。用于角质形成细胞信号调节时,可通过分子量控制、载体包载和角质层亲和性设计提高局部可用性。
8.2 三萜递送的重点是增溶和皮肤分配
灵芝酸、灵芝烯酸和灵芝内酯酸等三萜在水中的溶解度有限。直接加入水剂容易出现析出、结晶、容器吸附和有效浓度下降。
适合的配方方式包括:油相增溶;磷脂囊泡;纳米乳或微乳;纳米结构脂质载体;环糊精包合以及层状液晶乳液。
递送体系需要在提高三萜分散度的同时控制刺激性和对角质层脂质的扰动。
8.3 多糖与三萜适合分相承载
同时含有多糖和三萜的灵芝原料具有明显的亲水—亲脂差异。较合理的配方结构为:
水相承载标准化灵芝多糖 + 油相、磷脂或包合载体承载灵芝三萜 + 层状乳化界面控制两类成分的释放
这种分相设计有利于减少多糖聚集和三萜析出,并分别调节表面驻留、角质层分配和活表皮释放。
8.4 微乳递送的研究示例
2025年的研究将灵芝糖蛋白制备为油包水型微乳。该体系平均液滴粒径约19 nm,包封率为96.17%。在36小时体外皮肤渗透实验中,微乳的累计透过率为20.98%,糖蛋白水溶液为5.31%。微乳在HaCaT细胞和紫外线损伤大鼠模型中还降低了ROS、炎症因子和部分MMP指标。[16]
该研究说明,递送体系可以明显改变灵芝来源高分子复合物的稳定性和皮肤分配。具体效果取决于载体组成、表面活性剂、粒径、皮肤模型和活性物结构。
9 现有证据处于什么阶段
研究层级 | 代表性结果 | 可支持的结论 |
化学与结构研究 | 鉴定多糖糖苷键、分子量、三股螺旋及三萜组成 | 说明不同灵芝原料不具有统一的化学结构和配方行为 |
人皮肤成纤维细胞 | 降低ROS、MMP-1和衰老细胞比例,增强Nrf2相关防御 | 支持抗氧化和光损伤防护机制 |
HaCaT角质形成细胞 | 调节屏障蛋白、细胞迁移、炎症因子和氧化应激 | 支持表皮分化和屏障功能研究 |
RAW264.7巨噬细胞 | 特定低分子量多糖与灵芝酸A抑制TLR4/NF-κB | 支持多糖—三萜联合调节炎症的机制 |
动物皮肤模型 | 糖蛋白微乳改善紫外线损伤相关指标 | 支持递送体系和局部皮肤作用 |
短期人体使用研究 | 特定β-葡聚糖富集原料使用28天后提高皮肤含水量 | 支持特定原料和制剂的短期保湿表现 |
目前关于灵芝提取物的皮肤研究以细胞实验为主。人体证据主要来自特定菌丝体多糖和特定制剂,原料种类、添加量和研究设计尚未形成统一标准。
10 灵芝提取物活性成分、多糖结构、氧化应激与炎症调节、皮肤屏障及配方递送相关代表化学品分类与科研应用
表1 灵芝三萜、甾醇与核苷类特征成分
分类 | Cas编号 | 阿拉丁货号 | 名称 | 规格或纯度 | 产品特色与应用 |
灵芝酸A型羊毛甾烷三萜 | 81907-62-2 | 灵芝酸A | ≥98% | 用于灵芝酸A的色谱质谱识别、醇提物成分比较,以及多糖—三萜联合调节炎症信号研究。 | |
灵芝酸B型羊毛甾烷三萜 | 81907-61-1 | 灵芝酸B | Moligand™, ≥97% | 用于灵芝酸B的色谱保留、质谱碎片、三萜组成及不同灵芝原料成分差异研究。 | |
灵芝酸C2型羊毛甾烷三萜 | 103773-62-2 | 灵芝酸 C2 | ≥98% | 用于灵芝酸C2的定性分析、三萜指纹图谱、醇提工艺比较及结构活性研究。 | |
灵芝酸D型羊毛甾烷三萜 | 108340-60-9 | Ganoderic acid D | ≥99% | 用于灵芝酸D的液相色谱和质谱分析、三萜组成比较及细胞作用研究。 | |
灵芝酸DM型羊毛甾烷三萜 | 173075-45-1 | Ganoderic acid DM | ≥99% | 用于灵芝酸DM的成分鉴定、三萜谱扩展、提取物质量比较及结构活性研究。 | |
灵芝酸F型羊毛甾烷三萜 | 98665-15-7 | 灵芝酸F | ≥95% | 用于灵芝酸F的色谱质谱鉴定、灵芝三萜组成分析及不同提取级分比较。 | |
灵芝酸G型羊毛甾烷三萜 | 98665-22-6 | 灵芝酸G | ≥98% | 用于灵芝酸G的成分识别、三萜指纹图谱及灵芝酸同系物结构差异研究。 | |
灵芝酸H型羊毛甾烷三萜 | 98665-19-1 | 灵芝酸H | ≥98% | 用于灵芝酸H的色谱分析、不同灵芝部位三萜组成比较及细胞活性筛选。 | |
灵芝内酯酸A型C27三萜 | 95311-94-7 | Lucideric acid A | ≥98% | 用于灵芝内酯酸A的成分鉴定、C27三萜组成分析及角质形成细胞屏障相关指标研究。 | |
灵芝内酯酸B型C27三萜 | 95311-95-8 | 赤芝酸B | ≥98% | 用于灵芝内酯酸B的色谱分离、质谱识别、C27三萜组成及结构差异研究。 | |
灵芝真菌甾醇成分 | 57-87-4 | 麦角固醇 | ≥97% | 用于灵芝甾醇组成分析、原料鉴别、醇提物评价及甾醇相关细胞研究。 | |
灵芝嘌呤核苷成分 | 58-61-7 | 腺嘌呤核苷 | Moligand™, 超纯级, ≥99.5% | 用于灵芝核苷类成分分析、水提物组成比较、色谱方法建立及细胞代谢研究。 |
表2 灵芝多糖单糖组成、葡聚糖连接方式与成膜性质研究相关产品
分类 | Cas编号 | 阿拉丁货号 | 名称 | 规格或纯度 | 产品特色与应用 |
葡萄糖组成参照物 | 50-99-7 | D -(+)-葡萄糖 | 无水级, UltraBio™, ≥99.5%(HPLC), sum of enantiomers | 用于灵芝多糖水解产物中葡萄糖的衍生化色谱分析、组成比例测定及葡聚糖特征评价。 | |
半乳糖组成参照物 | 59-23-4 | D(+)半乳糖 | 高级纯, ≥99% | 用于灵芝杂多糖中半乳糖的定性定量、单糖比例分析及多糖级分比较。 | |
甘露糖组成参照物 | 3458-28-4 | D-(+)-甘露糖 | Moligand™, ≥99% | 用于灵芝杂多糖和糖蛋白中甘露糖的组成分析、衍生化检测及糖链特征研究。 | |
木糖组成参照物 | 58-86-6 | D-木糖 | Moligand™, ≥99% | 用于灵芝杂多糖中木糖的色谱鉴定、含量比较及不同提取级分组成分析。 | |
岩藻糖组成参照物 | 2438-80-4 | L-岩藻糖 | 低内毒素, Moligand™, ≥99% | 用于含岩藻糖灵芝杂多糖的单糖组成分析、低丰度糖检测及糖链结构研究。 | |
葡萄糖醛酸组成参照物 | 6556-12-3 | D-葡萄糖醛酸 | Moligand™, ≥98% | 用于灵芝酸性多糖中葡萄糖醛酸的组成测定、电荷特征及酸性多糖含量研究。 | |
大麦来源β-D-葡聚糖结构参照物 | 9041-22-9 | β-D-葡聚糖 来源于大麦 | ≥95% | 用于与灵芝β-葡聚糖比较葡聚糖含量、溶液性质、分子量、构象及细胞反应。 | |
线性β-(1→3)-葡聚糖结构参照物 | 54724-00-4 | Curdlan | ≥80%, 来源于葡萄糖发酵 | 用于线性β-(1→3)-葡聚糖连接方式、凝胶形成、链构象及结构活性关系研究。 | |
支化β-葡聚糖结构参照物 | 9008-22-4 | 昆布糖 (来自褐藻类) | —— | 用于β-(1→3)主链和β-(1→6)支链结构、低分子葡聚糖及免疫反应比较研究。 | |
普鲁兰型α-葡聚糖成膜参照物 | 9057-02-7 | 普鲁兰多糖 | —— | 用于α-葡聚糖结构、溶解性、黏度、表面成膜及与灵芝多糖保湿性能比较研究。 |
表3 灵芝多糖提取、脱蛋白、分级纯化与结构分析相关试剂
分类 | Cas编号 | 阿拉丁货号 | 名称 | 规格或纯度 | 产品特色与应用 |
水提液醇沉与三萜醇提溶剂 | 64-17-5 | 乙醇 | 优级试剂, water≤0.3% | 用于灵芝水提液醇沉、多糖分级与洗涤,以及灵芝三萜、甾醇等醇溶性成分提取。 | |
多糖沉淀物洗涤与脱水溶剂 | 67-64-1 | 丙酮(易制毒) | 组织学级, ≥99.5% | 用于灵芝多糖沉淀物洗涤、样品脱水、部分脂溶性杂质去除及组织学样品处理。 | |
脱蛋白体系卤代有机相 | 67-66-3 | 三氯甲烷(易制毒) | 分子生物学级 | 用于与正丁醇组成脱蛋白体系,去除灵芝粗多糖中的游离蛋白质和界面杂质。 | |
脱蛋白体系醇类助剂 | 71-36-3 | 正丁醇(NBA) | 优级试剂, ≥99% | 用于与三氯甲烷组成脱蛋白体系,促进蛋白变性和界面分离,纯化灵芝粗多糖。 | |
交联葡聚糖凝胶过滤介质 | 9004-54-0 | 葡聚糖凝胶® G-50 | BioReagent, DNA级, 分子生物学级, fine | 用于灵芝多糖和糖蛋白的凝胶过滤、脱盐、缓冲液置换及小分子杂质去除。 | |
多糖酸水解试剂 | 76-05-1 | 三氟乙酸(TFA) | 用于蛋白测序, ≥99% | 用于灵芝多糖水解、单糖释放、水解条件筛选及后续单糖组成分析。 | |
单糖柱前衍生化试剂 | 89-25-8 | 1-苯基-3-甲基-5-吡唑啉酮(PMP) | Moligand™, ≥99% | 用于灵芝多糖水解单糖的柱前衍生化、液相色谱分离及组成比例测定。 | |
总糖比色显色试剂 | 108-95-2 | 苯酚 | UltraBio™, 分子生物学级, ≥99.5% | 用于苯酚—硫酸法测定灵芝提取物总糖、多糖回收率及不同纯化级分糖含量。 | |
总糖比色脱水显色介质 | 7664-93-9 | 硫酸(易制毒) | 优级试剂, 适用于分析, ≥98% | 用于苯酚—硫酸法中的糖类脱水显色,测定灵芝提取物和多糖级分的总糖含量。 | |
邻二醇结构氧化试剂 | 7790-28-5 | 高碘酸钠 | ACS, ≥99.8% | 用于灵芝多糖高碘酸氧化、邻二醇结构识别及糖苷键连接方式辅助分析。 | |
史密斯降解还原试剂 | 16940-66-2 | 硼氢化钠(易制爆) | purum p.a., ≥96% | 用于高碘酸氧化产物还原、史密斯降解及灵芝多糖连接结构辅助分析。 | |
无水多糖甲基化反应溶剂 | 67-68-5 | 二甲基亚砜(DMSO) | 无水级, ≥99.9% | 用于灵芝多糖甲基化反应中的样品溶解,以及疏水性通路工具化合物储备液配制。 | |
多糖全甲基化试剂 | 74-88-4 | 碘甲烷 | ≥99% | 用于灵芝多糖全甲基化、糖苷键连接位点、支化位置及糖链骨架分析。 | |
β-葡聚糖三股螺旋构象探针 | 573-58-0 | 刚果红 | 指示剂 | 用于刚果红—碱液体系辅助评价灵芝β-葡聚糖三股螺旋及构象变化。 | |
构象分析与甲基化碱性试剂 | 1310-73-2 | 氢氧化钠 | BP, 低内毒素, 欧洲药典(Ph.Eur), NF, ≥98%, pellets | 用于刚果红构象试验的碱度调节、多糖碱处理及甲基化反应体系制备。 |
表4 氧化应激、自由基检测、炎症模型与信号通路验证相关产品
分类 | Cas编号 | 阿拉丁货号 | 名称 | 规格或纯度 | 产品特色与应用 |
过氧化氢型细胞氧化应激诱导剂 | 7722-84-1 | 过氧化氢 溶液 | 适用于微生物学, 3% | 用于建立角质形成细胞和皮肤成纤维细胞氧化损伤模型,评价活性氧、抗氧化酶及细胞保护作用。 | |
有机过氧化物型氧化应激诱导剂 | 75-91-2 | 过氧化氢叔丁醇(TBHP) | 70% in H2O | 用于建立持续性细胞氧化应激、膜脂过氧化和线粒体功能损伤模型。 | |
Toll样受体4炎症模型刺激物 | 93572-42-0 | 脂多糖(LPS) | 来源于大肠杆菌 055:B5, purified by trichloroacetic acid extraction | 用于建立巨噬细胞炎症模型,研究Toll样受体4—核因子κB信号和炎症因子释放。 | |
细胞内活性氧荧光探针 | 4091-99-0 | 2,7-二氯二氢荧光素二乙酸酯 (DCFH-DA) | ≥97% | 用于检测灵芝多糖、三萜及配方载体处理后细胞内活性氧水平变化。 | |
ABTS自由基反应试剂 | 30931-67-0 | 2,2′-联氮双(3-乙基苯并噻唑啉-6-磺酸) 二铵盐[AzBTS-(NH4)2] | ≥98% | 用于灵芝提取物、多糖和三萜的自由基清除能力及总抗氧化能力比较。 | |
DPPH稳定自由基检测试剂 | 1898-66-4 | 2,2-联苯基-1-苦基肼基(含10-20%苯) | ≥97%(HPLC) | 用于灵芝多糖、三萜及复合提取物的化学自由基清除能力和浓度效应评价。 | |
水溶性维生素E类似物抗氧化参照物 | 53188-07-1 | 奎诺二甲基丙烯酸酯 | ≥98%, white | 用于自由基清除能力、总抗氧化能力及不同灵芝提取物抗氧化效力的参照比较。 | |
巯基型细胞抗氧化参照物 | 616-91-1 | N-乙酰-L-半胱氨酸( NAC) | PharmPure™, USP, Moligand™, 欧洲药典(Ph.Eur), ≥98.5% | 用于细胞活性氧清除、谷胱甘肽合成支持及灵芝成分抗氧化作用的参照研究。 | |
核因子E2相关因子2激活参照物 | 4478-93-7 | 萝卜硫素 | Moligand™, ≥95% | 用于核因子E2相关因子2—抗氧化反应元件通路激活及抗氧化酶表达参照研究。 | |
核因子E2相关因子2通路抑制工具 | 846557-71-9 | ML385,Nrf2抑制剂 | Moligand™, ≥99% | 用于验证核因子E2相关因子2参与灵芝多糖诱导抗氧化酶表达和细胞保护的作用。 | |
核因子κB通路抑制工具 | 19542-67-7 | BAY 11-7082,IκBα激酶抑制剂 | Moligand™, ≥98% | 用于抑制IκBα磷酸化和核因子κB信号激活,研究炎症因子表达及灵芝成分的调节机制。 | |
p38丝裂原活化蛋白激酶抑制工具 | 152121-47-6 | SB-203580,p38 MAPK抑制剂 | Moligand™, ≥98%(HPLC) | 用于研究p38信号参与氧化应激、炎症反应、细胞衰老及基质金属蛋白酶表达的过程。 | |
MEK1/2抑制工具 | 109511-58-2 | U0126,MKK抑制剂 | Moligand™, ≥98% | 用于干预MEK1/2—胞外信号调节激酶通路,研究紫外线损伤、氧化应激及相关细胞信号。 | |
c-Jun氨基末端激酶抑制工具 | 129-56-6 | 蒽[1,9-cd]吡唑-6(2H)-酮 | Moligand™, ≥98% | 用于干预c-Jun氨基末端激酶—激活蛋白-1信号,研究炎症和基质降解相关机制。 | |
四唑盐细胞活力检测试剂 | 298-93-1 | 噻唑蓝溴化四唑 | ≥98% | 用于评价灵芝多糖、灵芝三萜、通路工具化合物及递送载体处理后的细胞活力和细胞毒性。 |
表5 皮肤水合、透明质酸复配与角质层脂质研究相关产品
分类 | Cas编号 | 阿拉丁货号 | 名称 | 规格或纯度 | 产品特色与应用 |
小分子多元醇保湿剂 | 56-81-5 | 甘油 | 无水级, UltraBio™, 分子生物学级, ≥99.5%(GC) | 用于角质层水合、保湿配方基础体系及灵芝多糖与小分子保湿剂复配研究。 | |
透明质酸钠型阴离子保湿聚合物 | 9067-32-7 | 透明质酸钠 | 欧洲药典(Ph.Eur) | 用于灵芝多糖—透明质酸钠复合水合网络、流变性能、成膜性及配方稳定性研究。 | |
动物来源透明质酸保湿聚合物 | 9004-61-9 | 透明质酸 | Moligand™, 来自鸡冠 | 用于大分子表面保湿、成膜、黏弹性及与灵芝多糖复配后的水合性能研究。 | |
胆固醇分析标准物质 | 57-88-5 | 胆固醇纯度标准物质 | 分析标准品, ≥99.7% | 用于胆固醇色谱定量、角质层脂质模型组成校准及神经酰胺—脂肪酸体系比例研究。 | |
亚油酸型不饱和屏障脂肪酸 | 60-33-3 | 亚油酸 | Moligand™, ≥99%(GC) | 用于角质层必需脂肪酸组成、酰基神经酰胺相关研究、脂质复配及氧化稳定性评价。 | |
C18/C16饱和脂肪酸混合物 | 57-11-4 | 硬脂酸 | Moligand™, C18:40%,C16:60% | 用于含C18/C16饱和脂肪酸的角质层脂质模型、层状乳液、脂质相行为及配方流变研究。 | |
C18神经酰胺结构单体 | 2304-81-6 | N-硬脂酰基-D-赤型鞘氨醇 | ≥99% | 用于酰基链明确的神经酰胺结构、脂质双层排列、膜相行为及屏障通透性研究。 | |
植物鞘氨醇型长链碱 | 554-62-1 | 糖脂 | ≥98% | 用于植物鞘氨醇骨架、神经酰胺合成原料、角质层鞘脂组成及屏障相关研究。 | |
神经酰胺NP型屏障脂质 | 178436-06-1 | 神经酰胺 3B | ≥95% | 用于神经酰胺NP相关角质层脂质模型、层状结构、屏障复配及水分保持研究。 |
表6 水凝胶、表面活性剂、磷脂、环糊精与油相递送相关产品
分类 | Cas编号 | 阿拉丁货号 | 名称 | 规格或纯度 | 产品特色与应用 |
壳聚糖型阳离子多糖载体 | 9012-76-4 | 壳聚糖 | 中粘度,200-400 mPa.s | 用于灵芝多糖复合膜、黏附型水凝胶、纳米颗粒、微囊及持续释放体系研究。 | |
海藻酸钠型阴离子凝胶载体 | 9005-38-3 | 海藻酸 钠盐 来源于褐藻 | 中等粘度 | 用于灵芝多糖水凝胶、离子交联微球、微囊包载、皮肤驻留及控制释放研究。 | |
温敏嵌段聚醚凝胶载体 | 9003-11-6 | Pluronic® F-127 | BioReagent, 用于细胞培养, Granular waxy | 用于温敏水凝胶、聚合物胶束、灵芝三萜增溶及活性成分局部驻留和缓释研究。 | |
聚山梨酯型非离子表面活性剂 | 9005-65-6 | 吐温® 80 | 粘性液体,无防腐剂,低过氧化物;低羰 | 用于灵芝三萜乳化增溶、纳米乳、微乳及脂质颗粒的界面稳定性研究。 | |
向日葵来源天然磷脂混合物 | 8002-43-5 | 磷脂 来自向日葵(非转基因) | 天然, with ≥60% phosphatidylcholine | 用于脂质体、囊泡、层状乳液及灵芝多糖—三萜水相和脂质相分载体系构建。 | |
二棕榈酰磷脂酰胆碱单一磷脂 | 63-89-8 | 1,2-二棕榈酰-sn-甘油-3-磷酰胆碱(DPPC) | Moligand™, ≥99% | 用于组成明确的磷脂双层、脂质体、膜相互作用及灵芝三萜包载研究。 | |
羟丙基-β-环糊精包合载体 | 128446-35-5 | 环糊精HPB | PharmPure™, USP | 用于灵芝三萜包合增溶、析晶抑制、水相分散、释放行为及配方稳定性研究。 | |
β-环糊精包合载体 | 7585-39-9 | β-环糊精 | ≥98% | 用于灵芝三萜包合物制备、溶解度比较、热稳定性及缓释性能研究。 | |
角鲨烷型非极性油相载体 | 111-01-3 | 角鲨烷 | ≥98% | 用于灵芝三萜油相分散、乳液和脂质载体构建、润肤性能及配方相容性研究。 |
注:以上为阿拉丁代表性科研产品,更多产品规格、级别、COA信息可用“品名/CAS/货号”在阿拉丁官网检索。
参考文献
[1] Lin X, Chen D, Chen S, et al. UPLC-Q-TOF/MS-based study on chemical composition, in vivo metabolites, and tissue distribution of ethanol extract of Ganoderma lucidum. Journal of Pharmaceutical and Biomedical Analysis. 2025;263:116886. DOI: 10.1016/j.jpba.2025.116886.
[2] Yang M, Qin X, Liu X. A review of polysaccharides from Ganoderma lucidum: Preparation methods, structural characteristics, bioactivities, structure-activity relationships and potential applications. International Journal of Biological Macromolecules. 2025;303:140645. DOI: 10.1016/j.ijbiomac.2025.140645.
[3] Deng Y, Lei J, Luo X, et al. Prospects of Ganoderma polysaccharides: Structural features, structure-function relationships, and quality evaluation. International Journal of Biological Macromolecules. 2025;309(Pt 2):142836. DOI: 10.1016/j.ijbiomac.2025.142836.
[4] Liu Y, Tang Q, Zhang J, et al. Triple helix conformation of β-D-glucan from Ganoderma lucidum and effect of molecular weight on its immunostimulatory activity. International Journal of Biological Macromolecules. 2018;114:1064–1070. DOI: 10.1016/j.ijbiomac.2018.03.054.
[5] Furman D, Auwerx J, Bulteau AL, et al. Skin health and biological aging. Nature Aging. 2025;5:1195–1206. DOI: 10.1038/s43587-025-00901-6.
[6] Dai Q, Wang Z, Wang X, et al. Vorinostat attenuates UVB-induced skin senescence by modulating NF-κB and mTOR signaling pathways. Scientific Reports. 2025;15:10905. DOI: 10.1038/s41598-025-95624-4.
[7] Zeng Q, Zhou F, Lei L, et al. Ganoderma lucidum polysaccharides protect fibroblasts against UVB-induced photoaging. Molecular Medicine Reports. 2017;15:111–116. DOI: 10.3892/mmr.2016.6026.
[8] Shi X, Cheng W, Wang Q, et al. Exploring the protective and reparative mechanisms of G. lucidum polysaccharides against H₂O₂-induced oxidative stress in human skin fibroblasts. Clinical, Cosmetic and Investigational Dermatology. 2021;14:1481–1496. DOI: 10.2147/CCID.S334527.
[9] Shi D, Xu X, Wang J, et al. Synergistic anti-inflammatory effects of Ganoderma lucidum polysaccharide and ganoderic acid A on LPS-induced RAW264.7 cells by inhibition of TLR4/NF-κB activation. International Journal of Biological Macromolecules. 2025;309(Pt 2):143074. DOI: 10.1016/j.ijbiomac.2025.143074.
[10] Abate M, Pepe G, Randino R, et al. Ganoderma lucidum ethanol extracts enhance re-epithelialization and prevent keratinocytes from free-radical injury. Pharmaceuticals. 2020;13(9):224. DOI: 10.3390/ph13090224.
[11] Huang CF, Chang JF, Yang HS, Hsu CP, Lin CC. In vitro and in vivo evaluation of the skincare bioactivity of β-1,3;1,6-glucans-rich Ganoderma lucidum polysaccharides. Molecules. 2026;31(10):1740. DOI: 10.3390/molecules31101740.
[12] Jiang X, Sun Q, Chen Y, et al. Light repair effect of polysaccharides component from white Ganoderma lucidum and Laminaria japonica fermentation broth attenuates epidermal barrier dysfunction via TRPV4-Keap-1/Nrf2 pathway. Bioresources and Bioprocessing. 2025;12(1):113. DOI: 10.1186/s40643-025-00949-7.
[13] Kim YL, Roh KB, Jeon K, et al. Lucidenic acid A-rich antler-shaped Ganoderma lucidum extract enhances skin barrier and suppresses Staphylococcus aureus infection. Korean Journal of Pharmacognosy. 2026;57(1):71–79. DOI: 10.22889/KJP.2026.57.1.71.
[14] Bouwstra JA, Nădăban A, Bras W, McCabe C, Bunge A, Gooris GS. The skin barrier: An extraordinary interface with an exceptional lipid organization. Progress in Lipid Research. 2023;92:101252. DOI: 10.1016/j.plipres.2023.101252.
[15] Bravo B, Correia P, Gonçalves Junior JE, Sant’Anna B, Kerob D. Benefits of topical hyaluronic acid for skin quality and signs of skin aging: From literature review to clinical evidence. Dermatologic Therapy. 2022;35(12):e15903. DOI: 10.1111/dth.15903.
[16] Jin Y, Jia X, Fan D, et al. Ganoderma lucidum glycoprotein microemulsion: Improved transdermal delivery and protective efficacy in UV-induced cell and animal models. Molecules. 2025;30(22):4489. DOI: 10.3390/molecules30224489.
[17] Beaziz J, Avallone G, Langer K, et al. Skin aging: Mechanistic insights and targeted therapeutic strategies. Journal of Allergy and Clinical Immunology. 2026 May 27:S0091-6749(26)00370-2. Online ahead of print. DOI: 10.1016/j.jaci.2026.05.015.
[18] Furue M. Regulation of filaggrin, loricrin, and involucrin by IL-4, IL-13, IL-17A, IL-22, AHR, and NRF2: Pathogenic implications in atopic dermatitis. International Journal of Molecular Sciences. 2020;21(15):5382. DOI: 10.3390/ijms21155382.
更多相关文章,详见下方:
4-MSK 的双靶向美白机制:抑制黑色素生成与减少表皮色素滞留
α-硫辛酸的皮肤抗老机制:ALA/DHLA 氧化还原循环、抗氧化网络与胶原 AGEs 形成调控
谷胱甘肽外用护肤机制解析:细胞氧化还原调节、皮肤递送难点与 SLNs 递送策略
从角质层脂质屏障理解神经酰胺:保湿与屏障修护机制、成分选择与配方研究思路
海藻糖(Trehalose)的性质特征、制备工艺与应用技术指南
细胞培养包被体系中玻连蛋白、层粘连蛋白与纤连蛋白的适用性比较
谷胱甘肽(GSH)含量检测:方法体系、实验流程与质量控制要点
谷胱甘肽还原酶:维持GSH/GSSG稳态的黄素依赖还原体系及其检测与应用


 危险品化学品经营许可证(带存储)