
HMGB1介导的损伤相关炎症信号与肿瘤免疫调控
HMGB1介导的损伤相关炎症信号与肿瘤免疫调控
HMGB1将细胞损伤转化为炎症和趋化信号,并通过TLRs、RAGE及CXCR4调控肿瘤免疫、肿瘤干性和治疗耐受。
关键词:HMGB1;损伤相关分子模式;DAMP;TLR4;RAGE;CXCL12;CXCR4;NF-κB;MAPK;肿瘤免疫;肿瘤干性;化疗抵抗
1 HMGB1的分子状态与损伤相关分子模式功能
1.1 HMGB1的结构与细胞内功能
高迁移率族蛋白B1(high mobility group box 1,HMGB1)是一种非组蛋白染色质结合蛋白,由A box、B box和富含酸性氨基酸的C端尾部组成。
(1)A box
参与DNA结构识别和蛋白相互作用。游离A box在部分实验体系中可竞争性抑制全长HMGB1的胞外促炎活性。
(2)B box
包含HMGB1的重要促炎功能区域,可参与TLR4/MD-2等受体复合物的激活。
(3)酸性C端尾部
调节HMGB1构象及其与DNA和其他蛋白的结合能力。
在细胞核内,HMGB1可结合弯曲或受损DNA,参与染色质构象调节、转录和DNA损伤应答。HMGB1转位至胞质或释放到细胞外后,功能重点由染色质调控转向炎症、趋化和组织损伤信号传递。
1.2 氧化还原状态决定HMGB1的胞外功能
HMGB1含有Cys23、Cys45和Cys106三个半胱氨酸残基,不同氧化状态对应不同的受体选择和生物学作用。
表1 HMGB1氧化还原状态及主要作用
HMGB1状态 | 半胱氨酸特征 | 主要作用轴 | 主要效应 |
全还原型HMGB1 | Cys23、Cys45和Cys106均保持还原状态 | HMGB1–CXCL12–CXCR4 | 增强免疫细胞、祖细胞及部分肿瘤细胞迁移 |
二硫键型HMGB1 | Cys23与Cys45形成二硫键,Cys106保持还原状态 | HMGB1–TLR4/MD-2 | 诱导炎症细胞因子和趋化因子表达 |
终末氧化型HMGB1 | 半胱氨酸残基进一步氧化 | 受体激活能力降低 | 趋化和促炎活性明显减弱 |
1.3 HMGB1的DAMP功能
细胞损伤后,胞外HMGB1可作为损伤相关分子模式,将细胞和组织损伤转化为先天免疫信号。
(1)激活巨噬细胞、树突状细胞和中性粒细胞。
(2)促进炎症细胞因子、趋化因子和黏附分子表达。
(3)调节免疫细胞向损伤区域或肿瘤微环境迁移。
(4)在持续释放时参与慢性炎症、血管改变和组织重塑。
2 HMGB1的释放机制与细胞外炎症效应
2.1 损伤与裂解性细胞死亡导致的被动释放
坏死、焦亡及其他伴随质膜破裂的细胞死亡可使核内HMGB1释放至细胞外。肿瘤缺氧、机械损伤、化疗和放疗均可能增加HMGB1的被动释放。
早期凋亡细胞通常仍保持质膜完整性,HMGB1不会立即大量外泄;未被及时清除的凋亡细胞发生继发性膜破裂后,也可向胞外释放HMGB1。不同死亡方式和氧化环境可改变HMGB1的分子状态及受体活性。
2.2 免疫细胞的主动释放
单核细胞、巨噬细胞和树突状细胞受到病原体成分、炎症因子或组织损伤信号刺激后,可使HMGB1由细胞核向胞质转位,并通过非经典分泌途径释放。
(1)翻译后修饰
赖氨酸乙酰化等修饰可降低HMGB1的核定位能力,促进其在胞质中积累。
(2)细胞应激
氧化应激、DNA损伤和炎症信号可调节HMGB1的核质转位和胞外释放。
(3)非经典分泌途径
分泌性溶酶体、细胞外囊泡及膜通透性变化均可参与HMGB1释放。
2.3 胞外HMGB1的主要效应细胞
(1)巨噬细胞
HMGB1可诱导炎症因子和趋化因子表达,并改变巨噬细胞在肿瘤微环境中的功能状态。
(2)树突状细胞
治疗诱导的HMGB1释放可影响树突状细胞对肿瘤抗原的摄取、处理和呈递,参与免疫原性细胞死亡后的适应性免疫启动。
(3)血管内皮细胞
HMGB1可促进内皮细胞活化、黏附分子表达和血管通透性改变,为免疫细胞募集和肿瘤血管重塑提供条件。
(4)肿瘤细胞与基质细胞
肿瘤细胞、成纤维细胞及其他基质细胞可通过RAGE、TLRs或CXCR4相关信号响应HMGB1,改变增殖、迁移和治疗敏感性。
3 HMGB1–TLRs/RAGE信号及NF-κB、MAPK通路激活
3.1 TLR4/MD-2介导的炎症反应
二硫键型HMGB1可与MD-2相互作用并激活TLR4受体复合物。TLR4经MyD88、IRAK和TRAF6等分子向下游传递信号,进一步激活IKK/NF-κB和MAPK通路。
(1)促进TNF、IL-1β和IL-6等炎症因子表达。
(2)增强树突状细胞成熟和抗原呈递。
(3)提高趋化因子和黏附分子表达。
(4)促进炎症细胞向损伤组织或肿瘤组织募集。
TLR2也可能参与部分HMGB1复合物引起的细胞应答。重组HMGB1中的内毒素、核酸或其他结合分子可干扰TLR实验,需要设置内毒素控制和受体阻断组。
3.2 RAGE介导的持续信号
晚期糖基化终产物受体RAGE由AGER基因编码,可在髓系细胞、血管内皮细胞和多种肿瘤细胞中表达。HMGB1与RAGE结合后,可调节NF-κB、ERK、p38和PI3K/AKT等信号。
(1)促进部分肿瘤细胞存活、增殖、迁移和侵袭。
(2)调节肿瘤相关巨噬细胞和基质细胞功能。
(3)参与血管生成、淋巴管生成和肿瘤组织重塑。
(4)影响自噬、线粒体动力学和治疗耐受。
3.3 NF-κB和MAPK信号输出
(1)NF-κB通路
IKK活化可促进IκBα磷酸化和降解,使p65/p50进入细胞核,调控炎症因子、趋化因子、抗凋亡蛋白和免疫调节分子表达。
(2)p38 MAPK通路
参与炎症因子转录、mRNA稳定性和细胞应激反应,与髓系细胞炎症激活密切相关。
(3)ERK通路
参与肿瘤细胞增殖、迁移、线粒体分裂和部分治疗耐受过程。
(4)JNK/AP-1通路
参与应激反应和炎症基因转录,可与NF-κB共同调节HMGB1介导的炎症输出。
4 HMGB1–CXCL12–CXCR4轴调控细胞迁移
4.1 HMGB1与CXCL12形成异源复合物
全还原型HMGB1可与CXCL12形成异源复合物,增强CXCL12与CXCR4的相互作用,使细胞在较低CXCL12浓度下产生更强的趋化反应。
HMGB1–CXCL12复合物主要增强CXCR4依赖的细胞迁移,与二硫键型HMGB1经TLR4诱导炎症因子的作用不同。实验中应分别评价细胞迁移和炎症因子释放。
4.2 免疫细胞与修复细胞迁移
(1)募集单核细胞和其他免疫细胞进入损伤区域。
(2)调节淋巴细胞在炎症组织和肿瘤组织中的定位。
(3)募集间充质干细胞及组织修复相关祖细胞。
(4)增强CXCR4阳性肿瘤细胞的趋化迁移。
4.3 肿瘤迁移与免疫细胞空间分布
CXCR4阳性肿瘤细胞可响应CXCL12浓度梯度,向淋巴结、骨髓、肺或肝等CXCL12较丰富的组织迁移。HMGB1增强CXCL12/CXCR4信号后,可提高部分肿瘤细胞的迁移和侵袭能力。
CXCL12/CXCR4轴还可影响调节性T细胞、髓源性抑制细胞、巨噬细胞及效应T细胞在肿瘤组织中的分布。相关研究可结合Transwell迁移、趋化实验和肿瘤组织免疫细胞浸润分析。
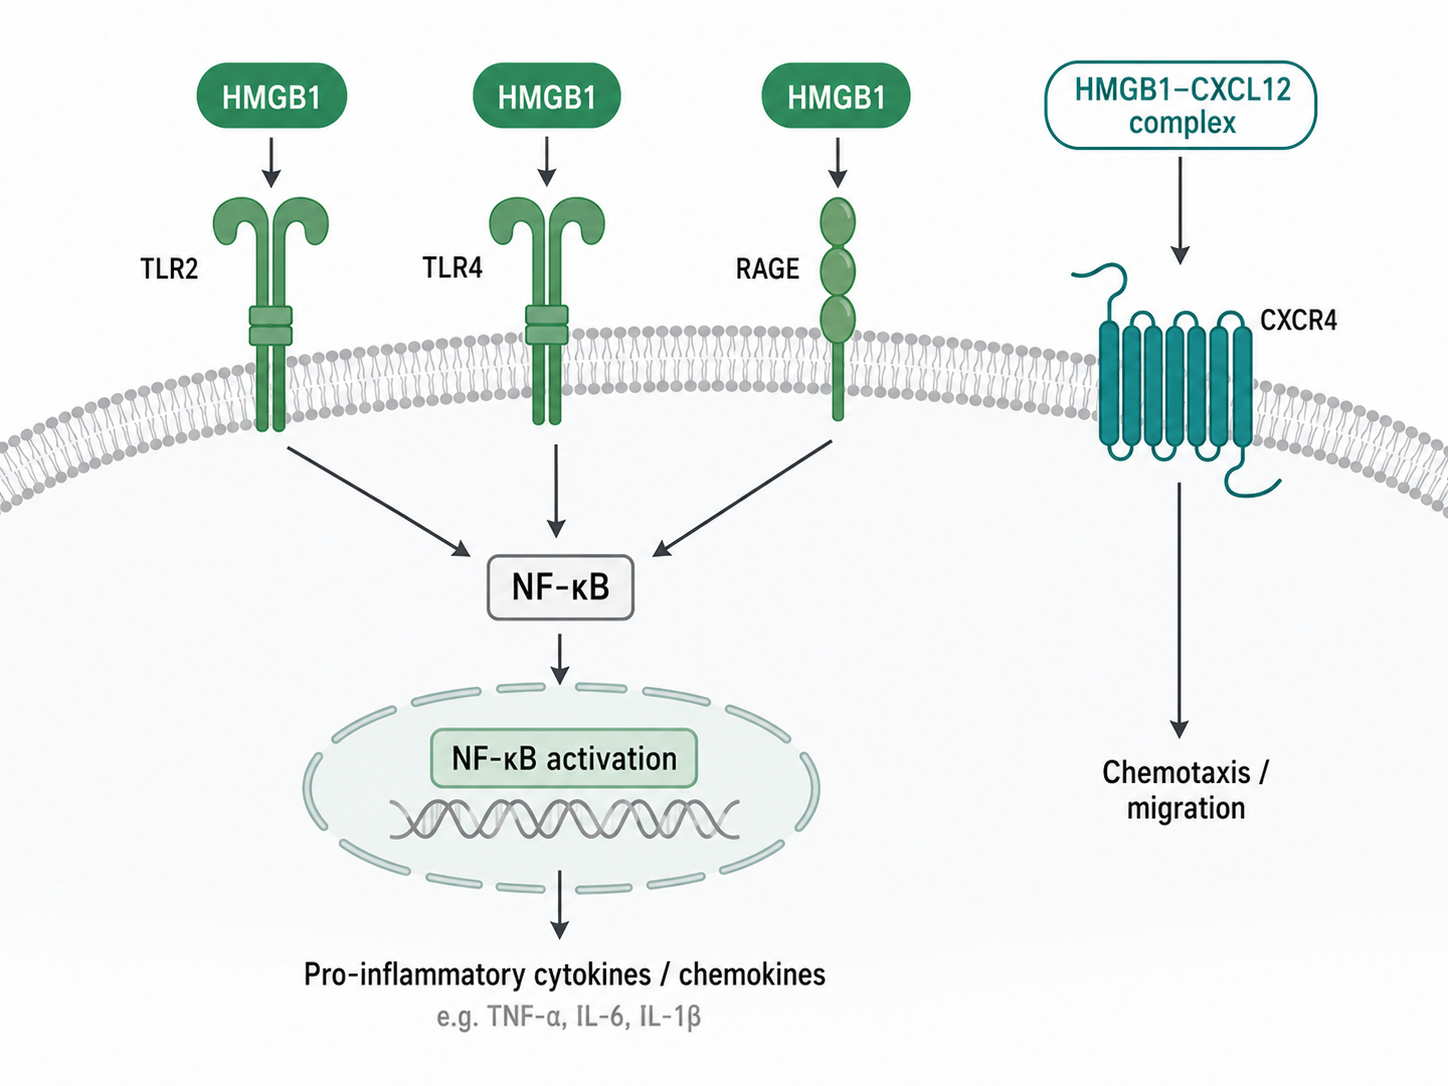
图1 HMGB1受体信号及炎症与趋化效应
5 HMGB1调控肿瘤炎症、肿瘤干性与治疗耐受
5.1 HMGB1在肿瘤免疫中的双向作用
(1)促进抗肿瘤免疫
部分化疗、放疗及其他免疫原性细胞死亡可诱导HMGB1释放,促进树突状细胞处理肿瘤抗原,并支持肿瘤特异性T细胞反应。
(2)维持促肿瘤炎症
肿瘤组织长期释放HMGB1时,可通过RAGE和TLRs维持炎症因子表达、血管改变和基质重塑。
(3)促进免疫抑制
慢性HMGB1信号可改变肿瘤相关巨噬细胞及其他髓系细胞状态,限制效应T细胞的浸润和功能。
5.2 肿瘤干性与自我更新
HMGB1可通过RAGE、TLR4及ERK、PI3K/AKT等信号影响部分肿瘤细胞的存活、自我更新和成瘤能力,其作用具有肿瘤类型和细胞背景依赖性。
HMGB1相关肿瘤干性研究可检测:
(1)SOX2、NANOG和OCT4等干性标志物。
(2)肿瘤球形成和连续传代能力。
(3)有限稀释成瘤能力。
(4)HMGB1、TLR4或RAGE干预后的干性表型变化。
5.3 HMGB1介导的化疗抵抗
(1)保护性自噬
胞质或胞外HMGB1可促进自噬相关反应,为受损肿瘤细胞提供代谢适应和细胞器质量控制,降低部分肿瘤对治疗的敏感性。
(2)核自噬
在部分肿瘤模型中,HMGB1可参与核自噬和DNA损伤处理,帮助肿瘤细胞耐受化疗引起的核损伤。
(3)线粒体分裂
死亡肿瘤细胞释放的HMGB1可通过RAGE–ERK信号调节DRP1活性和线粒体分裂,支持残余肿瘤细胞存活和再生长。
(4)微环境保护
HMGB1可调节巨噬细胞和肿瘤相关成纤维细胞,为肿瘤细胞存活、修复和治疗逃逸提供支持。
6 HMGB1靶向干预与免疫检查点治疗
6.1 HMGB1直接干预
(1)HMGB1中和或药理抑制
阻断胞外HMGB1活性,用于验证炎症因子释放、细胞迁移和治疗耐受是否依赖HMGB1。
(2)HMGB1基因干预
通过siRNA或基因敲除降低HMGB1总体表达,用于验证相关表型是否依赖HMGB1。
(3)抑制核质转位和释放
调节HMGB1乙酰化、氧化应激或非经典分泌过程,减少胞外HMGB1积累。
(4)干扰HMGB1–CXCL12复合物
选择性降低CXCR4依赖的趋化反应,评价该复合物对免疫细胞募集和肿瘤迁移的贡献。
6.2 受体与下游信号干预
(1)阻断TLR4/MD-2,抑制二硫键型HMGB1介导的炎症因子表达。
(2)阻断RAGE,降低持续性NF-κB、MAPK、肿瘤细胞存活和治疗耐受信号。
(3)抑制CXCR4,限制肿瘤细胞或免疫抑制性细胞的定向迁移。
(4)抑制IKK/NF-κB、ERK或p38,验证具体下游分支对炎症和肿瘤表型的作用。
6.3 HMGB1与免疫检查点治疗的联合机制
(1)治疗早期的免疫激活
化疗或放疗诱导肿瘤细胞死亡后,HMGB1释放可促进树突状细胞抗原处理,为PD-1/PD-L1等免疫检查点阻断提供抗原释放和先天免疫激活基础。
(2)慢性信号介导的免疫抑制
持续的HMGB1/RAGE或HMGB1/TLR信号可维持髓系细胞积累、慢性炎症和肿瘤细胞存活,限制免疫检查点治疗效果。
(3)干预窗口
HMGB1阻断的时间和强度需要根据治疗方式、HMGB1氧化状态、优势受体及肿瘤微环境中的主要效应细胞确定。
7 HMGB1损伤炎症与肿瘤免疫研究相关产品
研究模块 | 货号 | 名称 | 级别和纯度 | 主要应用 |
HMGB1基因干预 | HMGB1 Human Pre-designed siRNA Set A |
| 敲低内源性HMGB1,验证相关表型的HMGB1依赖性 | |
HMGB1表达检测 | HMGB1 Mouse mAb | 无载体, ExactAb™, 无叠氮钠, 已验证, 高性能, PBS Only, ≥95%(SDS-PAGE), 1.0 mg/mL | 检测HMGB1表达及核质转位 | |
HMGB1药理干预 | HMGB1-IN-1 | ≥99% | 验证炎症、迁移及治疗耐受表型的HMGB1依赖性 | |
HMGB1刺激 | Recombinant Human HMGB1 Protein | 无动物源, 无载体, 生物活性, ActiBioPure™, 无叠氮钠, His标签, ≥95%(SDS-PAGE) | 刺激免疫细胞或肿瘤细胞,研究TLR4和RAGE信号 | |
HMGB1释放检测 | 人乙酰化高迁移族蛋白(Acetyl-HMGB1)酶联免疫吸附测定试剂盒 | BioReagent | 检测乙酰化HMGB1,评价HMGB1核质转位和主动释放 | |
TLR4/MD-2信号 | MD2-TLR4-IN-1 | Moligand™, ≥99% | 阻断MD-2/TLR4复合物,分析HMGB1炎症效应的受体依赖性 | |
TLR4信号 | TAK-242,TLR4信号传导抑制剂 | Moligand™, ≥98% | 验证HMGB1诱导的NF-κB和MAPK活化是否依赖TLR4 | |
TLR4基因干预 | TLR4 Human Pre-designed siRNA Set A |
| 敲低人TLR4,验证HMGB1炎症效应的TLR4依赖性 | |
RAGE信号 | FPS-ZM1,RAGE受体拮抗剂 | ≥98% | 研究HMGB1介导的肿瘤细胞存活、迁移和治疗耐受 | |
RAGE结合研究 | Recombinant Human RAGE Protein | 无动物源, 无载体, 生物活性, ActiBioPure™, 无叠氮钠, His标签, Fc标签, ≥90%(SDS-PAGE) | 用于HMGB1–RAGE结合分析及阻断分子筛选 | |
RAGE表达检测 | Recombinant RAGE Antibody | 重组, ExactAb™, 已验证, 见COA | 检测细胞或组织中的RAGE表达 | |
CXCL12趋化刺激 | CXCL12α | Moligand™ | 与HMGB1联合建立CXCL12/CXCR4趋化体系 | |
CXCL12定量 | 人基质细胞衍生因子1(SDF-1a/CXCL12)酶联免疫吸附测定试剂盒 | BioReagent | 定量检测人源样本或培养上清中的CXCL12 | |
CXCR4基因干预 | CXCR4 Human Pre-designed siRNA Set A |
| 验证HMGB1–CXCL12介导的迁移是否依赖CXCR4 | |
CXCR4表达检测 | CXCR4/CD184 Mouse mAb | 无载体, ExactAb™, 低内毒素, 无叠氮钠, 已验证, PBS Only, ≥95%(SDS-PAGE&SEC-HPLC), 见COA | 检测肿瘤细胞和免疫细胞表面CXCR4 | |
CXCR4阻断 | TC 14012,拟肽CXCR4拮抗剂 | Moligand™, ≥95% | 阻断HMGB1–CXCL12复合物介导的趋化和侵袭 | |
NF-κB信号 | Recombinant NF-kB p65 Antibody | 重组, ExactAb™, 敲低验证, 已验证, 高性能, 见COA | 检测HMGB1受体下游NF-κB p65表达 | |
NF-κB通路干预 | TPCA-1,IκB激酶抑制剂 | Moligand™, ≥98% | 验证HMGB1相关炎症效应对IKK/NF-κB通路的依赖性 | |
p38信号检测 | Recombinant Phospho-p38 (T180) Antibody | 敲低验证 | 检测HMGB1刺激后的p38磷酸化变化 | |
p38总蛋白检测 | Recombinant p38 alpha/MAPK14 Antibody | 重组, ExactAb™, 已验证, 高性能, 见COA | 检测总p38α,与磷酸化p38配合分析 | |
p38通路干预 | SB-203580,p38 MAPK抑制剂 | Moligand™, ≥98%(HPLC) | 验证HMGB1诱导的炎症和应激反应是否依赖p38 MAPK | |
肿瘤干性检测 | Recombinant SOX2 Antibody | 重组, ExactAb™, 已验证, 1.0 mg/mL | 检测SOX2,评价HMGB1对肿瘤干性和自我更新的影响 | |
肿瘤干性检测 | Nanog Mouse mAb | 无载体, ExactAb™, 无叠氮钠, 已验证, 高性能, PBS Only, ≥95%(SDS-PAGE), 1.0 mg/mL | 检测NANOG,评价肿瘤干细胞样表型 | |
肿瘤干性检测 | Recombinant Oct4 Antibody | 重组, ExactAb™, 已验证, 0.3 mg/mL | 与SOX2、NANOG联合评价肿瘤干性 | |
自噬通量检测 | pCMV-mCherry-GFP-LC3B |
| 通过双荧光LC3B报告体系分析HMGB1相关自噬通量 | |
自噬蛋白检测 | Recombinant LC3B Antibody | 重组, ExactAb™, 已验证, 见COA | 检测LC3B变化,分析HMGB1相关自噬及化疗耐受 | |
线粒体分裂检测 | DRP1 Mouse mAb | 见COA | 检测DRP1,分析HMGB1/RAGE相关线粒体分裂 | |
线粒体分裂干预 | Mdivi-1,细胞渗透性线粒体分裂Drp1抑制剂 | ≥96% | 研究DRP1相关线粒体分裂在HMGB1介导治疗耐受中的作用 |
HMGB1研究的关键在于区分其细胞内外定位、氧化还原状态和优势受体,从而判断其主要参与损伤识别、免疫激活、肿瘤迁移还是治疗耐受。
更多相关文章,详见下方:
[1] 白介素受体信号的JAK-STAT及NF-κB轴机制解析与检测模型及转化边界梳理
[2] NF-κB 通路怎么定位、抑制剂怎么选:把炎症转录输出压到“可控区间”(附表A–F)
[4] ALK抑制剂


 危险品化学品经营许可证(带存储)