
肿瘤微环境中ECM动态重塑如何调控 肿瘤免疫应答?
肿瘤微环境中ECM动态重塑如何调控 肿瘤免疫应答?
肿瘤微环境中的细胞外基质(extracellular matrix,ECM)不仅支撑组织结构,还通过基质沉积、交联、降解和空间重排持续调控免疫细胞浸润、迁移、激活和效应功能。ECM重塑可形成物理屏障、改变组织硬度、储存或释放免疫调节因子,并与癌相关成纤维细胞、TGF-β信号和髓系免疫抑制共同塑造肿瘤免疫应答状态。
关键词:肿瘤微环境;细胞外基质;ECM重塑;肿瘤免疫;T细胞浸润;癌相关成纤维细胞;TGF-β;免疫排斥
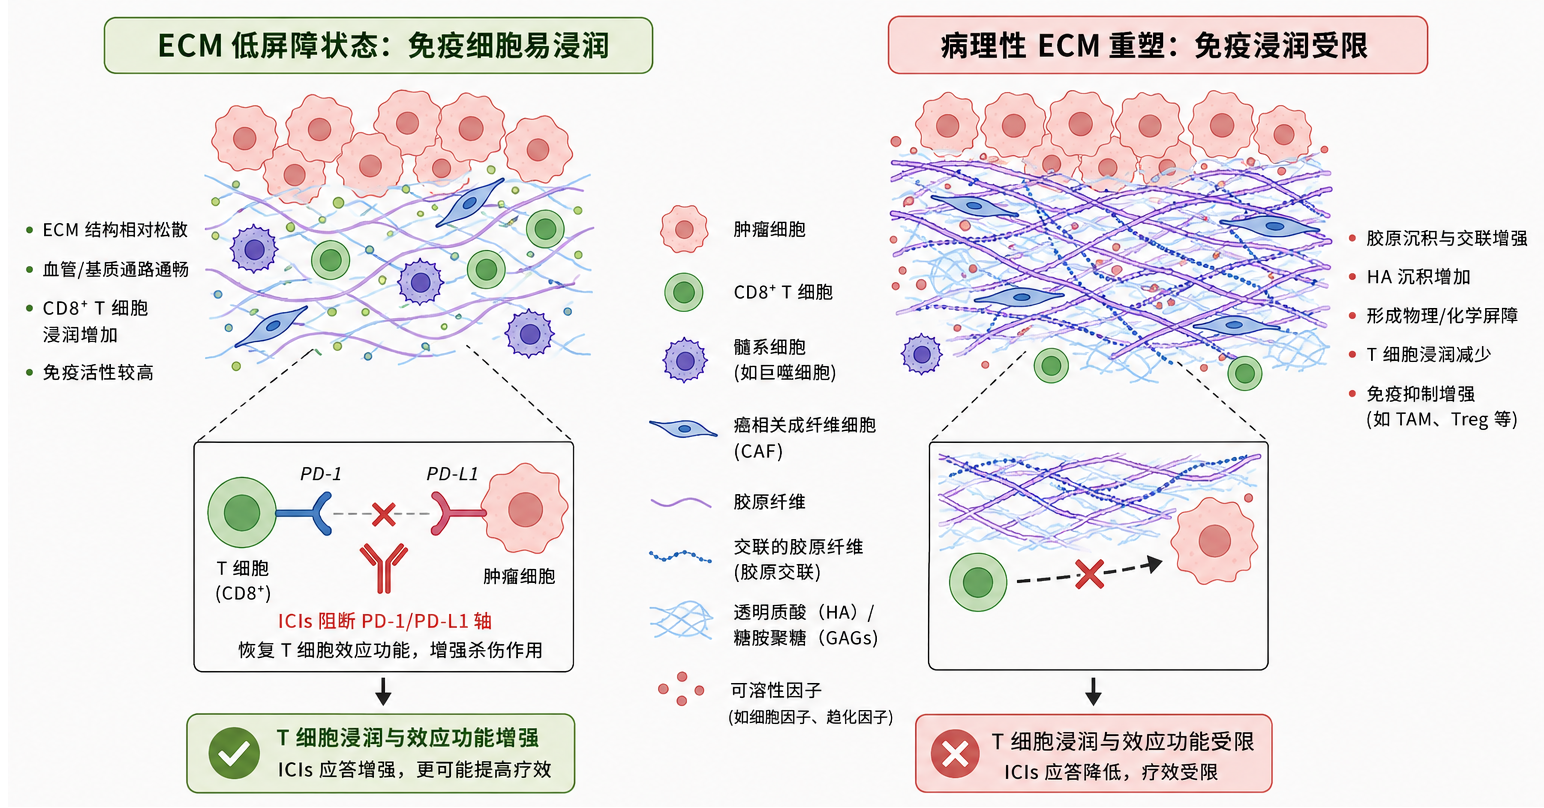
1 ECM动态重塑的基本逻辑
1.1 ECM不是被动支架
ECM由胶原、纤连蛋白、层粘连蛋白、透明质酸、蛋白聚糖和基质结合因子等组成。正常组织中,ECM维持细胞黏附、组织边界、力学稳定和损伤修复;肿瘤组织中,肿瘤细胞、癌相关成纤维细胞(cancer-associated fibroblasts,CAF)、内皮细胞、巨噬细胞和中性粒细胞会持续改变ECM组成和结构,使其成为影响免疫细胞空间分布和功能状态的动态调控界面。
1.2 ECM重塑的主要形式
(1)基质成分重构
胶原I、胶原III、纤连蛋白、透明质酸、tenascin-C、periostin和多种蛋白聚糖在肿瘤间质中常异常升高。不同成分对应不同免疫影响:胶原沉积更容易形成结构屏障,透明质酸积累可增加间质压力,纤连蛋白和tenascin-C则可改变细胞黏附、迁移和炎症信号。
(2)纤维交联与基质硬化
赖氨酰氧化酶(lysyl oxidase,LOX)介导胶原交联后,肿瘤基质刚度升高,整合素、FAK、Src、YAP/TAZ等力学信号被增强。硬化基质既促进肿瘤细胞侵袭和上皮-间质转化,也会影响T细胞迁移、免疫突触形成和细胞毒性功能。
(3)蛋白水解与片段释放
MMP、ADAMTS、半胱氨酸蛋白酶和透明质酸酶可降解ECM,释放胶原片段、透明质酸片段和蛋白聚糖片段。这些片段可作为matrikines参与趋化、炎症和免疫调控,使基质降解不只是“清除屏障”,也可能重塑髓系细胞募集和免疫抑制状态。
(4)空间拓扑改变
ECM纤维方向、密度、孔隙结构和肿瘤巢周围分布决定免疫细胞能否进入肿瘤细胞富集区域。平行排列的胶原束可为肿瘤细胞迁移提供轨道,却可能使CD8+T细胞停留在间质边缘,形成免疫排斥型空间格局。
2 ECM结构屏障与免疫细胞浸润
2.1 胶原沉积与T细胞排斥
胶原I和胶原III大量沉积会降低肿瘤组织孔隙率,增加免疫细胞进入肿瘤巢的机械阻力。此类肿瘤中,CD8+T细胞并非完全缺失,而是常聚集于胶原丰富的间质区、血管周围或肿瘤边缘,难以与肿瘤细胞形成有效接触。
(1)空间阻隔
致密胶原束可使T细胞停留在肿瘤间质,而非进入肿瘤细胞密集区域。评价时应同时分析Collagen I/III、α-SMA、CD8和肿瘤细胞标志物的空间关系,避免只用总体CD8阳性面积判断免疫浸润水平。
(2)效应功能下降
ECM硬化可通过整合素-FAK和YAP/TAZ相关信号影响肿瘤细胞存活,也会改变T细胞迁移、黏附和免疫突触稳定性。此类样本中,应同步检测Granzyme B、Perforin、IFN-γ和耗竭标志物,以区分“有T细胞但无有效杀伤”和“真正缺乏T细胞浸润”。
(3)免疫治疗抵抗
胶原沉积明显的肿瘤常对免疫检查点抑制剂反应不足,原因之一是T细胞被排斥在肿瘤巢外。单纯解除PD-1/PD-L1抑制未必能恢复杀伤,联合CAF调控、TGF-β阻断、LOX抑制或FAK抑制更适合用于验证ECM屏障相关免疫抵抗。
2.2 透明质酸积累与间质压力
透明质酸具有较强保水能力,异常积累后可增加肿瘤间质压力、压迫血管并限制分子扩散。高透明质酸环境常伴随血管灌注下降、局部低氧、HIF-1α信号增强和髓系细胞募集,使T细胞浸润和抗肿瘤效应进一步受限。
(1)压力屏障
透明质酸升高可使肿瘤间质呈高水合、高压力状态,影响T细胞、NK细胞和治疗分子进入肿瘤实质。此类模型可结合透明质酸染色、血管灌注检测、缺氧标志和免疫细胞定位进行分析。
(2)低氧联动
血管受压和灌注不足会增强低氧应答,促进VEGF、CXCL12和髓系趋化信号表达。若透明质酸积累同时伴随HIF-1α、CD11b或MDSC相关指标升高,提示其可能通过低氧-髓系轴加重免疫抑制。
2.3 基底膜重塑与免疫细胞进入
基底膜由胶原IV、层粘连蛋白、nidogen和硫酸乙酰肝素蛋白聚糖等组成,决定上皮边界和血管屏障状态。肿瘤进展中,基底膜可出现局部断裂、异常增厚或成分重排;局部破坏可能促进侵袭和抗原外泄,异常增厚则可能限制淋巴细胞跨血管迁移和进入肿瘤实质。评价时应将Collagen IV、Laminin、CD31、CD8和肿瘤细胞边界进行联合分析。
3 ECM生化信号与免疫抑制
3.1 整合素-FAK信号
ECM通过整合素与细胞连接,将基质成分、黏附状态和力学压力转化为细胞内信号。肿瘤细胞、CAF、巨噬细胞和T细胞均可感知ECM变化,因此ECM重塑可同时影响肿瘤侵袭、免疫细胞迁移和免疫抑制因子表达。
(1)肿瘤细胞免疫逃逸
胶原、纤连蛋白和层粘连蛋白与整合素结合后,可激活FAK、Src、PI3K-AKT和YAP/TAZ信号,增强肿瘤细胞存活、迁移和抗凋亡能力。部分肿瘤模型中,FAK活化还与趋化因子重排、髓系细胞募集和T细胞排斥有关。
(2)CAF激活
CAF分泌胶原、纤连蛋白、LOX、MMP和TGF-β,持续推动ECM沉积和基质收缩。活化CAF还可释放CXCL12、IL-6和TGF-β,使T细胞停留于间质区并降低其效应功能。
(3)免疫细胞功能改变
T细胞、巨噬细胞和树突状细胞对ECM硬度、黏附配体和降解片段具有感知能力。异常黏附和硬化环境可改变免疫细胞迁移速度、停留时间、极化状态和活化阈值。
3.2 TGF-β储存与激活
TGF-β可与潜伏相关蛋白和ECM结构结合,以潜伏形式储存在基质中。肿瘤组织中的蛋白水解、整合素牵拉和基质硬化可促进TGF-β激活;激活后的TGF-β进一步促进CAF分化、胶原沉积、基质交联和EMT,同时抑制CD8+T细胞效应功能、NK细胞细胞毒性和树突状细胞成熟,使ECM重塑与免疫抑制形成持续放大的反馈环。
3.3 ECM结合因子与趋化梯度
ECM可结合趋化因子、生长因子和炎症因子,形成局部信号储库。纤连蛋白、蛋白聚糖和糖胺聚糖可影响CXCL12、CCL2、VEGF和FGF等分子的局部浓度和扩散范围,使免疫细胞迁移方向和组织定位发生改变。
(1)CXCL12相关免疫排斥
CXCL12在CAF富集和ECM致密区域中可形成免疫排斥相关梯度,使T细胞难以进入肿瘤细胞区域。检测时应关注CXCL12与α-SMA、胶原和CD8分布的空间关系。
(2)CCL2与髓系细胞募集
CCL2可促进单核细胞和巨噬细胞募集,并与TAM和MDSC扩增相关。若CCL2升高伴随CD68、CD163、CD206或Arg1增加,提示ECM重塑可能推动髓系免疫抑制。
(3)VEGF与血管-免疫联动
ECM重塑和低氧环境可促进VEGF表达,改变血管结构和免疫细胞进入路径。VEGF升高时,应同步评估CD31、缺氧标志、T细胞定位和髓系细胞浸润。
4 ECM蛋白水解与免疫重塑
4.1 MMP介导的基质降解
MMP-2、MMP-9和其他基质蛋白酶可降解胶原、明胶、纤连蛋白、层粘连蛋白和蛋白聚糖。适度基质降解可能增加免疫细胞进入空间,过度或选择性降解则可能释放促炎、促血管生成或促侵袭片段。MMP活性升高时,应同时检测ECM结构、TAM/MDSC浸润和T细胞空间分布,而不是把MMP上调简单解释为基质屏障解除。
4.2 基质片段的免疫作用
ECM降解后产生的matrikines可参与炎症、趋化、血管生成和免疫抑制。不同片段的功能取决于分子大小、受体表达、局部细胞组成和肿瘤阶段。
(1)透明质酸片段
高分子透明质酸通常与组织稳定、间质压力和免疫抑制相关,低分子透明质酸片段可通过TLR等通路增强炎症反应和髓系细胞激活。
(2)胶原降解片段
胶原降解片段可影响免疫细胞趋化、血管生成和组织修复反应。肿瘤侵袭边界中,胶原降解常与MMP活性、TAM浸润和肿瘤细胞迁移同步出现。
(3)蛋白聚糖片段
decorin、biglycan等蛋白聚糖及其片段可影响TLR、TGF-β和炎症信号。不同肿瘤模型中,其效应可能表现为促炎、抗肿瘤或促肿瘤,需要结合受体状态和细胞来源判断。
5 ECM重塑对不同免疫细胞的影响
5.1 CD8+T细胞与NK细胞
CD8+T细胞和NK细胞是抗肿瘤细胞毒反应的核心执行细胞。ECM致密化、CAF屏障和TGF-β信号可限制其进入肿瘤巢并削弱杀伤功能。
(1)空间排斥
CD8+T细胞在胶原丰富区域外围聚集,而肿瘤细胞区域T细胞不足,是ECM相关免疫排斥的重要表现。分析时应结合胶原染色、肿瘤细胞区域和CD8定位。
(2)效应功能下降
硬化ECM和TGF-β信号可降低Granzyme B、Perforin和IFN-γ表达。NK细胞也可能受到低氧、高基质压力和TGF-β影响,表现为细胞毒性下降。
(3)免疫治疗反应受限
ECM屏障明显时,PD-1/PD-L1阻断可能无法充分恢复杀伤,因为T细胞尚未有效接触肿瘤细胞。ECM调控或CAF/TGF-β轴干预可作为免疫治疗联合方向。
5.2 巨噬细胞、MDSC与中性粒细胞
ECM重塑常与髓系免疫抑制同步发生。胶原沉积、透明质酸积累、MMP活化和基质片段释放可促进单核细胞、中性粒细胞和MDSC募集,并推动TAM向免疫抑制表型转化。
(1)TAM极化
M2样TAM可分泌MMP、TGF-β、VEGF和胶原调节因子,进一步促进ECM降解、基质沉积和血管异常。CD68、CD163、CD206与ECM标志物联合检测可用于判断髓系抑制状态。
(2)MDSC募集
MDSC可通过精氨酸代谢、ROS和免疫抑制因子削弱T细胞功能。若ECM重塑伴随CD11b、Arg1或Ly6G/Ly6C相关指标升高,提示肿瘤微环境可能由细胞毒免疫转向髓系抑制。
(3)中性粒细胞与蛋白酶
肿瘤相关中性粒细胞释放的蛋白酶可参与ECM降解和侵袭边界重塑。中性粒细胞增加时,应结合MMP活性、胶原降解和T细胞定位判断其免疫影响。
5.3 树突状细胞与Treg
树突状细胞需要在肿瘤组织中捕获抗原并迁移至淋巴组织完成抗原呈递;Treg则在TGF-β、IL-10和CAF富集环境中更容易扩增。致密ECM和TGF-β高活性状态会限制树突状细胞迁移与成熟,同时为FOXP3+Treg积累提供稳定生态位,使局部免疫反应从抗肿瘤方向转向免疫耐受方向。
6 ECM-免疫互作的实验研究策略
6.1 空间共定位分析
ECM重塑影响免疫应答的关键不只是表达量变化,而是空间关系改变。胶原、透明质酸、纤连蛋白、CAF标志物和免疫细胞标志物应尽量联合检测,以判断免疫细胞是否被阻隔在基质区、血管周围或肿瘤边缘。
(1)组织染色
Masson三色染色、Van Gieson染色、透明质酸染色、阿利新蓝染色、PASM染色和网状纤维染色可分别用于评价胶原沉积、黏多糖积累、基底膜结构和网状纤维支架。不同染色结果应与CD8、CD68、α-SMA和CD31等标志物联合分析,才能判断ECM结构是否真正影响免疫细胞进入路径。
(2)多重免疫荧光
多重免疫荧光适合同时检测Collagen I、Fibronectin、α-SMA、CD8、CD68、FOXP3和PD-L1,用于分析ECM结构与免疫细胞空间关系。DAPI或Hoechst核染可辅助细胞定位和组织结构判读。
(3)二次谐波成像
二次谐波成像可无标记观察胶原纤维结构,适合分析纤维方向、密度和肿瘤侵袭边界,并用于研究胶原排列与T细胞排斥的关系。
6.2 三维基质与共培养模型
二维培养难以模拟ECM对免疫细胞迁移和肿瘤细胞力学信号的影响。三维胶原凝胶、透明质酸水凝胶、去细胞化基质和类器官-免疫细胞共培养更适合研究ECM-免疫互作。
(1)三维胶原模型
三维胶原模型可调节胶原浓度、纤维密度和硬度,用于分析T细胞迁移、肿瘤细胞侵袭和CAF收缩。羟脯氨酸定量可用于补充胶原沉积的组织染色结果。
(2)CAF-肿瘤-免疫细胞共培养
CAF、肿瘤细胞和T细胞或巨噬细胞共培养模型适合分析CXCL12、TGF-β、胶原沉积和T细胞定位之间的关系。MMP抑制剂可用于验证基质蛋白水解是否参与免疫细胞迁移改变。
(3)类器官与基质重构模型
肿瘤类器官与ECM材料和免疫细胞结合后,可用于观察免疫细胞进入类器官、识别肿瘤细胞和执行杀伤的过程。透明质酸或胶原富集条件可用于模拟免疫排斥型基质屏障。
6.3 因果验证策略
ECM重塑与免疫抑制之间不能只做相关性分析,需要通过干预实验验证因果关系。常用策略包括抑制MMP改变蛋白水解、降解透明质酸改善间质压力、阻断TGF-β信号减弱CAF-ECM轴,以及抑制FAK或整合素信号改善免疫排斥。
7 相关试剂与材料选型
表1 ECM重塑与肿瘤免疫研究相关组织染色和空间定位材料
货号 | 产品名称 | 规格/纯度 | 应用模块 | 应用定位 |
透明质酸染色液 | BioReagent,生物染色剂,用于显微镜 | 透明质酸检测 | 评价透明质酸积累、间质压力相关基质改变和免疫细胞进入障碍 | |
阿利新蓝染色液 (pH2.5) | BioReagent,用于显微镜,生物染色剂 | 酸性黏多糖染色 | 检测酸性黏多糖和黏液样基质,辅助评价透明质酸富集组织 | |
阿利新蓝染色液(pH 1.0) | BioReagent, 生物染色剂, 用于显微镜 | 硫酸化黏多糖染色 | 分析硫酸化糖胺聚糖和蛋白聚糖相关基质改变 | |
改良Hale胶体铁黏多糖染色液 | BioReagent,用于显微镜,生物染色剂 | 黏多糖检测 | 辅助分析透明质酸、酸性黏多糖和肿瘤间质黏液样基质变化 | |
改良Masson三色染色液 | BioReagent, 生物染色剂, 用于显微镜 | 胶原纤维染色 | 评价胶原纤维沉积、间质纤维化和ECM屏障形成 | |
Van Gieson染色液 | BioReagent, 生物染色剂, 用于显微镜 | 胶原纤维染色 | 评价胶原沉积和肿瘤基质纤维化 | |
基底膜六胺银染色液 (PASM) | BioReagent, 生物染色剂, 用于显微镜 | 基底膜染色 | 评价基底膜完整性、血管基底膜变化和免疫细胞进入路径 | |
网状纤维染色液 (改良Gomori银氨法) | BioReagent, 生物染色剂, 用于显微镜 | 网状纤维染色 | 评价网状纤维和基质支架结构变化 | |
Russell改良Movat五色套染染色液 | BioReagent,生物染色剂,用于显微镜 | 多成分ECM染色 | 同时观察胶原、弹力纤维和黏液样基质等多类间质成分 | |
Verhöeff弹力纤维染色液 (伊红复染) | BioReagent,生物染色剂,用于显微镜 | 弹力纤维染色 | 分析血管壁和间质弹力纤维变化,辅助评价血管-基质重塑 | |
DAPI染色液 | BioReagent, 用于显微镜, 无菌过滤, 适用于免疫荧光(IF), 1.0mg/mL | 免疫荧光核染 | 用于ECM标志物、CAF标志物和免疫细胞空间共定位分析 | |
Hoechst 33342染色液 | 适用于免疫荧光(IF), BioReagent, 即用型, 生物染色剂, 适用于荧光分析, 生物染料级, 用于显微镜, 用于细胞培养, 1.0mg/ml in H₂O | 细胞核染色 | 用于ECM-免疫细胞共培养、类器官和组织切片成像分析 |
表2 ECM蛋白水解、胶原定量与MMP干预相关产品
货号 | 产品名称 | 规格/纯度 | 应用模块 | 应用定位 |
羟脯氨酸 (HYP) 含量检测试剂盒(Ehrlich, 微量法) | BioReagent | 胶原定量 | 用于总胶原含量评价,补充Masson、Van Gieson等组织染色结果 | |
GM 6001,广谱MMP抑制剂 | Moligand™,≥98% | MMP抑制 | 阻断MMP介导的ECM降解,评价蛋白水解与免疫重塑关系 | |
MMP-2 / MMP-9抑制剂I | Moligand™,≥99% | MMP-2/MMP-9抑制 | 用于分析明胶酶活性对基底膜降解和免疫细胞浸润的影响 | |
SB-3CT,MMP-2和MMP-9抑制剂 | Moligand™,≥98% | MMP-2/MMP-9抑制 | 验证MMP-2/MMP-9在侵袭边界和免疫重塑中的作用 | |
JNJ 0966,Pro-MMP9激活抑制剂 | ≥98%(HPLC) | Pro-MMP9激活抑制 | 分析MMP-9激活过程与肿瘤炎症、侵袭和免疫重塑关系 | |
MMP-9抑制剂 | ≥95% | MMP-9抑制 | 用于MMP-9介导基质降解、血管重塑和髓系细胞募集研究 | |
CL-82198,MMP-13抑制剂 | Moligand™,≥98% | MMP-13抑制 | 用于胶原降解、纤维化基质和侵袭边界相关研究 | |
MMP2 Mouse mAb | 无载体, ExactAb™, 已验证, 高性能, 见COA | MMP检测 | 检测MMP-2表达,评价明胶/基底膜降解 | |
MMP9 antibody | ExactAb™, 已验证, 重组, 见COA | MMP检测 | 检测MMP-9表达,分析ECM蛋白水解、炎症和免疫重塑 | |
人基质金属蛋白酶2(MMP-2)酶联免疫吸附测定试剂盒 | BioReagent | MMP定量检测 | 定量检测人样本MMP-2水平,评价ECM降解活性 | |
人基质金属蛋白酶9(MMP-9)酶联免疫吸附测定试剂盒 | BioReagent | MMP定量检测 | 定量检测人样本MMP-9水平,分析炎症性基质重塑 | |
小鼠基质金属蛋白酶2(MMP-2)酶联免疫吸附测定试剂盒 | BioReagent | 小鼠MMP定量检测 | 用于小鼠肿瘤模型中MMP-2检测 | |
小鼠基质金属蛋白酶9(MMP9)酶联免疫吸附测定试剂盒 | BioReagent | 小鼠MMP定量检测 | 用于小鼠肿瘤模型中MMP-9检测 | |
Recombinant Human MMP-2 Protein | 无动物源,无载体,生物活性,His标签,≥90%(SDS-PAGE) | 重组MMP蛋白 | 用于MMP-2功能实验、底物验证和阳性对照 | |
Recombinant Human MMP-9 Protein | 无动物源,无载体,生物活性,高性能,His标签,PBS Only,≥95%(SDS-PAGE) | 重组MMP蛋白 | 用于MMP-9活性研究、底物验证和基质降解模型 |
8 常见问题
8.1 为什么ECM丰富的肿瘤常表现为免疫排斥?
ECM丰富并不只是基质多,而是胶原致密化、CAF扩增、TGF-β激活和趋化因子重排共同形成空间屏障。T细胞可能已被募集到肿瘤周围,但无法进入肿瘤巢并接触肿瘤细胞,因此表现为免疫排斥而非完全免疫缺失。
8.2 ECM重塑是否一定抑制抗肿瘤免疫?
不一定。部分ECM降解可增加免疫细胞进入空间,部分基质片段也可诱导炎症反应。但在多数进展期实体瘤中,持续胶原沉积、基质硬化、CAF活化和TGF-β信号增强更常与免疫抑制和治疗抵抗相关。
8.3 只检测胶原含量能否判断ECM免疫调控作用?
不能。胶原含量只能反映ECM重塑的一部分,还需要结合纤维排列、交联程度、CAF分布、T细胞空间定位和效应功能。相同胶原含量下,不同纤维方向和孔隙结构可能产生完全不同的免疫浸润模式。
8.4 CAF为什么是ECM重塑和免疫抑制之间的关键连接点?
CAF既是ECM主要来源之一,也是TGF-β、CXCL12、IL-6、MMP和LOX等分子的来源。CAF可通过沉积和收缩ECM形成物理屏障,也可通过免疫抑制因子改变T细胞、巨噬细胞和树突状细胞功能。
8.5 ECM调控为什么会影响免疫检查点治疗效果?
免疫检查点抑制剂需要已有或可恢复的抗肿瘤T细胞反应。若ECM屏障使T细胞无法进入肿瘤巢,单纯解除PD-1/PD-L1抑制可能不足以恢复杀伤。降低基质屏障、阻断TGF-β或调节CAF功能,可增强T细胞进入和免疫检查点治疗反应。
8.6 ECM-免疫互作研究中最重要的实验设计是什么?
核心是空间共定位和因果干预。空间共定位用于判断ECM是否真正限制免疫细胞进入肿瘤区域;因果干预用于验证ECM重塑是否驱动免疫排斥。只有同时观察ECM结构改变、免疫细胞定位变化和效应功能恢复,才能较完整地解释ECM对肿瘤免疫应答的调控作用。
ECM动态重塑通过结构屏障、力学信号、蛋白水解、TGF-β储存和趋化梯度重排共同塑造肿瘤免疫微环境。围绕ECM成分、空间结构、CAF活性和免疫细胞定位建立联合评价体系,有助于判断肿瘤免疫排斥的形成机制,并为ECM靶向联合免疫治疗提供实验依据。
更多相关文章,详见下方:
[1] 细胞外基质(ECM)的制备实验


 危险品化学品经营许可证(带存储)