
纤维素降解关键酶的催化机制、功能分工与研究应用
纤维素降解关键酶的催化机制、功能分工与研究应用
纤维素降解依赖内切葡聚糖酶、纤维二糖水解酶和β-葡萄糖苷酶的连续协同。不同酶分别负责纤维素链内切割、链末端降解及纤维二糖水解,共同决定纤维素糖化效率。
关键词:纤维素;纤维素酶;内切葡聚糖酶;纤维二糖水解酶;β-葡萄糖苷酶;纤维二糖;酶协同;生物质转化
1 纤维素的结构特征与酶促降解过程
1.1 纤维素的分子结构
纤维素由D-葡萄糖通过β-1,4-糖苷键连接形成线性多糖。相邻葡萄糖残基方向交替,重复结构单元可表示为纤维二糖。纤维素链之间通过氢键和疏水相互作用排列成微纤丝,排列紧密的结晶区结构稳定、酶可及性较低,排列疏松的无定形区则更容易被纤维素酶结合和水解。
1.2 木质纤维素中的纤维素可及性
天然植物细胞壁中的纤维素通常与半纤维素、木质素和果胶共同形成复合结构。半纤维素覆盖纤维素表面,木质素限制酶向纤维素内部扩散,并可能通过非特异性吸附降低有效酶浓度。机械粉碎、酸碱处理、蒸汽爆破或生物预处理可破坏细胞壁结构,提高孔隙度和纤维素暴露程度,但过强处理也可能产生糠醛、酚类及有机酸等酶抑制物。
1.3 纤维素酶促降解的主要阶段
(1)纤维素链内部切割
内切葡聚糖酶优先作用于无定形区,在纤维素链内部切断β-1,4-糖苷键。该过程可迅速降低纤维素聚合度,并产生新的还原端和非还原端。
(2)纤维素链末端降解
纤维二糖水解酶从纤维素链末端连续切除纤维二糖或短链寡糖。其过程性水解能力使其能够沿纤维素链移动,并持续释放可溶性产物。
(3)可溶性产物水解
β-葡萄糖苷酶将纤维二糖和短链纤维寡糖水解为葡萄糖。该过程既完成终末糖化,也可减少纤维二糖对其他纤维素酶的产物抑制。
2 内切葡聚糖酶介导的纤维素链内切割
2.1 底物识别特征
内切葡聚糖酶(endoglucanase,EG)主要识别纤维素链内部可接近的β-1,4-葡聚糖片段。其活性中心通常呈开放裂缝状,能够容纳纤维素链中间区域,而不要求底物具有游离链末端。羧甲基纤维素等可溶性纤维素衍生物具有较高可及性,常用于检测内切葡聚糖酶活性;微晶纤维素和滤纸中的结晶结构较多,仅使用内切葡聚糖酶通常难以实现充分降解。
2.2 催化机制
内切葡聚糖酶通过活性中心中的酸性氨基酸残基催化β-1,4-糖苷键断裂。根据糖异头碳构型是否保留,可将催化机制分为构型保留型和构型反转型。构型保留型酶通常经过糖基化酶中间体完成两步水解,构型反转型酶则通过单次亲核取代完成反应,使产物的异头构型发生反转。
2.3 对纤维素结构的影响
内切切割能够在较短时间内降低纤维素平均聚合度和溶液黏度。随着链内切口增加,纤维素表面形成更多可供纤维二糖水解酶利用的链末端。内切葡聚糖酶对无定形区作用较强,但对高结晶纤维素的单独水解能力有限,其主要功能不是直接产生大量葡萄糖,而是打开纤维素结构并增加后续酶的作用位点。
3 纤维二糖水解酶介导的纤维素链末端降解
3.1 链末端识别与过程性水解
纤维二糖水解酶(cellobiohydrolase,CBH)又称外切纤维素酶,主要从纤维素链的还原端或非还原端开始水解,不同CBH具有不同的链末端方向偏好。其催化结构域常具有隧道状底物结合通道,可包围纤维素单链。底物进入通道后,酶可沿纤维素链连续移动并反复切割,而不需要每完成一次反应就完全解离。
3.2 纤维二糖的形成
CBH每次切割通常释放纤维二糖,也可能生成少量较短的纤维寡糖。纤维二糖是纤维素酶解过程中的主要可溶性中间产物,但不能直接参与多数常规发酵微生物的糖代谢。当体系中β-葡萄糖苷酶不足时,纤维二糖会逐渐积累,并抑制CBH和部分内切葡聚糖酶,使总体糖化速率下降。
3.3 纤维素结合结构域
许多真菌和细菌纤维素酶由催化结构域、连接肽和碳水化合物结合模块组成。碳水化合物结合模块可提高酶在不溶性纤维素表面的局部浓度,并延长酶与底物的接触时间。结合能力并非越强越好,过强结合可能降低酶在不同作用位点之间的迁移速度,也可能使酶难以从残余固体中解吸。
4 β-葡萄糖苷酶的底物识别与催化机制
4.1 β-葡萄糖苷酶的底物范围
β-葡萄糖苷酶(β-glucosidase,BGL)催化β-D-葡萄糖苷键水解,可作用于纤维二糖、短链纤维寡糖及部分芳基β-葡萄糖苷。不同来源酶在底物链长、糖苷配基和取代基容忍性方面存在差异。纤维二糖是纤维素糖化中的主要天然底物,对硝基苯基-β-D-吡喃葡萄糖苷等人工底物则常用于快速检测β-葡萄糖苷酶活性。
4.2 催化反应
β-葡萄糖苷酶水解纤维二糖时生成两分子葡萄糖:
纤维二糖+H₂O→2 D-葡萄糖
多数β-葡萄糖苷酶依赖活性中心中的谷氨酸或天冬氨酸残基完成酸碱催化。不同糖苷水解酶家族可采用构型保留或构型反转机制。
4.3 构型保留型催化
构型保留型β-葡萄糖苷酶通常通过双取代机制完成反应。第一步由亲核残基攻击异头碳,形成共价糖基酶中间体;第二步由水分子水解该中间体并释放葡萄糖。该机制也使部分β-葡萄糖苷酶在高底物浓度或特殊受体存在时表现出转糖基活性,此时糖基可能被转移至其他糖分子,而不是直接被水解。
4.4 构型反转型催化
构型反转型β-葡萄糖苷酶通过一步反应完成糖苷键断裂。一个酸性残基向离去基团提供质子,另一个残基活化水分子,使水分子攻击异头碳。反应后产物的异头构型与原底物相反,构型反转型酶通常不形成稳定的共价糖基酶中间体。
5 纤维素酶组分之间的协同作用
5.1 内切酶与外切酶协同
内切葡聚糖酶在纤维素链内部产生新的链末端,纤维二糖水解酶再从这些链末端进行过程性降解。两者共同作用时,纤维二糖释放量通常高于两种酶单独作用结果的简单相加。协同程度受底物结晶度、内切口数量和酶比例影响,内切酶比例过低会限制链末端形成,比例过高则可能产生大量短链底物,但不能同步提高过程性降解效率。
5.2 β-葡萄糖苷酶解除产物抑制
β-葡萄糖苷酶将纤维二糖转化为葡萄糖,可降低纤维二糖对CBH和EG的反馈抑制。其活性不足时,即使上游纤维素酶具有较高活性,纤维素向葡萄糖的最终转化率仍可能受到限制。β-葡萄糖苷酶也可能受到葡萄糖抑制,高固体负荷糖化体系中,除提高BGL添加量外,还需要选择葡萄糖耐受性较强的酶或及时移除糖化产物。
5.3 辅助酶对纤维素可及性的改善
裂解多糖单加氧酶可通过氧化方式切割纤维素链,破坏高度有序的纤维素表面,增加新的链末端,并提高传统水解酶对结晶纤维素的可及性。半纤维素酶、果胶酶和木质素降解相关酶也可通过去除包覆组分改善纤维素暴露。实际生物质糖化体系通常需要多种水解酶和辅助酶共同作用。
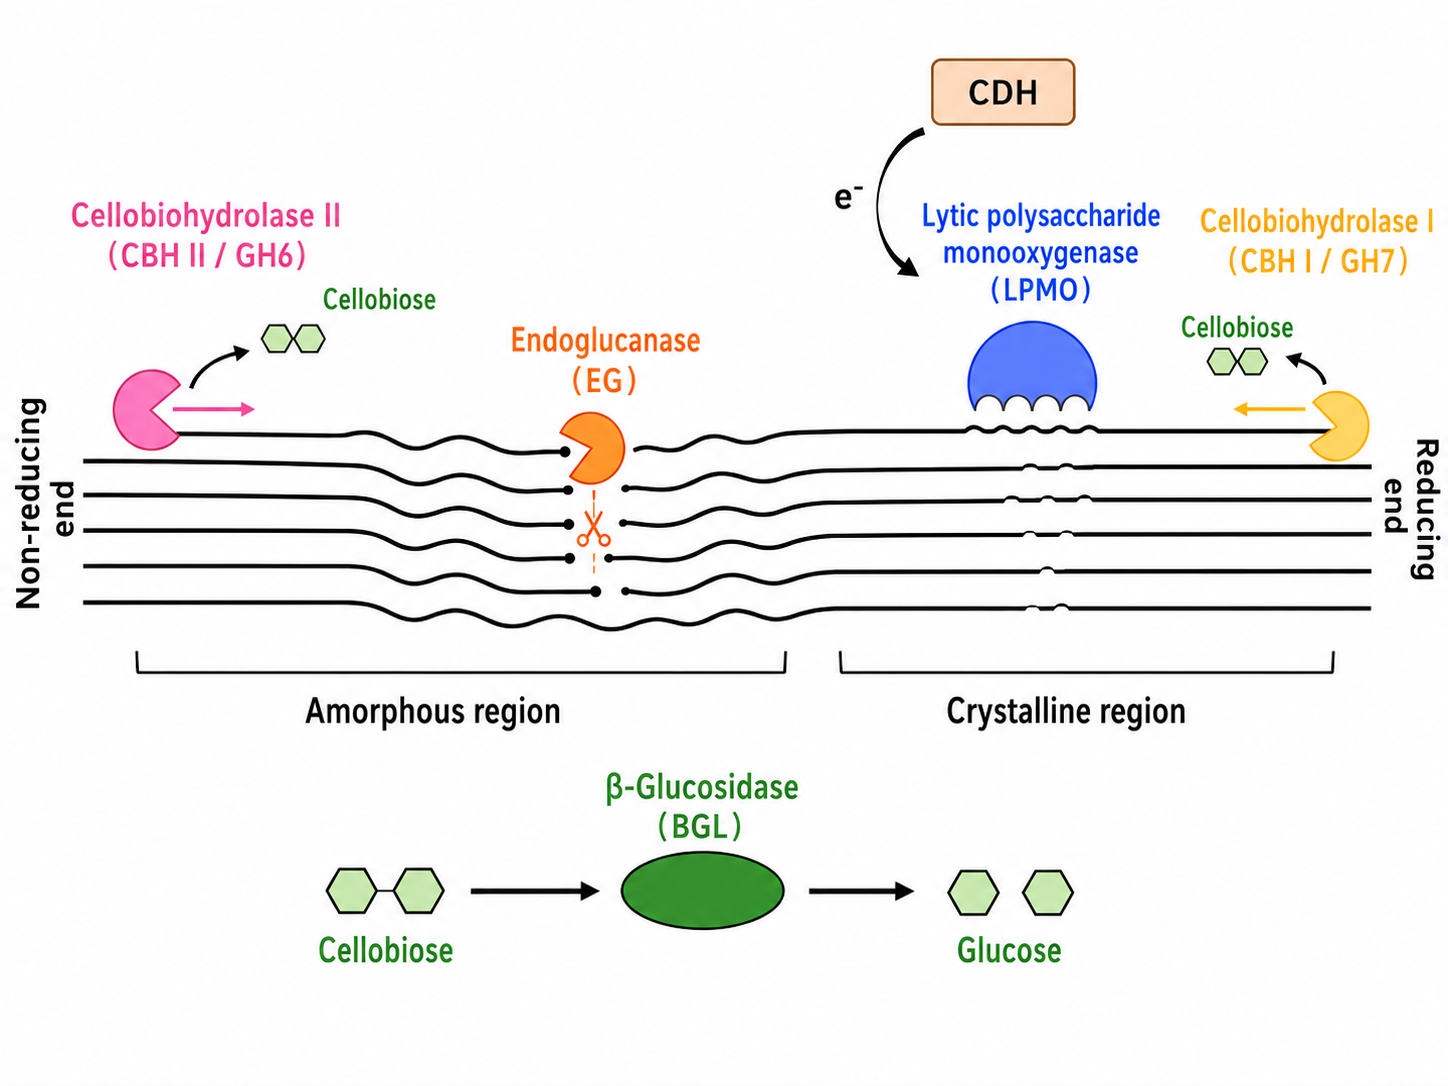
图1 纤维素降解核心水解酶与LPMO的协同作用示意图
5.4 三类核心酶的功能比较
表1 纤维素降解核心酶的功能差异
比较项目 | 内切葡聚糖酶 | 纤维二糖水解酶 | β-葡萄糖苷酶 |
主要作用位点 | 纤维素链内部 | 纤维素链还原端或非还原端 | 纤维二糖及可溶性寡糖末端 |
主要底物 | 无定形纤维素、可溶性纤维素衍生物 | 不溶性纤维素、微晶纤维素 | 纤维二糖、短链纤维寡糖 |
主要产物 | 不同长度的寡糖和新链末端 | 纤维二糖 | 葡萄糖 |
核心功能 | 打开纤维素链并增加末端 | 进行过程性链末端降解 | 完成终末糖化并解除纤维二糖抑制 |
常用检测底物 | 羧甲基纤维素 | 滤纸、微晶纤维素 | 纤维二糖、pNPG |
主要限制因素 | 结晶区可及性低 | 链末端数量和纤维二糖抑制 | 葡萄糖抑制和热稳定性 |
6 β-葡萄糖苷酶的酶学性质与活性调控
6.1 最适pH与温度
β-葡萄糖苷酶的最适pH和温度因微生物来源及蛋白结构而异。许多真菌来源酶在弱酸性条件下具有较高活性,而部分细菌和嗜热微生物来源酶可在中性或较高温度下保持稳定。最适反应条件不等同于长期稳定条件,短时间测得的最高活性温度可能高于酶在长时间糖化过程中能够耐受的温度。
6.2 底物亲和力与催化效率
酶动力学研究常通过Km、Vmax和kcat等参数评价β-葡萄糖苷酶的底物结合及催化能力。在符合Michaelis–Menten动力学的条件下,Km表示反应速率达到Vmax一半时的底物浓度。较低Km通常表示达到半最大反应速率所需的底物浓度较低,但不能脱离Vmax、kcat和检测条件单独判断酶的催化效率。使用人工底物测得的动力学参数不能直接代表酶对纤维二糖的催化能力,进行酶间比较时,应统一底物、pH、温度和反应时间。
6.3 葡萄糖与纤维二糖抑制
葡萄糖可与底物竞争活性位点,或通过其他结合区域改变酶构象。不同β-葡萄糖苷酶对葡萄糖的耐受性差异明显,葡萄糖耐受性是高底物浓度糖化体系的重要筛选指标。纤维二糖浓度过高时也可能产生底物抑制,部分酶还会在高糖浓度下发生转糖基反应,使检测到的葡萄糖量低于实际糖苷键转化程度。
6.4 金属离子与化学环境
Ca²⁺、Mg²⁺、Mn²⁺等离子可能提高部分β-葡萄糖苷酶的结构稳定性或活性,Cu²⁺、Hg²⁺等则可能通过与关键残基结合抑制酶活,具体影响取决于酶来源和离子浓度。有机溶剂、表面活性剂、盐浓度和发酵代谢物也会影响酶活性,研究工业条件下的β-葡萄糖苷酶时,应在接近实际底物和产物环境的条件下评价稳定性。
6.5 酶活性调控与蛋白工程
可通过定向进化、理性设计和结构域改造提高β-葡萄糖苷酶的热稳定性、葡萄糖耐受性或催化效率。改造位点通常涉及底物结合口袋、活性中心周围柔性区域和亚基界面。酶工程结果应同时评价初始活性和长期稳定性,单纯提高人工底物水解速度,不一定能够提高真实木质纤维素体系中的葡萄糖得率。
7 纤维素降解酶在生物质转化、食品与发酵研究中的应用
7.1 木质纤维素糖化与生物燃料
农业秸秆、林业废弃物和能源作物经预处理后,可利用复合纤维素酶转化为可发酵糖。释放的葡萄糖可进一步用于乙醇、有机酸、生物基化学品及微生物油脂生产。糖化效率取决于预处理程度、底物固含量、酶配比和产物抑制,提高单一纤维素酶活性并不能完全解决生物质转化问题,需要同时优化底物结构和复合酶体系。
7.2 食品加工
纤维素酶可用于植物组织软化、果蔬汁提取、咖啡和茶叶加工及膳食纤维改性。通过部分降解细胞壁,可提高汁液释放量和可溶性成分提取效率。食品体系中需要重点控制酶解程度,过度降解可能造成组织结构破坏、黏度异常或感官品质下降。
7.3 饲料与营养研究
纤维素酶可降低植物性饲料中部分结构性多糖的聚合度,提高细胞内营养物质的释放,其作用通常需要与木聚糖酶、果胶酶等协同。动物消化道条件与标准体外酶活测定条件存在差异,评价饲料酶时,应同时考虑胃肠道pH、蛋白酶耐受性和实际饲料基质。
7.4 发酵与微生物研究
纤维素可作为筛选产纤维素酶微生物的主要碳源。通过检测透明圈、还原糖释放量和酶活性,可比较不同菌株的纤维素降解能力。透明圈大小只能反映底物周围的局部降解情况,菌株评价还应结合酶液活性、蛋白分泌量、葡萄糖产率和培养稳定性。
7.5 土壤碳循环与有机质分解
土壤中的植物残体、根系组织和有机肥含有大量纤维素。细菌、真菌及其他土壤微生物可分泌内切-β-1,4-葡聚糖酶、外切-β-1,4-葡聚糖酶和β-葡萄糖苷酶,将纤维素逐步转化为纤维寡糖、纤维二糖和葡萄糖。三类酶分别反映纤维素链内切割、链末端降解和可溶性产物终末水解能力,可用于评价植物残体分解、土壤微生物碳获取以及不同施肥、耕作和环境处理对土壤碳转化的影响。
7.6 纺织、造纸与生物精炼
纤维素酶可用于织物生物抛光、牛仔布整理、纸浆改性和废纸脱墨。适度水解能够去除纤维表面微纤毛或改善纤维间结合状态。此类应用通常要求控制纤维强度损失,酶种类、作用时间和机械剪切应共同优化,避免过度水解造成材料性能下降。
8 纤维素降解相关酶、检测试剂与底物产品
表2 纤维素降解核心酶与复合糖化辅助酶
货号 | 名称 | 级别和纯度 | 研究环节 | 主要应用 |
纤维素二糖水解酶 I (CBH I) | 生物活性, ActiBioPure™, 天然, 高性能, EnzymoPure™, 来源于长枝木霉; ≥3U/mL; ~0.1 U/mg protein | 纤维素链末端降解 | 用于研究CBH I的过程性水解及纤维二糖释放 | |
纤维素酶 | 天然, EnzymoPure™, ≥ 4500 CNU-R/g | 纤维素整体糖化 | 用于纤维素降解、生物质糖化及复合酶活性研究 | |
纤维素酶 来源于曲霉属 | 生物活性, ActiBioPure™, 高性能, EnzymoPure™, ≥1000 U/g liquid | 真菌纤维素酶研究 | 用于液体酶制剂糖化、纤维素降解及发酵研究 | |
纤维素酶 来源于木霉 属 | powder,≥5,000 units/g solid | 木霉纤维素酶研究 | 用于生物质降解、纤维素酶配比及产物释放研究 | |
纤维素酶 来源于里氏木霉 | EnzymoPure™, ≥100,000 U/g powder | 高活性纤维素糖化 | 用于高活性纤维素降解、生物质糖化和酶用量优化 | |
纤维素酶 来源于里氏木霉 | aqueous solution,≥700 units/g | 液体糖化体系 | 用于纤维素底物水解及液体复合酶体系研究 | |
纤维素酶 来源于里氏木霉 | 生物活性, ActiBioPure™, 高性能, EnzymoPure™, ≥700 EGU/g | 内切葡聚糖酶相关研究 | 用于评价纤维素链内切割、还原糖释放及木质纤维素糖化 | |
纤维素酶 来源于里氏木霉 ATCC 26921 | lyophilized powder,≥1 unit/mg solid | 标准菌株来源酶研究 | 用于比较不同酶来源、底物类型及糖化条件 | |
纤维素酶 来源于黑曲霉(载体为淀粉) | 生物活性, ActiBioPure™, 高性能, EnzymoPure™, ≥10,000U/g enzyme powder | 食品与发酵研究 | 用于植物性原料处理、食品加工和发酵糖化 | |
纤维素酶 酶混合物 | 生物活性, ActiBioPure™, 高性能, EnzymoPure™, >1000 BHU/g | 复合纤维素酶研究 | 用于评价多组分纤维素酶的协同糖化能力 | |
纤维素酶(载体为淀粉) | EnzymoPure™, 来源于绿色木霉,≥20,000U/g,粉末 | 工艺型纤维素降解 | 用于生物质处理、食品加工和发酵原料糖化 | |
β-葡萄糖苷酶 | 生物活性, ActiBioPure™, 天然, 高性能, EnzymoPure™, ≥10U/mg powder; 10-60 U/mg protein | 纤维二糖终末水解 | 用于纤维二糖向葡萄糖转化、产物抑制及酶协同研究 | |
β-葡萄糖苷酶 | 生物活性, ActiBioPure™, 天然, 高性能, EnzymoPure™, ≥4 U/mg powder | β-葡萄糖苷键水解 | 用于纤维二糖水解、底物特异性及酶学性质评价 | |
β-葡萄糖苷酶 | 生物活性, 重组, ActiBioPure™, 高性能, EnzymoPure™, ≥90%(SDS-PAGE), ≥5 U/mg enzyme powder; ≥25 U/mg protein | 重组酶机制研究 | 用于β-葡萄糖苷酶动力学、底物识别及葡萄糖生成研究 | |
半纤维素酶 | 生物活性, ActiBioPure™, 高性能, EnzymoPure™, 来源于黑曲霉; ≥400 HCU/mg enzyme powder | 半纤维素去除 | 用于提高木质纤维素中纤维素的暴露程度和酶可及性 | |
半纤维素酶 来源于酵母菌 | EnzymoPure™, ≥200 unit/mg solid | 复合生物质糖化 | 用于半纤维素降解及纤维素酶协同作用研究 | |
半纤维素酶 来源于黑曲霉 | 生物活性, ActiBioPure™, 高性能, EnzymoPure™, ≥50 U/mg enzyme powder | 木质纤维素辅助降解 | 用于提高植物性原料和生物质底物的糖化效率 |
表3 纤维素降解酶活性检测试剂盒
货号 | 名称 | 级别和纯度 | 研究环节 | 主要应用 |
内切-β-1,4-葡聚糖酶活性检测试剂盒(微量法) | BioReagent | 内切葡聚糖酶活性检测 | 用于微量样品中纤维素链内切割能力评价 | |
内切-β-1,4-葡聚糖酶活性检测试剂盒(比色法) | BioReagent | 内切葡聚糖酶活性检测 | 用于植物、微生物或酶制剂中内切酶活性的比色测定 | |
外切-β-1,4-葡聚糖酶活性检测试剂盒(微量法) | BioReagent | 外切葡聚糖酶活性检测 | 用于微量样品中纤维素链末端降解能力评价 | |
外切-β-1,4-葡聚糖酶活性检测试剂盒(比色法) | BioReagent | 外切葡聚糖酶活性检测 | 用于外切酶活性、处理条件及酶协同作用分析 | |
纤维素酶 (CL) 活性检测试剂盒(DNS, 微量法) | BioReagent | 复合纤维素酶活性检测 | 用于通过DNS法检测微量样品中纤维素降解产生的还原糖 | |
纤维素酶 (CL) 活性检测试剂盒(DNS, 比色法) | BioReagent | 复合纤维素酶活性检测 | 用于酶液、发酵液或生物样品中纤维素酶总体活性评价 | |
β-葡萄糖苷酶(β-GC)活性检测试剂盒(微量法) | BioReagent | β-葡萄糖苷酶活性检测 | 用于微量样品中β-葡萄糖苷酶活性测定 | |
β-葡萄糖苷酶(β-GC)活性检测试剂盒(比色法) | BioReagent | β-葡萄糖苷酶活性检测 | 用于酶制剂、植物或微生物样品中β-葡萄糖苷酶活性的比色分析 | |
土壤内切-β-1,4-葡聚糖酶活性检测试剂盒(微量法) | BioReagent | 土壤纤维素链内切割研究 | 用于微量土壤样品中内切葡聚糖酶活性测定 | |
土壤内切-β-1,4-葡聚糖酶活性检测试剂盒(比色法) | BioReagent | 土壤纤维素链内切割研究 | 用于评价土壤微生物内切葡聚糖酶活性及碳循环状态 | |
土壤外切-β-1,4-葡聚糖酶活性检测试剂盒(微量法) | BioReagent | 土壤纤维素链末端降解 | 用于检测土壤外切葡聚糖酶活性 | |
土壤外切-β-1,4-葡聚糖酶活性检测试剂盒(比色法) | BioReagent | 土壤纤维素链末端降解 | 用于评价土壤微生物对纤维素链末端的降解能力 | |
土壤β-葡萄糖苷酶(S-β-GC)活性检测试剂盒(微量法) | BioReagent | 土壤终末糖化研究 | 用于微量土壤样品中β-葡萄糖苷酶活性检测 | |
土壤β-葡萄糖苷酶(S-β-GC)活性检测试剂盒(比色法) | BioReagent | 土壤终末糖化研究 | 用于评价土壤纤维二糖水解及碳循环相关酶活性 |
表4 纤维二糖底物与糖化产物检测相关产品
货号 | 名称 | 级别和纯度 | 研究环节 | 主要应用 |
D-纤维二糖 | ≥98% | β-葡萄糖苷酶天然底物 | 用于β-葡萄糖苷酶水解、动力学及产物抑制研究 | |
纤维二糖 | 10mM in Water | 即用型底物体系 | 用于β-葡萄糖苷酶反应和酶活检测 | |
纤维二糖 | 分析标准品 | 纤维二糖定量 | 用于色谱分析、产物定量及标准曲线建立 | |
纤维二糖片 | 适用于微生物学, Sterile filter paper discs impregnated with cellobiose | 微生物发酵鉴定 | 用于评价微生物对纤维二糖的利用和发酵能力 | |
葡萄糖氧化酶 来源于黑曲霉 | 生物活性, ActiBioPure™, 高性能, EnzymoPure™, 冻干粉, ≥180 U/mg enzyme powder | 葡萄糖偶联检测 | 用于建立葡萄糖氧化酶偶联检测体系 | |
重组葡萄糖氧化酶 (GOD) | 生物活性, 重组, ActiBioPure™, 高性能, EnzymoPure™, ≥90%(SDS-PAGE), ≥150U/mg enzyme powder; ≥300U/mg protein | 重组偶联检测体系 | 用于葡萄糖定量方法建立及酶解产物分析 | |
葡萄糖含量检测试剂盒 (GOD-POD, 比色法) | BioReagent | 葡萄糖终产物检测 | 用于定量纤维素或纤维二糖水解产生的葡萄糖 | |
葡萄糖检测试剂盒(GOD-POD微板法) | BioReagent | 葡萄糖高通量检测 | 用于微孔板体系中批量检测糖化液葡萄糖含量 | |
葡萄糖检测试剂盒(GOD-POD微板法) | BioReagent, 适用于分析, 比色法 | 葡萄糖高通量检测 | 用于纤维素酶筛选和糖化条件优化中的葡萄糖定量 | |
葡萄糖含量检测试剂盒(Folin-Wu, 微量法) | BioReagent | 葡萄糖微量检测 | 用于成分较简单样品中的葡萄糖估算 | |
葡萄糖含量检测试剂盒(Folin-Wu, 比色法) | BioReagent | 葡萄糖比色检测 | 用于成分较简单样品中的葡萄糖估算 | |
还原糖含量检测试剂盒 (DNS, 微量法) | BioReagent | 总还原糖检测 | 用于检测纤维素降解产生的葡萄糖、纤维二糖及其他还原性寡糖 | |
还原糖含量检测试剂盒(斐林, 微量法) | BioReagent | 还原糖微量检测 | 用于微量糖化样品中还原糖含量测定 | |
还原糖含量检测试剂盒(斐林, 比色法) | BioReagent | 还原糖比色检测 | 用于酶解液和发酵液中总还原糖评价 | |
还原糖含量检测试剂盒(斐林滴定法) | BioReagent | 还原糖滴定检测 | 用于较大批量样品或工艺体系中的还原糖定量 |
更多相关文章,详见下方:
[1] 纤维素酶(Cellulase):复合酶系构成、作用机理与应用要点
[2] 从天然纤维素到纳米晶体:CNC 的结构特性、应用方向与产业化挑战
[3] 羧甲基纤维素钠(CMC-Na)实用指南:增稠/稳定机理、配液关键控制点与选型导航(含表1、表A–C)


 危险品化学品经营许可证(带存储)