
血管生成调控网络的关键节点与代表性机制研究综述
血管生成调控网络的关键节点与代表性机制研究综述
血管生成是机体在既有血管基础上形成新生血管的生物学过程,旨在维持组织灌注并满足细胞对氧与营养的需求。其发生发展受可溶性生长因子、细胞因子、蛋白酶系统、细胞外基质重塑以及细胞黏附分子等多层级因素精细调控。对血管生成分子网络及其病理性重编程机制的解析,为肿瘤进展、慢性炎症、代谢性疾病并发症与组织修复等领域的机制研究与靶向干预提供了重要理论基础。
关键词:血管生成;外泌体;肿瘤微环境;炎症免疫;Wnt/β-catenin;缺氧;细胞外基质
一、血管生成的概念与生物学意义
1.1 基本定义与主要形态
血管生成通常指在既有血管网络上通过内皮细胞激活、迁移、增殖、管腔化与成熟稳定等步骤形成新生毛细血管的过程。典型形态包括萌芽式血管生成(sprouting angiogenesis)与内插式血管生成(intussusceptive angiogenesis),二者可在不同组织微环境与力学条件下协同贡献于血管网络扩展与重塑。
1.2 生理性与病理性血管生成的边界
生理性血管生成参与胚胎发育、月经周期与创伤修复等;病理性血管生成则常表现为结构与功能异常(血管畸形、通透性升高、灌注效率下降),在肿瘤生长转移、慢性炎症性疾病以及糖尿病相关组织修复障碍中具有关键作用。两者差异的核心在于调控网络的“时空尺度”与“反馈闭环”是否被持续性放大或失衡。
二、血管生成的关键分子与调控层级
2.1 可溶性因子轴与受体信号转导
VEGF家族、FGF家族与Ang/Tie轴是驱动内皮细胞激活与血管稳定化转换的关键模块。不同因子在受体层面形成“并联通路”,并通过MAPK/ERK、PI3K/AKT、JAK/STAT、SMAD等下游级联实现对细胞周期、迁移骨架与代谢适配的耦合调控。
2.2 细胞外基质、蛋白酶系统与黏附网络
基质金属蛋白酶(MMPs)等蛋白酶系统通过降解基底膜与重塑细胞外基质,为内皮细胞迁移与管腔化提供空间与生化线索;整合素、选择素与免疫细胞黏附分子则在细胞—基质、细胞—细胞相互作用中决定“趋化—黏附—穿越—定植”的连续事件链。
2.3 免疫微环境与内皮表型重编程
巨噬细胞、成纤维细胞与肿瘤细胞可通过分泌因子与囊泡通讯共同塑造促血管生成生态位。免疫细胞浸润不仅提供促血管生成介质,也可能通过受体表达谱与转录因子活性改变内皮细胞的应答阈值与反馈增益,从而将短暂修复性反应转化为持续的病理性新生血管生成。
三、代表性研究实例的结构化整理
3.1 外泌体circCOL1A1通过EIF4A3与Smad2/3轴促进结直肠癌血管生成(对应文献[1])
【研究背景与科学问题】
结直肠癌相关血管生成与肿瘤进展密切相关,环状RNA在肿瘤细胞通讯与微环境重塑中的作用日益受到关注。该研究聚焦于肿瘤来源外泌体携带的circCOL1A1是否通过特定RNA结合蛋白与信号通路重塑内皮细胞血管生成表型。
【研究设计与关键方法】
围绕“肿瘤细胞—外泌体—内皮细胞”轴线,采用qRT-PCR、免疫组化与蛋白印迹检测关键分子表达;以HUVEC为模型评估增殖、迁移与管形成;通过RIP、RNA pull-down与FISH验证分子互作;并以异种移植模型进行体内验证。
【关键结果】
外泌体circCOL1A1促进内皮细胞血管生成表型增强;EIF4A3在肿瘤组织中上调并参与促进内皮反应;Smad2/3相关信号被激活,体内表现为肿瘤生长与血管生成加速。
【机制模型与解释】
机制链条可概括为:肿瘤细胞释放富含circCOL1A1的外泌体→内皮细胞摄取后circCOL1A1招募EIF4A3→EIF4A3稳定Smad2/3相关mRNA并增强通路输出→诱导内皮迁移、管形成等血管生成程序。
【潜在转化意义与局限】
该工作提示外泌体circRNA可作为肿瘤血管生成调控的上游信号节点,具备作为液体活检标志物或干预靶点的潜在价值;但外泌体摄取效率、体内分布与组织特异性仍需在更贴近临床的模型中进一步量化。
3.2 GRK2–PPARγ–Flt-1轴调控类风湿关节炎促血管生成巨噬细胞浸润(对应文献[2])
【研究背景与科学问题】
类风湿关节炎滑膜炎症与异常血管生成相互促进。巨噬细胞浸润与极化状态与疾病严重程度相关,但其促血管生成特性受何种细胞内信号模块精细调控仍存在关键空白。
【研究设计与关键方法】
在胶原诱导性关节炎模型中,利用髓系特异性GRK2缺失小鼠评估滑膜炎症与M1极化;结合RNA-seq与双荧光素酶报告筛选GRK2互作与下游转录调控轴;并以药理学抑制验证可干预性。
【关键结果】
GRK2缺失改善滑膜炎症与M1极化;PPARγ被确认为GRK2互作相关模块;促迁移与促血管生成相关的Flt-1(VEGFR1)转录受到GRK2-PPARγ轴调控;抑制GRK2活性可降低Flt-1+巨噬细胞相关的炎症与血管生成表型。
【机制模型与解释】
机制要点为:炎症环境中GRK2膜募集增加→抑制PPARγ关键位点活化与转录抑制功能→解除对Flt-1转录的限制→增强Flt-1+巨噬细胞浸润与促血管生成效应→加重滑膜炎症与血管生成。
【潜在转化意义与局限】
该研究将“免疫细胞浸润—血管生成”耦合现象具体化为可药物调控的细胞内信号轴,为炎症性疾病中异常血管生成的干预提供了更具靶向性的策略框架;但不同关节微环境、不同巨噬细胞亚群的异质性仍可能影响疗效外推。
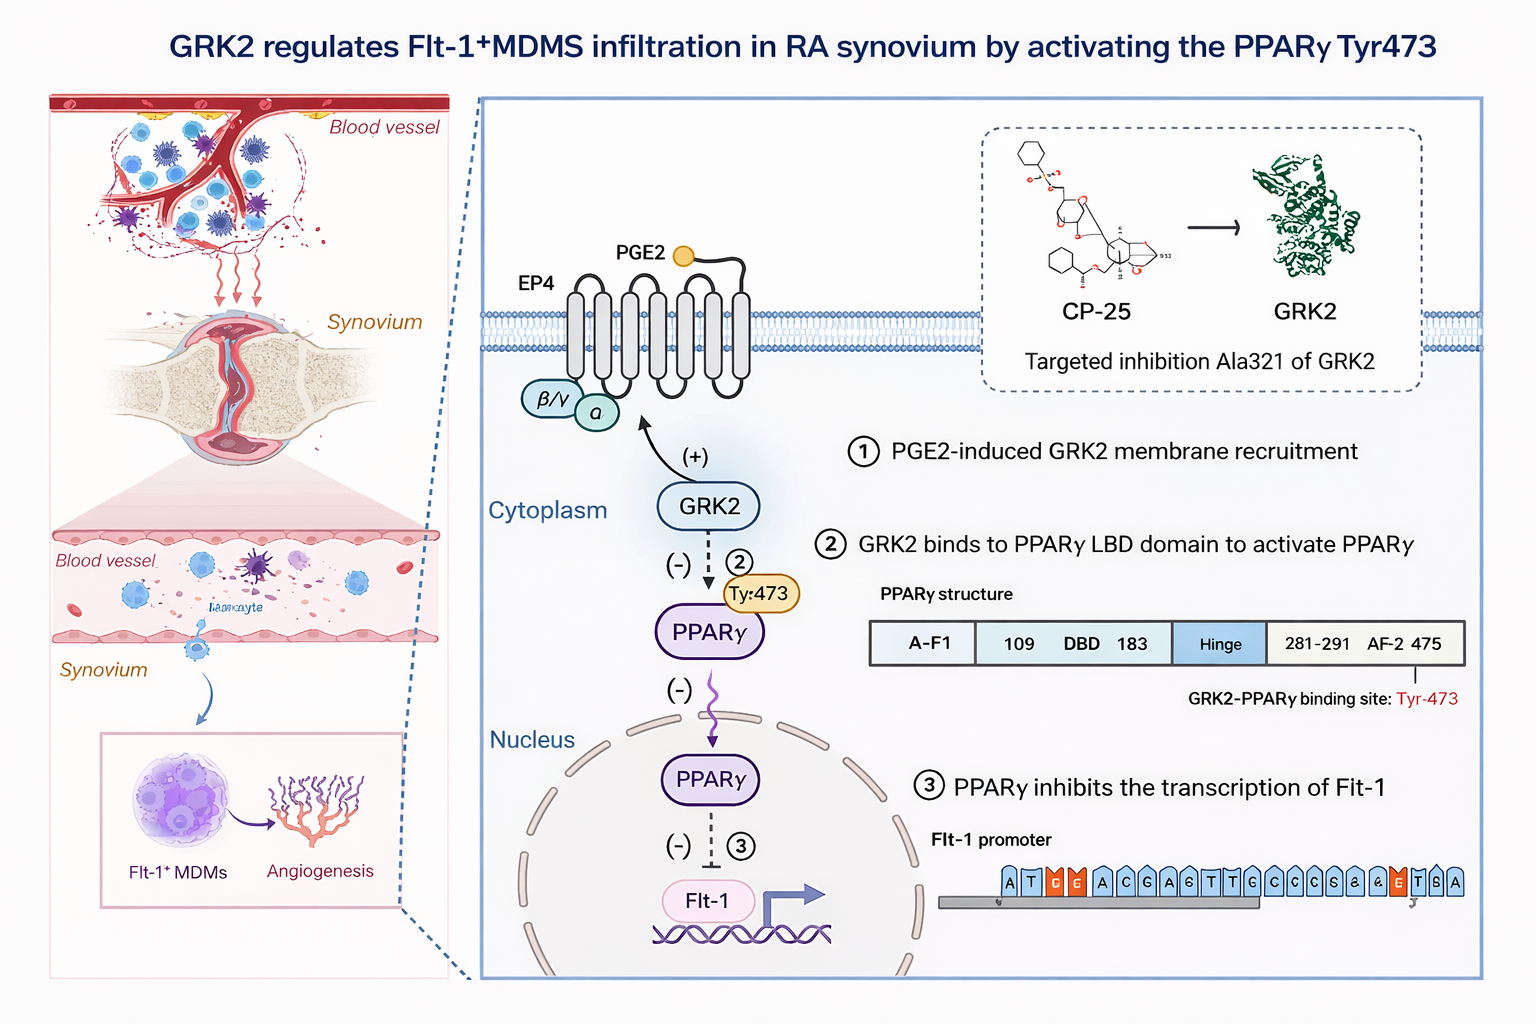
图一 GRK2通过激活PPARγ(Tyr473)抑制Flt-1转录从而调控RA滑膜Flt-1⁺MDMS浸润的机制示意图
3.3 sEV来源vWF诱导肿瘤—内皮细胞正反馈环路促进肝细胞癌血管生成与转移(对应文献[3])
【研究背景与科学问题】
肝细胞癌具有显著的高血管性特征,肿瘤与内皮细胞之间的通讯可形成持续促血管生成的微环境。该研究关注循环小细胞外囊泡(sEV)携带的蛋白因子是否构成肿瘤—内皮互作的关键放大器。
【研究设计与关键方法】
通过循环sEV蛋白质组学筛选候选分子并进行分期相关性分析;在体外评估内皮血管生成、肿瘤—内皮黏附与信号因子诱导;在体内评估血管渗漏与转移;并以抗体阻断与受体抑制剂验证反馈闭环的可切断性。
【关键结果】
sEV-vWF随肝癌分期升高;晚期患者循环sEV增强血管生成、肿瘤—内皮黏附、肺血管渗漏与转移;抗vWF抗体可显著削弱上述效应;内皮侧VEGF-A与FGF2水平上调参与信号放大,FGF2进一步通过FGFR4/ERK1在肿瘤侧形成正反馈增强。
【机制模型与解释】
可归纳为“囊泡递送—内皮激活—反馈放大”三段式闭环:肿瘤sEV递送vWF→内皮细胞被重编程并释放促血管生成因子(如VEGF-A、FGF2)→FGF2回馈刺激肿瘤细胞并增强相关信号通路→进一步增加促血管生成与转移能力,形成自增强系统。
【潜在转化意义与局限】
研究提示sEV-vWF既可作为疾病进展相关的液体标志物候选,也可作为阻断肿瘤—内皮通讯的干预入口;联合阻断策略在模型中改善治疗响应具有提示意义,但在临床层面的安全窗、免疫副作用与人群分层标准仍需系统评估。
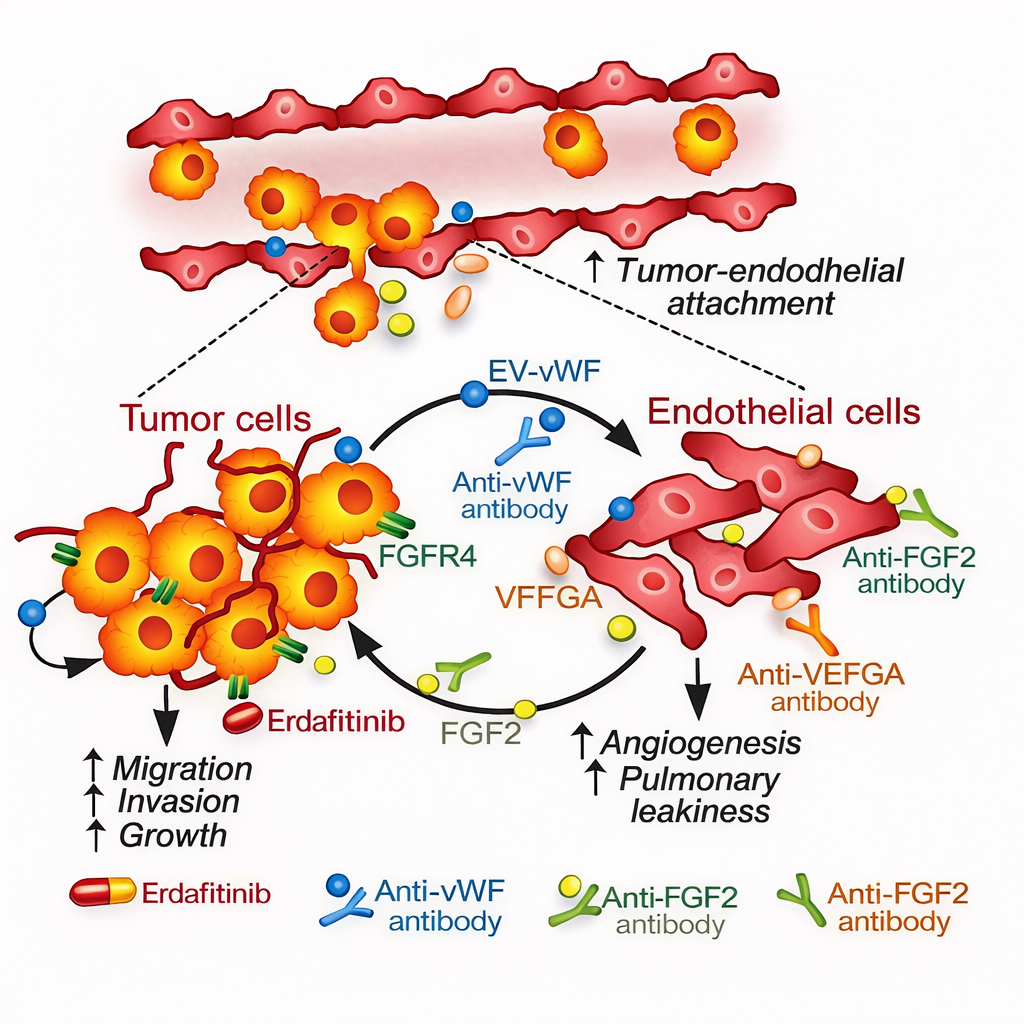
图二 肿瘤细胞外囊泡(EV)携带vWF/FGF2/VEGFA介导肿瘤-内皮黏附并促进肺血管生成与通透性增高的示意图
3.4 抑制胞质CXXC5功能通过增强血管生成与皮肤修复加速糖尿病伤口愈合(对应文献[4])
【研究背景与科学问题】
糖尿病足溃疡等慢性伤口愈合障碍与血管生成不足、炎症持续与组织再生信号低反应性相关。Wnt/β-catenin通路是组织再生的重要轴线,但在糖尿病伤口环境中常被抑制。该研究提出胞质CXXC5作为Wnt/β-catenin负调控节点,可能是同时改善血管生成与修复的关键靶点。
【研究设计与关键方法】
在患者组织与糖尿病模型小鼠伤口中评估CXXC5与Wnt/β-catenin相关分子;采用小分子KY19334干预CXXC5-Dvl相互作用以恢复通路活性;并在伤口愈合与后肢缺血模型中评估血管生成与组织修复指标。
【关键结果】
糖尿病伤口组织中CXXC5上调并伴随Wnt/β-catenin通路抑制;KY19334干预可显著加速伤口闭合,增强血管生成并促进皮肤修复相关结构重建;在缺血模型中亦可诱导血管生成改善灌注。
【机制模型与解释】
核心逻辑为:糖尿病环境→胞质CXXC5高表达并抑制Dvl介导的Wnt/β-catenin信号传递→修复与血管生成基因程序低反应→愈合延迟;通过抑制CXXC5-Dvl相互作用解除负反馈→恢复β-catenin转录输出→同步提升血管生成与再上皮化/基质重建等修复过程。
【潜在转化意义与局限】
该研究为慢性难愈合伤口提供了“再生通路复位”的干预范式;但小分子在不同伤口微生物环境、炎症阶段与合并用药条件下的效果稳定性,以及长期激活Wnt通路的安全性边界,均需要更严格的转化研究支撑。
3.5 缺氧诱导hnRNP A2/B1 SUMO化驱动miR-204-3p外泌体分选并促进胶质母细胞瘤血管生成(对应文献[5])
【研究背景与科学问题】
胶质母细胞瘤常处于缺氧微环境,缺氧不仅改变肿瘤细胞增殖与耐受,也可通过外泌体重塑免疫与血管生态位。该研究聚焦于:缺氧条件下miRNA在外泌体中的分选机制及其对内皮血管生成的影响。
【研究设计与关键方法】
结合患者脑脊液/组织测序线索与细胞模型验证miR-204-3p的分选趋势;通过分子互作与结构域分析确定hnRNP A2/B1对miRNA分选的识别基础;评估缺氧与SUMO化对hnRNP A2/B1核质转位及外泌体装载的影响;并通过通路与药理抑制验证可干预性。
【关键结果】
miR-204-3p呈现外泌体富集趋势;缺氧通过上调hnRNP A2/B1的SUMO化促进其向胞质转位,从而增强miR-204-3p外泌体分选;外泌体miR-204-3p可通过ATXN1/STAT3相关轴促进内皮管形成;SUMO化抑制剂可降低分选过程并抑制肿瘤生长与血管生成相关表型。
【机制模型与解释】
机制链条可概括为:缺氧→SUMO化水平上调并修饰hnRNP A2/B1→促进hnRNP A2/B1由核向胞质转位→增强特定miRNA(miR-204-3p)外泌体装载→外泌体递送至内皮细胞并激活促血管生成信号→形成缺氧微环境下的“分选—递送—重编程”通路。
【潜在转化意义与局限】
该研究将缺氧适应与外泌体分选机制以可药物干预的翻译后修饰节点(SUMO化)连接起来,为胶质瘤相关血管生成干预提供了新的候选入口;但miR-204-3p在不同细胞类型中的双向效应与系统性抑制SUMO化的安全性仍需谨慎界定。
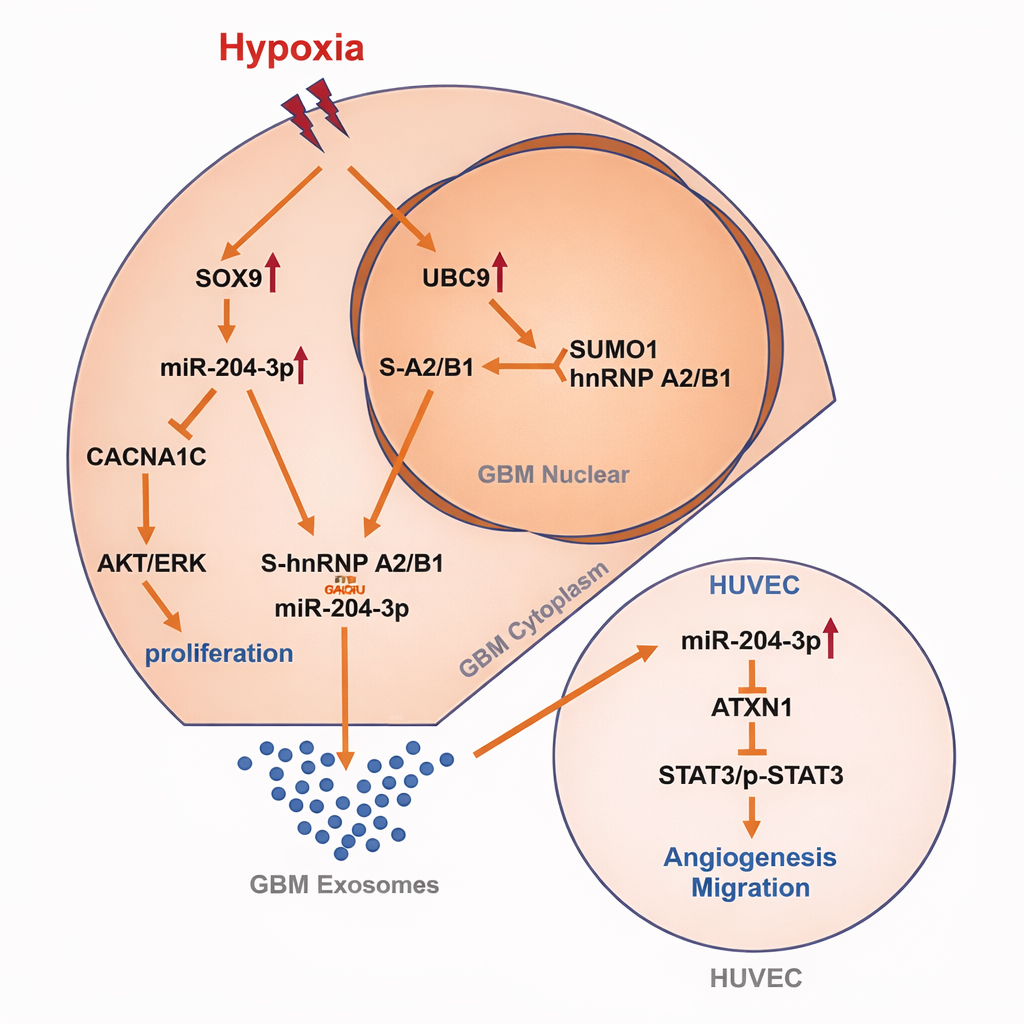
图三 低氧诱导GBM细胞SUMO化hnRNP A2/B1并通过外泌体miR-204-3p促进增殖与血管生成的机制示意图
四、跨研究的共性规律与实验策略要点
4.1 证据链构建的最小闭环
高可信度的血管生成机制研究通常需形成“临床相关性—体外因果性—体内可重复性”的闭环证据。临床相关性用于锚定疾病语境与分层线索;体外因果性用于定位关键节点与方向性;体内验证用于检验微环境复杂性下的稳健性与可干预性。
4.2 “促血管生成”表型的多维度读出
单一管形成实验难以覆盖血管生成全程。建议将内皮增殖/迁移、基质降解、通透性、黏附与跨内皮迁移、灌注功能与成熟稳定化指标进行组合,并明确每项读出对应的生物学阶段,以避免“阶段错配”导致的机制解释偏差。
4.3 反馈放大与组织特异性是决定转化难度的关键变量
肿瘤与慢性炎症中常见正反馈放大回路(如囊泡通讯驱动的互作增强),其干预收益往往高,但也更容易出现代偿通路接管。组织特异性(如肝脏、关节滑膜、中枢神经系统)决定了免疫细胞谱系、血管结构与药物可达性差异,应在研究设计阶段即引入分层与对照策略。
五、阿拉丁相关产品
产品类别 | 产品名称 | 货号 | 级别和纯度 | 用途定位 |
抗体 | Ramucirumab (anti-VEGFR2) | 无载体,重组,ExactAb™,无叠氮钠,已验证,无动物源,≥95%(SDS-PAGE&SEC-HPLC),见COA | 阻断VEGFR2信号,抑制内皮增殖与迁移,作为VEGF-VEGFR轴功能对照 | |
抗体 | Ranibizumab (anti-VEGFA) | 无载体,重组,ExactAb™,低内毒素,无叠氮钠,已验证,无动物源,≥95%(SDS-PAGE&SEC-HPLC),见COA | 中和VEGFA,评估VEGFA依赖性血管生成,作为通路阻断对照 | |
抗体 | Recombinant VEGF Receptor 1 Antibody | 见COA | VEGFR1表达检测与机制验证,受体阻断或免疫学检测配套 | |
抗体 | Recombinant VEGF Receptor 1 Antibody | ExactAb™,Validated,重组,0.1 mg/mL | VEGFR1表达检测与机制验证,受体阻断或免疫学检测配套 | |
抗体 | Recombinant VEGF Receptor 2 Antibody | 重组,ExactAb™,已验证,见COA | VEGFR2表达检测与通路验证,受体相关机制实验配套 | |
抗体 | Recombinant VEGF Receptor 2 Antibody | ExactAb™,Validated,Recombinant,0.12 mg/mL | VEGFR2表达检测与通路验证,受体相关机制实验配套 | |
抗体 | Recombinant VEGFA Antibody | ExactAb™,Validated,Carrier Free,Recombinant,0.075 mg/mL | VEGFA检测与中和/竞争实验,血管生成因子定量与机制验证 | |
抗体 | Recombinant VEGFD Antibody | ExactAb™,Validated,重组,1.5 mg/mL | VEGFD检测与机制研究,适用于淋巴管生成或VEGFR3相关研究配套 | |
重组蛋白 | Recombinant Human VEGF 165 GMP Protein | ActiBioPure™,生物活性,GMP,无动物源,无载体,High performance,≥97%(SDS-PAGE&SEC-HPLC) | 经典促血管生成刺激因子,内皮增殖迁移与管形成模型建立 | |
重组蛋白 | Recombinant Human VEGF 165 Protein | ActiBioPure™,GMP,无动物源,无载体,生物活性,高性能,无菌,≥98%(SDS-PAGE) | 经典促血管生成刺激因子,内皮功能实验与药效验证对照 | |
重组蛋白 | Recombinant Human VEGF Protein | GMP,生物活性,ActiBioPure™,High performance,无动物源,无载体,≥95%(SDS-PAGE) | 促血管生成刺激,作为VEGF轴阳性对照与剂量窗口探索 | |
重组蛋白 | Recombinant Human VEGFA-165 Protein | 无动物源,无载体,生物活性,ActiBioPure™,高性能,见COA | 促血管生成刺激,适用于内皮细胞信号读数与表型诱导 | |
重组蛋白 | Recombinant Human VEGFR2/KDR Protein | Animal Free,Carrier Free,ActiBioPure™,Bioactive,High performance,≥95%(SDS-PAGE) | 受体结合验证,配体-受体相互作用与竞争抑制实验 | |
重组蛋白 | Recombinant Human VEGFR3/Flt-4 Protein | 无动物源,Carrier Free,≥95%(SDS-PAGE) | VEGFR3相关结合/阻断验证,淋巴管生成与受体机制研究配套 | |
重组蛋白 | Recombinant Mouse VEGF 164 Protein | ActiBioPure™,Bioactive,Animal Free,Carrier Free,Azide Free,High performance,≥95%(SDS-PAGE) | 小鼠体系促血管生成刺激,动物来源细胞模型与体外功能实验 | |
重组蛋白 | Recombinant Rat VEGF 164 Protein | ActiBioPure™,重组,无动物源,Carrier Free,High performance,≥95%(SDS-PAGE) | 大鼠体系促血管生成刺激,适用于大鼠来源细胞或对照实验 | |
抗体 | Recombinant FGF2 Antibody | 重组,ExactAb™,已验证,见COA | FGF2检测/阻断与机制验证,FGF轴功能实验配套 | |
抗体 | Recombinant FGF2 Antibody | ExactAb™,Validated,Recombinant,High performance,0.103 mg/mL | FGF2检测/阻断与机制验证,FGF轴功能实验配套 | |
重组蛋白 | Recombinant Human FGF basic/FGF2 Protein | ActiBioPure™,无载体,高性能,生物活性,≥90%(SDS-PAGE),见COA | 促血管生成刺激因子,与VEGF并联驱动内皮增殖与迁移 | |
重组蛋白 | Recombinant Human FGF basic/FGF2/bFGF GMP Protein | 无动物源,Carrier Free,GMP,生物活性,ActiBioPure™,High performance,≥97%(SDS-PAGE&SEC-HPLC) | 高一致性FGF2刺激,适用于类器官/干细胞培养与血管生成模型 | |
重组蛋白 | Recombinant Human FGF basic/FGF2/bFGF Protein | 无载体,GMP,生物活性,ActiBioPure™,高性能,无动物源,≥95%(SDS-PAGE) | FGF2刺激因子,内皮功能实验与药效对照 | |
重组蛋白 | Recombinant Human FGF basic/FGF2/bFGF(155aa) Protein | GMP,生物活性,ActiBioPure™,无动物源,无载体,高性能,≥95%(SDS-PAGE) | FGF2刺激因子,用于剂量反应与信号读数验证 | |
重组蛋白 | Recombinant Mouse FGF basic/FGF2/bFGF Protein | 无动物源,无载体,Azide Free,≥98%(SDS-PAGE) | 小鼠体系FGF2刺激,动物来源内皮/成纤维细胞模型配套 | |
抗体 | Recombinant Angiopoietin 1 Antibody | 重组,ExactAb™,已验证,见COA | Ang/Tie轴检测与机制验证,血管成熟稳定化相关研究配套 | |
抗体 | Recombinant Angiopoietin 2/ANG2 Antibody | ExactAb™,Validated,Recombinant,High performance,0.7 mg/mL | ANG2相关机制研究,血管不稳定化与炎症相关血管生成模型配套 | |
抗体 | Recombinant Angiopoietin-like 4/ANGPTL4 Antibody | ExactAb™,Validated,Recombinant,0.8 mg/mL | ANGPTL4检测与机制验证,血管通透性与肿瘤微环境相关研究配套 | |
重组蛋白 | Recombinant Human Angiopoietin-like 4/ANGPTL4 Protein | ActiBioPure™,Bioactive,Animal Free,Carrier Free,Azide Free,≥95%(SDS-PAGE) | ANGPTL4功能研究,评估通透性、迁移与微环境调控效应 | |
重组蛋白 | Recombinant Human Angiopoietin-like 7 Protein | 无动物源,无载体,≥95%(SDS-PAGE),见COA | ANGPTL7相关研究,血管生成与组织重塑方向的功能验证 | |
重组蛋白 | Recombinant Human Angiopoietin-like 7/ANGPTL7 Protein | ActiBioPure™,Bioactive,Animal Free,Carrier Free,Azide Free,≥95%(SDS-PAGE) | ANGPTL7相关研究,作为机制与表型实验配套因子 | |
检测/功能测定 | FRETS-VWF73 | -- | vWF裂解功能测定底物,适用于vWF相关蛋白酶活性评估与机制实验 | |
重组蛋白 | Recombinant Human vWF-A2 Protein | 无载体,≥95%(SDS-PAGE),见COA | vWF-A2结构域相关机制研究,配合裂解/结合实验验证通路环节 | |
siRNA | VWF Human Pre-designed siRNA Set A | -- | vWF敲低干预,验证vWF在内皮激活与血管生成表型中的因果作用 | |
抗体 | PLGF Mouse mAb | 无载体,ExactAb™,无叠氮钠,已验证,见COA | PlGF检测与功能阻断,VEGFR1相关血管生成机制验证 | |
抗体 | PLGF Mouse mAb | 无载体,ExactAb™,无叠氮钠,已验证,见COA | PlGF检测与功能阻断,VEGFR1相关血管生成机制验证 | |
重组蛋白 | PLGF-I 人 | 无动物源,重组,用于细胞培养,≥95%(SDS-PAGE&HPLC),expressed in E. coli | PlGF刺激因子,用于VEGFR1轴刺激与表型诱导 | |
重组蛋白 | Recombinant Human PLGF Protein | ActiBioPure™,Bioactive,Animal Free,Carrier Free,Azide Free,High performance,≥97%(SDS-PAGE&HPLC) | PlGF刺激因子,评估VEGFR1依赖性迁移与血管生成效应 | |
重组蛋白 | Recombinant Human PlGF Protein | ActiBioPure™,Bioactive,Animal Free,Carrier Free,Azide Free,≥95%(SDS-PAGE) | PlGF刺激因子,血管生成模型与机制验证配套 | |
重组蛋白 | Recombinant Human PlGF Protein | 无动物源,无载体,生物活性,ActiBioPure™,≥90%(SDS-PAGE),见COA | PlGF刺激因子,作为促血管生成并联因子或对照刺激 | |
重组蛋白 | Recombinant Human SMAD2 Protein | 无载体,≥90%(SDS-PAGE),见COA | Smad2/3通路体外机制研究配套,适用于结合/活性或抗体验证体系 | |
重组蛋白 | Recombinant Human Smad3 Protein | Carrier Free,Azide Free,≥90%(SDS-PAGE) | Smad3相关机制研究,用于信号通路与互作验证 | |
重组蛋白 | Recombinant Human Smad3 Protein | Carrier Free,Azide Free,≥95%(SDS-PAGE) | Smad3相关机制研究,用于信号通路与互作验证 | |
重组蛋白 | Recombinant Human SMAD4 Protein | 无载体,≥90%(SDS-PAGE),见COA | Smad4相关机制研究,适用于复合体与下游转录轴研究配套 | |
抗体 | Recombinant Smad2 Antibody | 重组,ExactAb™,已验证,见COA | Smad2检测与通路验证,适用于Western blot/免疫学读数配套 | |
抗体 | Recombinant SMAD3 Antibody | ExactAb™,Validated,重组,1 mg/mL | Smad3检测与通路验证,适用于机制归因与干预对照 | |
抗体 | Recombinant Smad4 Antibody | ExactAb™,Validated,重组,0.6 mg/mL | Smad4检测与通路验证,适用于机制归因与干预对照 | |
重组蛋白 | Recombinant Human STAT3 Protein | 无载体,≥90%(SDS-PAGE),见COA | STAT3轴机制研究配套,适用于结合/活性或抗体验证体系 | |
抗体 | Recombinant STAT3 Antibody | 重组,ExactAb™,敲低验证,已验证,见COA | STAT3检测与通路验证,适用于血管生成相关炎症信号读数 | |
小分子抑制剂 | GM 6001,广谱MMP抑制剂 | Moligand™,≥98% | 抑制MMP介导的基质降解,用于迁移、侵袭与血管生成表型抑制对照 | |
小分子抑制剂 | MMP抑制剂II | ≥95% | 广谱MMP抑制,用于验证ECM重塑对血管生成与迁移的贡献 | |
小分子抑制剂 | NNGH,广谱MMP抑制剂 | ≥98% | 抑制MMP活性,用于基质降解依赖性机制验证 | |
小分子抑制剂 | NSC 405020,非催化MT1-MMP抑制剂 | ≥98% | 抑制MT1-MMP相关功能,用于内皮侵袭与基质穿越环节验证 | |
小分子抑制剂 | PD 166793,广谱MMP抑制剂 | ≥99%(HPLC) | 抑制MMP活性,用于血管生成与迁移表型的药理学对照 | |
小分子抑制剂 | TAPI 0,ADAM-17(TACE)和MMP抑制剂 | ≥95%(HPLC) | 抑制ADAM17相关剪切与MMP活性,用于炎症-血管生成耦合机制验证 | |
小分子抑制剂 | TAPI 2,ADAM-17(TACE)和MMP抑制剂 | ≥95%(HPLC) | 抑制ADAM17相关剪切与MMP活性,用于受体/配体剪切依赖性机制研究 | |
小分子抑制剂 | S3I-201,STAT3抑制剂 | ≥96% | STAT3信号抑制,用于促血管生成炎症信号与转录输出的机制归因 | |
小分子抑制剂 | STA-21(Ochromycinone),STAT3抑制剂 | ≥98% | STAT3抑制对照,用于抑制促血管生成相关基因程序 | |
小分子抑制剂 | WP1066,JAK/STAT3抑制剂 | Moligand™,≥98% | 抑制JAK/STAT3轴,用于验证细胞因子驱动的血管生成信号依赖性 | |
小分子抑制剂 | AMG PERK 44,PERK抑制剂 | ≥95% | ER应激-PERK通路抑制,用于缺氧/应激背景下血管生成适应机制对照 | |
小分子抑制剂 | GSK PERK抑制剂 | Moligand™,≥98% | PERK通路抑制,用于应激相关血管生成表型验证 | |
小分子抑制剂 | GSK2606414,PERK抑制剂 | Moligand™,≥98% | PERK抑制剂,用于应激-转录重编程与血管生成耦合验证 | |
小分子抑制剂 | GSK2656157,PERK抑制剂 | Moligand™,≥98% | PERK抑制剂,用于应激相关信号阻断对照 | |
小分子抑制剂 | ERK抑制剂 | ≥95% | 抑制MAPK/ERK输出,用于VEGF/FGF等刺激后的下游通路依赖性验证 | |
小分子抑制剂 | ERK抑制剂III | Moligand™ | ERK抑制对照,用于快速阻断MAPK/ERK信号与表型回归验证 | |
小分子抑制剂 | ERK抑制剂II,阴性对照 | Moligand™ | 阴性对照,用于排除非特异效应并校准ERK抑制实验解释 | |
小分子抑制剂 | FR 180204,ERK抑制剂 | Moligand™,≥98%(HPLC) | ERK抑制剂,用于内皮增殖迁移与管形成对ERK依赖性验证 | |
小分子抑制剂 | Terrein,Akt和ERK抑制剂 | ≥98% | 抑制AKT与ERK,用于并联通路阻断与促血管生成表型归因 | |
小分子抑制剂 | AZD4547,新型FGFR抑制剂 | Moligand™,≥99% | FGFR抑制,用于FGF/FGFR驱动的血管生成与迁移机制验证 | |
小分子抑制剂 | BGJ398 (NVP-BGJ398),FGFR抑制剂 | Moligand™,≥98% | FGFR抑制,用于FGF轴依赖性验证与药效对照 | |
小分子抑制剂 | CH5183284 (Debio-1347),FGFR抑制剂 | Moligand™,≥99% | FGFR抑制,用于FGFR依赖性血管生成信号阻断 | |
小分子抑制剂 | LY2874455,FGF/FGFR抑制剂 | Moligand™,≥99% | 广谱FGFR抑制,用于FGF轴参与的血管生成表型回归验证 | |
小分子抑制剂 | PD-161570,FGFR抑制剂 | ≥98%(HPLC) | FGFR抑制,用于受体激酶依赖性与剂量窗口探索 | |
小分子抑制剂 | SSR128129E,变构FGFR抑制剂 | ≥98% | 变构抑制FGFR,用于FGF信号阻断与通路特异性验证 | |
小分子抑制剂 | AAL 993,VEGFR抑制剂 | ≥98% | VEGFR通路抑制,用于血管生成依赖性验证与药效对照 | |
小分子抑制剂 | AEE788 (NVP-AEE788),EGFR和VEGFR抑制剂 | ≥97% | 同时抑制EGFR与VEGFR,用于通路交叉与代偿机制研究对照 |
血管生成并非单一路径驱动的线性过程,而是由可溶性因子、细胞外基质重塑、免疫微环境与囊泡通讯共同编织的动态网络。五项代表性研究分别从外泌体circRNA、免疫细胞内信号轴、sEV蛋白介导的正反馈环路、再生信号通路复位以及缺氧相关翻译后修饰等角度,揭示了病理性血管生成被持续放大或被修复性重建所“纠偏”的多种机制样式。面向转化应用,后续研究的关键在于:以更严格的证据闭环锁定可干预节点,以更精细的人群与病程分层识别获益窗口,并以系统生物学视角处理反馈代偿与组织特异性带来的复杂性。
参考文献
[1] Hu G,Lin C,Gao K,Chen M,Long F,Tian B. Exosomal circCOL1A1 promotes angiogenesis via recruiting EIF4A3 protein and activating Smad2/3 pathway in colorectal cancer. Molecular Medicine. 2023;29:155. doi:10.1186/s10020-023-00747-x.
[2] Yang X,Zhao Y,Wei Q,Zhu X,Wang L,Zhang W,et al. GRK2 inhibits Flt-1+ macrophage infiltration and its proangiogenic properties in rheumatoid arthritis. Acta Pharmaceutica Sinica B. 2024;14(1):241-255. doi:10.1016/j.apsb.2023.09.013.
[3] Wong SWK,Tey SK,Mao X,Fung HL,Xiao ZJ,Wong DKH,et al. Small Extracellular Vesicle-Derived vWF Induces a Positive Feedback Loop between Tumor and Endothelial Cells to Promote Angiogenesis and Metastasis in Hepatocellular Carcinoma. Advanced Science. 2023;10(26):2302677. doi:10.1002/advs.202302677.
[4] Kim E,Seo SH,Hwang Y,Ryu YC,Kim H,Lee KM,et al. Inhibiting the cytosolic function of CXXC5 accelerates diabetic wound healing by enhancing angiogenesis and skin repair. Experimental & Molecular Medicine. 2023;55(8):1770-1782. doi:10.1038/s12276-023-01064-3.
[5] Guo Q,Fan Y,Wang Q,Li B,Qiu W,Qi Y,et al. Glioblastoma upregulates SUMOylation of hnRNP A2/B1 to eliminate the tumor suppressor miR-204-3p,accelerating angiogenesis under hypoxia. Cell Death & Disease. 2023;14:147. doi:10.1038/s41419-023-05663-w.
更多相关文章,详见下方:
[1] 肿瘤细胞诱导血管生成模型实验


 危险品化学品经营许可证(带存储)